
Khoa Học Làn Da
Cập nhật về sinh bệnh học nám da: Hệ thống enzyme kích thích sinh nám (Phần 2)
Th1
“Nám” – chỉ một từ thôi nhưng lại gói gọn bao nhiêu nỗi lo toan của biết bao người chị, người mẹ, người bà. Đây cũng đã và đang là một trong những mối quan tâm hàng đầu của giới học thuật trong suốt nhiều thập kỷ – bên cạnh vấn đề “mụn” và “lão hoá”.
Chẳng phải tôi vẫn được nghe ở đâu đó rằng “muốn hết nám, muốn hết melanin thì hãy nhắm vào tyrosinase” đó sao?
Tại sao đã dùng đủ mọi cách “khóa” enzyme sinh sắc tố tyrosinase mà nám vẫn quay lại?
Tại sao nám lại “lì” đến vậy?
Câu trả lời nằm ở một sự thật ít ai ngờ: Chúng ta đang cố gắng sửa một cỗ máy phức tạp bằng cách… chỉ tập trung vào một bánh răng duy nhất.
Chúng ta đã quá tập trung vào Tyrosinase – cái “bánh răng” giới hạn tốc độ – mà quên mất rằng nó chỉ là một phần của một dây chuyền sản xuất khổng lồ. Nám không phải là lỗi của một “bánh răng” hỏng. Nó là lỗi của cả một hệ thống – một mạng lưới chằng chịt gồm các hệ enzyme kiểm soát sắc tố, nhóm các tín hiệu khởi phát sắc tố, hệ thống các tế bào tương tác trực tiếp/ gián tiếp với tế bào hắc tố hay kể cả quá trình lão hoá bên trong ở từng tế bào đang cùng nhau hoạt động sai.
Nói cách khác, nám là một rối loạn các yếu tố chức năng mang tính hệ thống.
Trong bài viết này, chúng ta hãy cùng “vẽ” lại phần bản đồ đầu tiên của mạng lưới phức tạp đó – hệ thống enzyme kích thích sinh nám. Hãy cùng Twins xem cỗ máy này thực sự vận hành (và sai lệch) như thế nào.
____________________
Twins Skin – Mỹ phẩm Việt tiên phong công nghệ sinh học.
Nội dung thuộc quyền sở hữu của Twins Skin, vui lòng không sao chép dưới mọi hình thức.
Có gì trong bài viết này
1. Bên trong “nhà máy” sản xuất sắc tố – Tyrosinase không phải là tất cả
Quan điểm cho rằng tyrosinase là enzyme duy nhất chịu trách nhiệm cho nám là một sự đơn giản hóa. Quá trình tổng hợp melanin (melanogenesis) được thực hiện bởi một “khối chức năng” gồm các enzyme và protein liên quan. Sự rối loạn của chúng mang tính tổng thể, chứ không phải đơn lẻ.
1.1. Họ enzyme TRP: Một “dây chuyền chuyển hoá” phối hợp – tức là một “metabolon”
Quá trình tổng hợp Eumelanin (sắc tố nâu-đen, chiếm ưu thế trong nám) đòi hỏi một bộ ba enzyme cốt lõi, thường được gọi là “gia đình” protein liên quan đến tyrosinase (tyrosinase-related protein – TRP). Chúng được cho là tạo thành một phức hợp đa enzyme ổn định về mặt vật lý bên trong melanosome.
“Metabolon” là một khái niệm sinh học phân tử chỉ một “dây chuyền lắp ráp” tạm thời. Thay vì để các sản phẩm trung gian khuếch tán tự do, các enzyme này liên kết vật lý với nhau, cho phép chúng “truyền tay” trực tiếp sản phẩm cho nhau. Cơ chế này, gọi là “sự chuyển giao kênh” (substrate channeling), mang lại hai lợi ích then chốt:
- Tăng hiệu suất: Tốc độ phản ứng tăng vọt.
- Bảo vệ tế bào: Các chất trung gian độc hại và không ổn định (như Dopaquinone) được “nhốt” an toàn bên trong phức hợp, ngăn chúng rò rỉ ra ngoài và gây stress oxy hóa cho chính tế bào hắc tố.
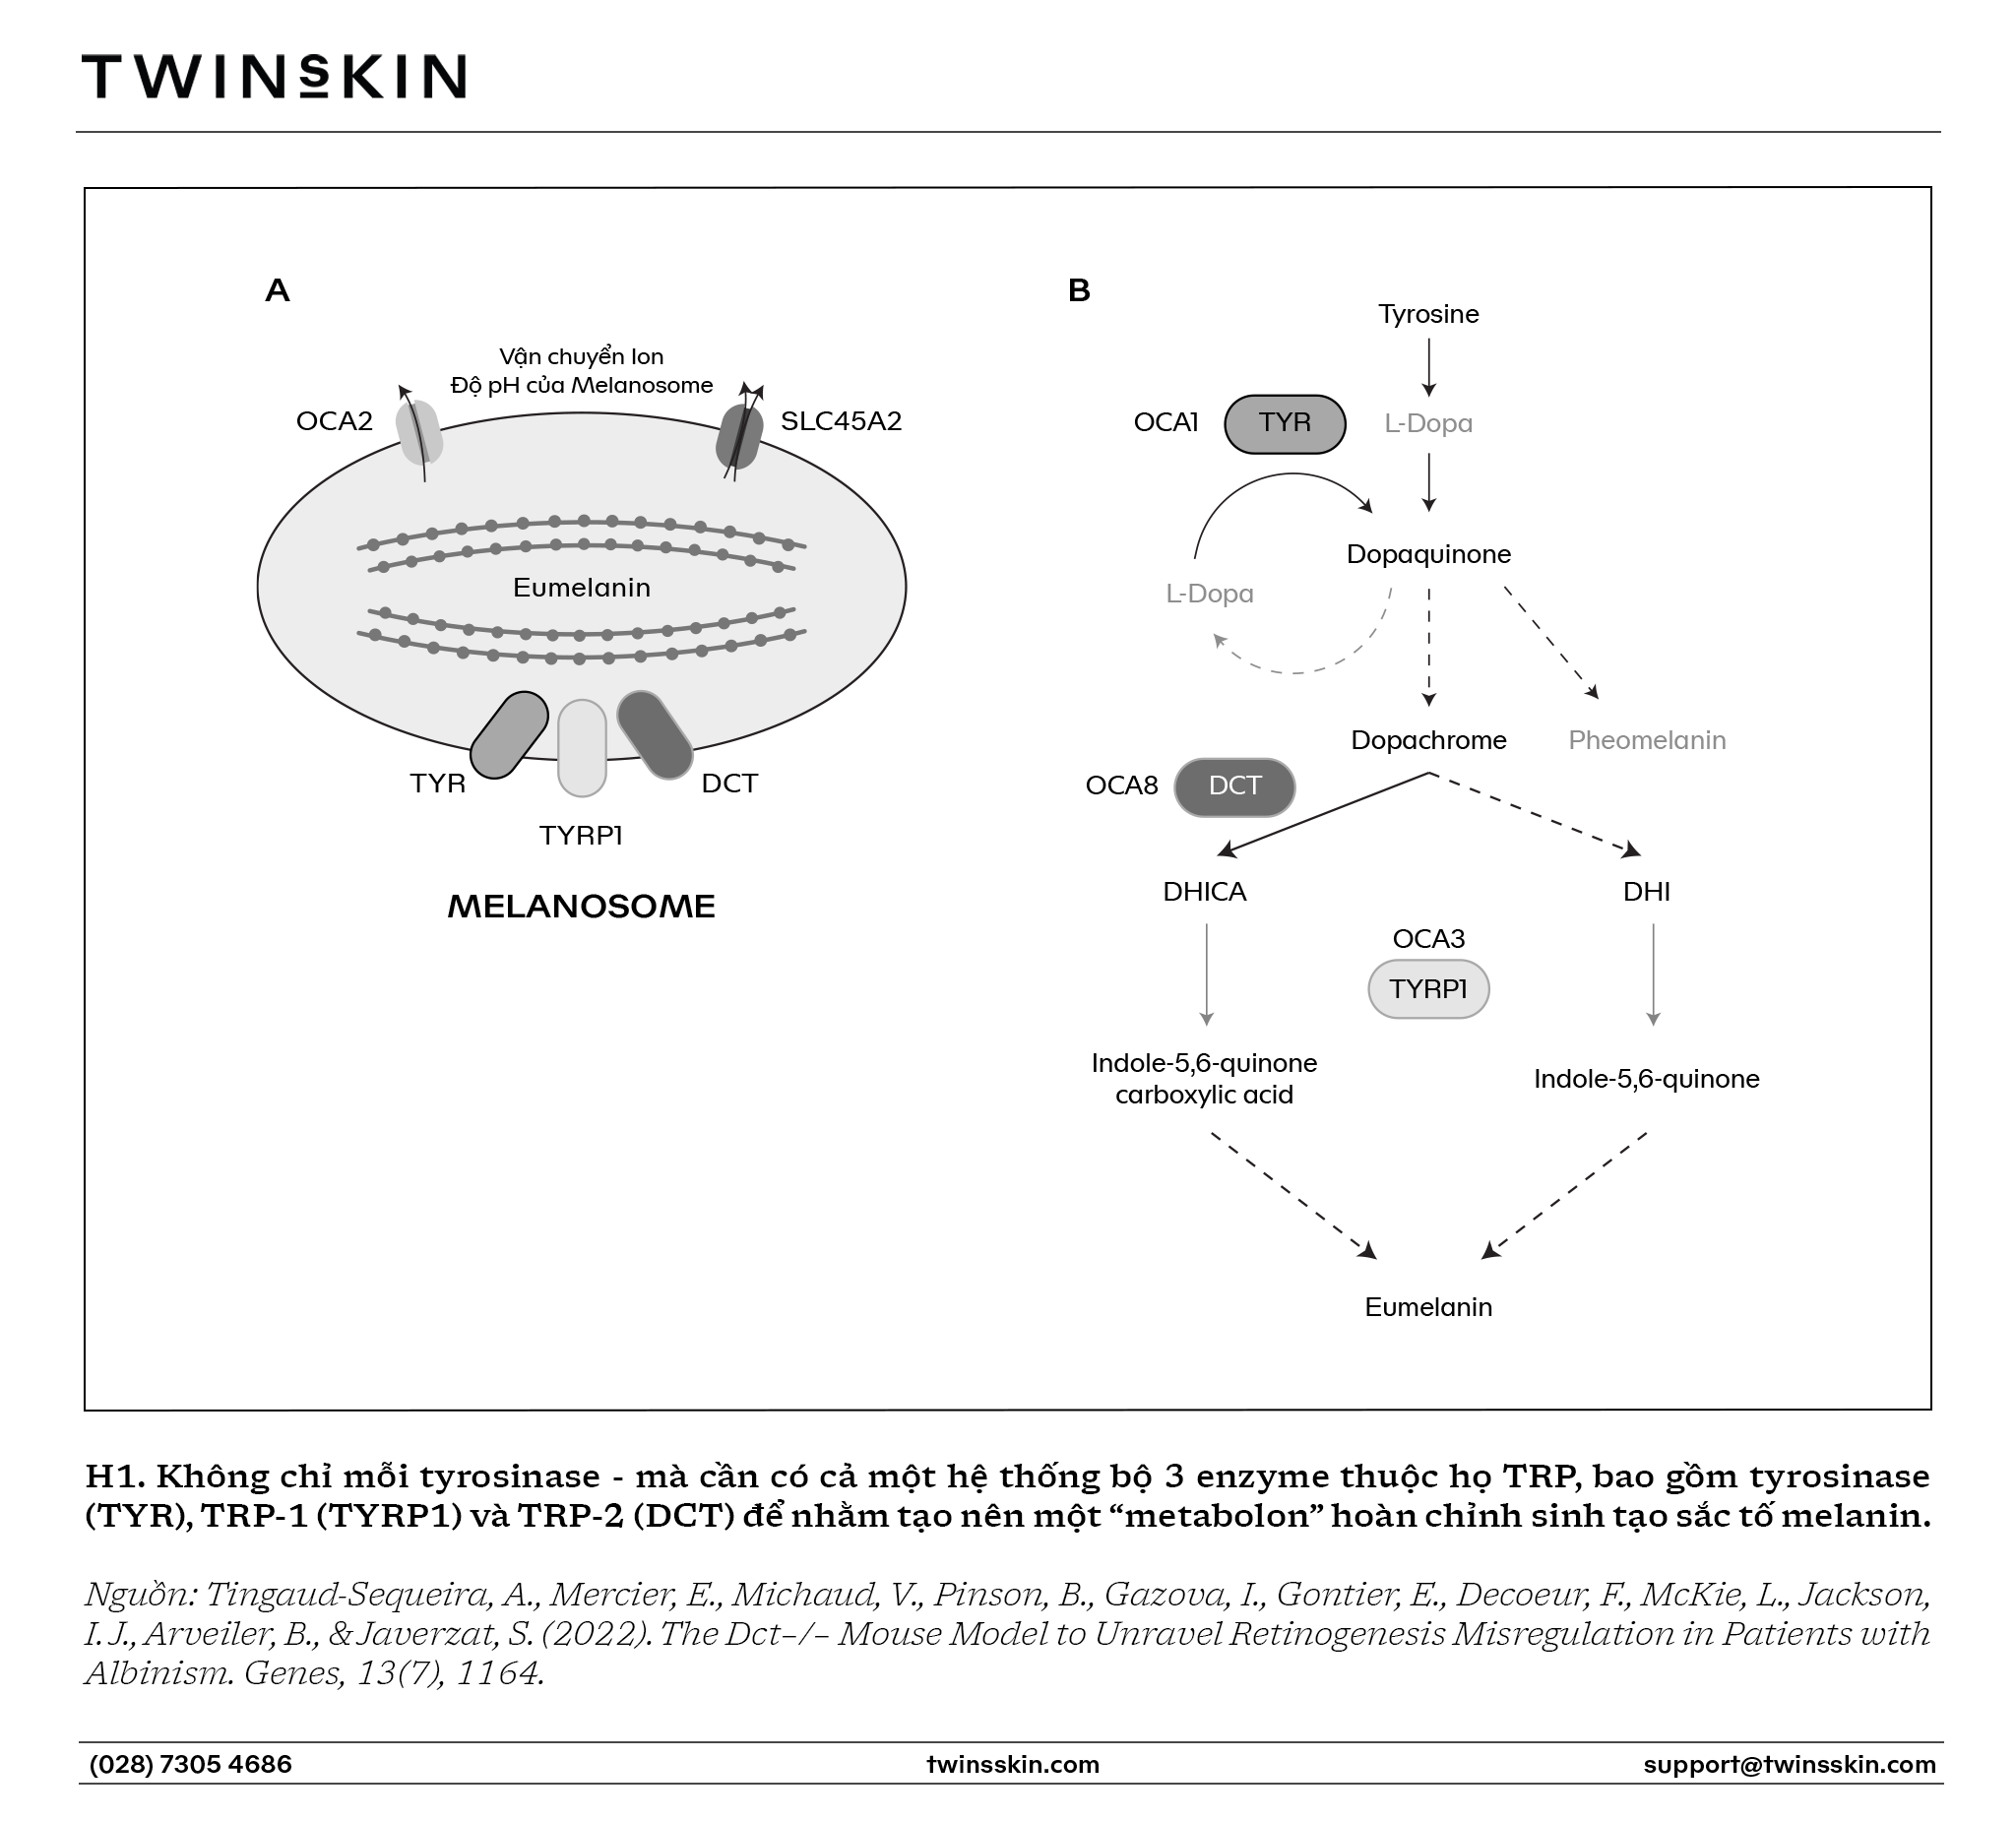
a. Tyrosinase (TYR): Enzyme này được mô tả lần đầu bởi nhà hoá sinh người Pháp Gabriel Bertrand vào năm 1895. Đây là enzyme cần thiết tuyệt đối và giới hạn tốc độ sản xuất sắc tố melanin. Nó sở hữu hai hoạt tính xúc tác riêng biệt:
- Hoạt tính Monophenolase (chậm hơn): Hydroxyl hóa L-Tyrosine (monophenol) thành L-DOPA (diphenol). Đây là bước khởi đầu.
- Hoạt tính Diphenolase (nhanh hơn): Oxy hóa L-DOPA thành Dopaquinone. Hoạt động của nó quyết định “van” tổng của toàn bộ nhà máy.
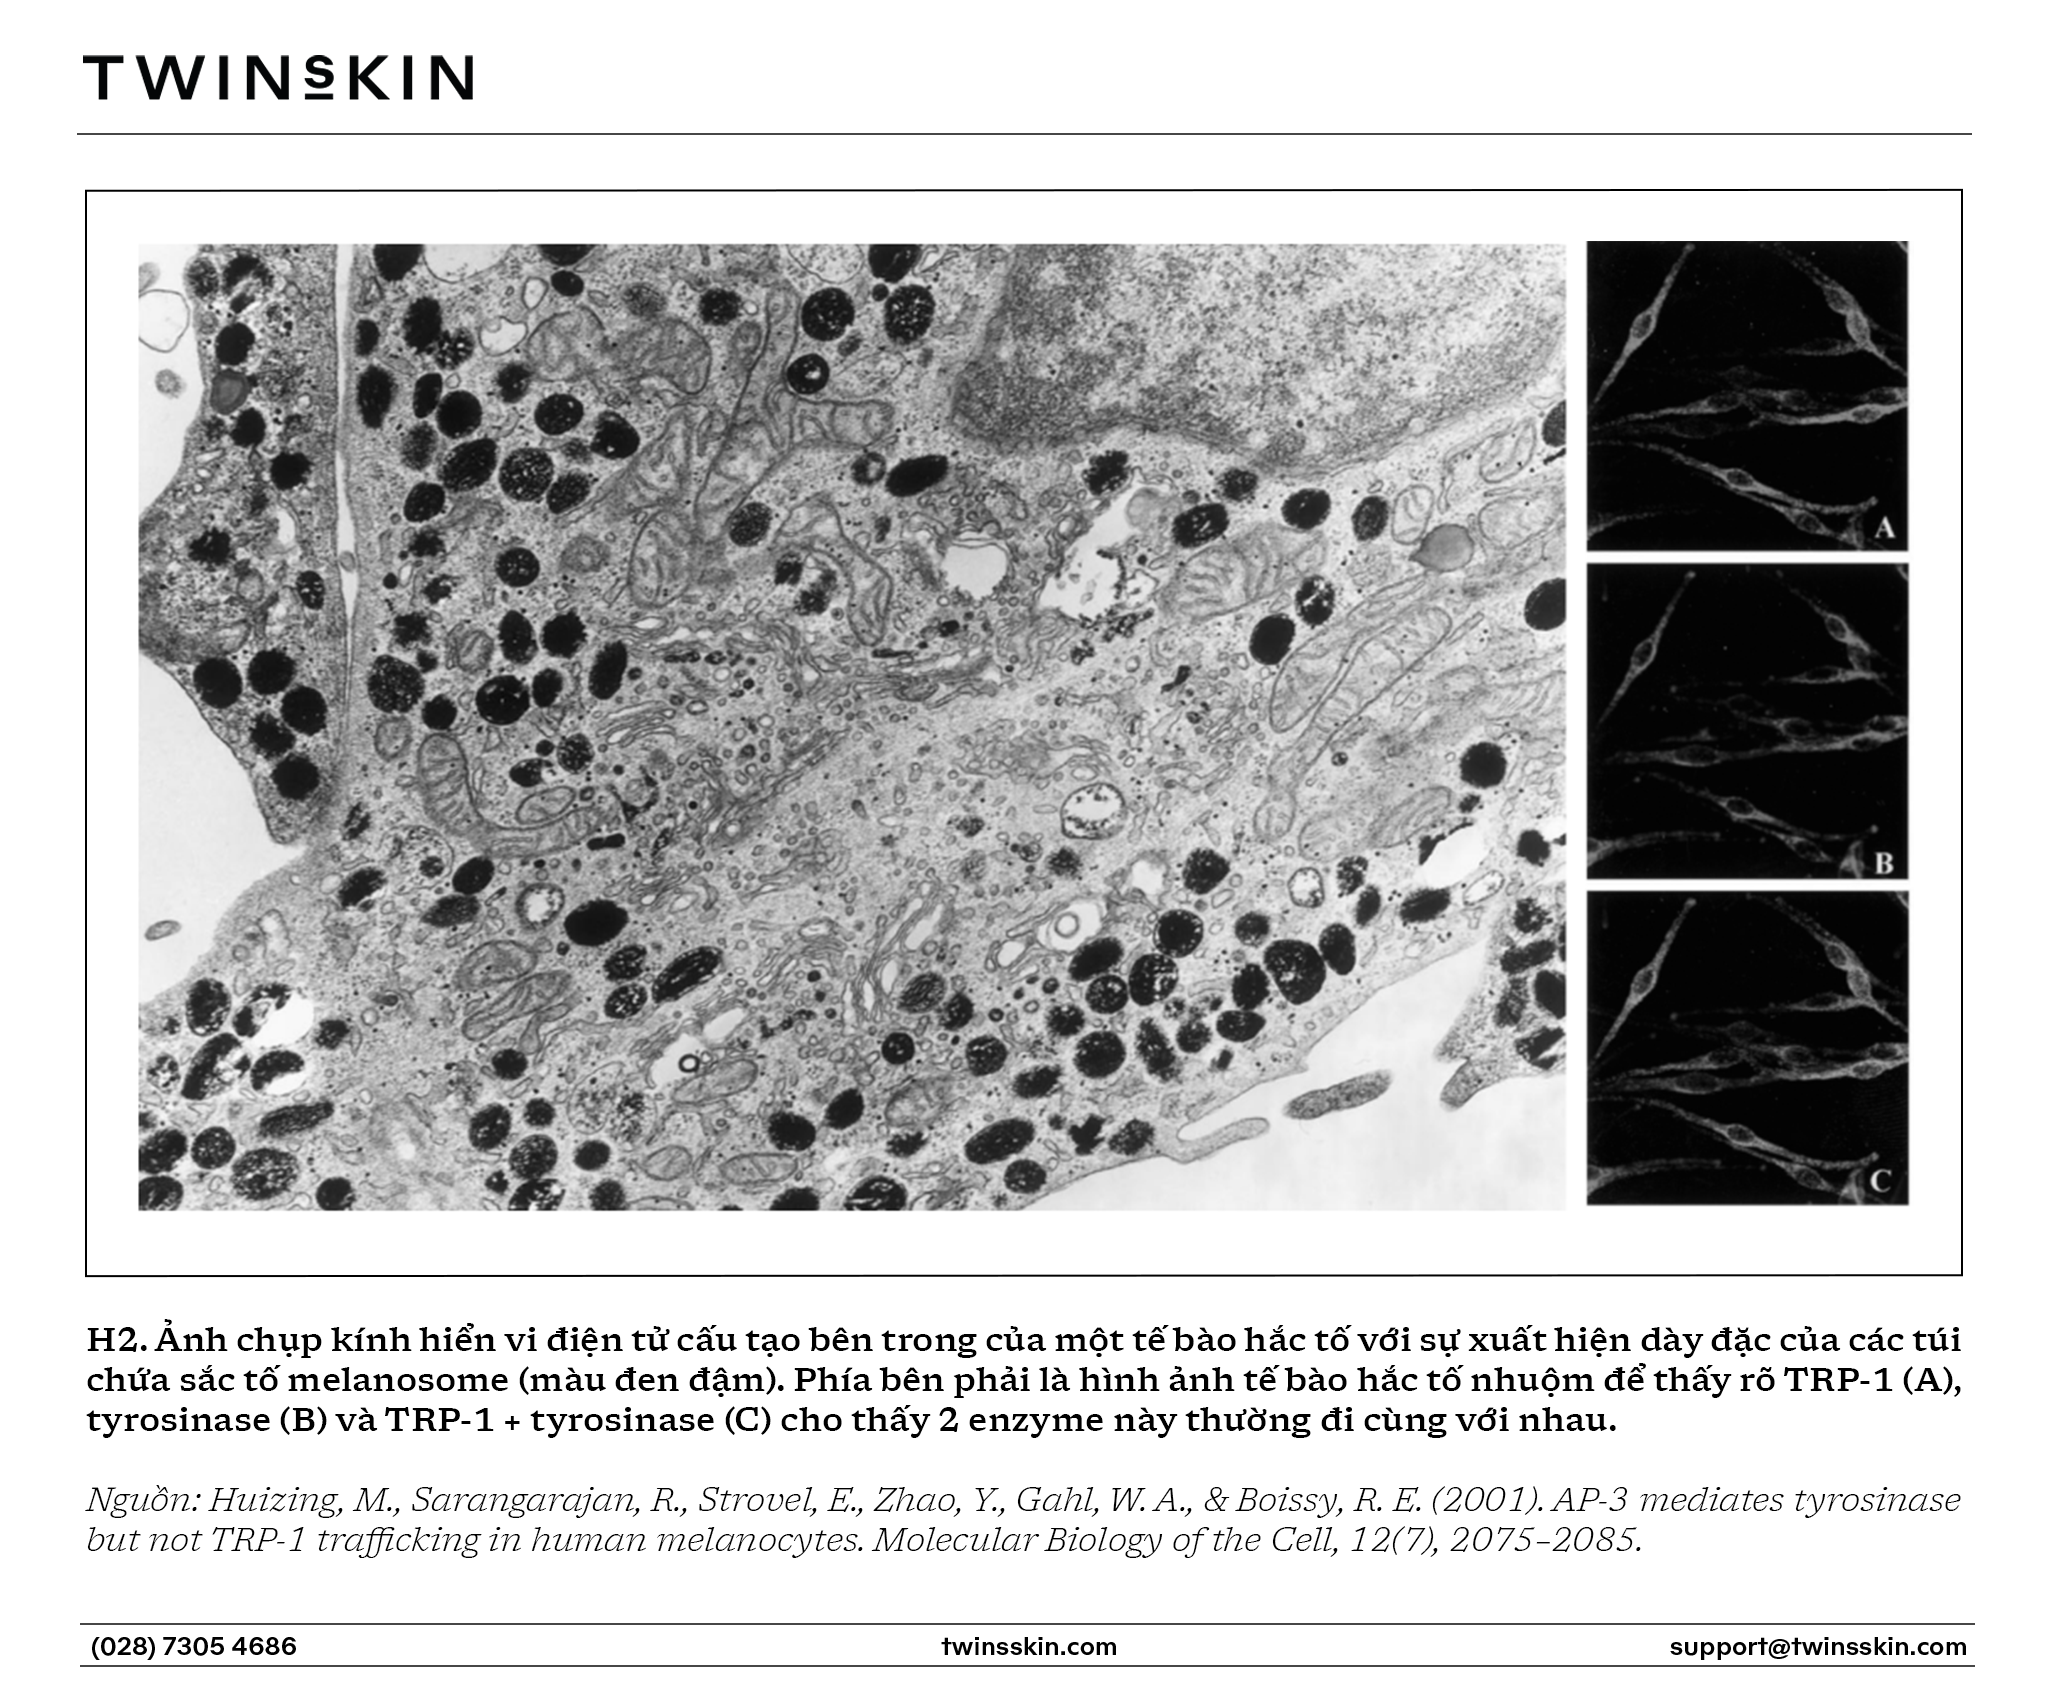
b. Protein liên quan đến Tyrosinase 1 (TRP-1): Nó được mô tả lần đầu vào năm 1989. Vai trò của TRP-1 ở người có phần gây tranh cãi và khác biệt so với chuột (nơi nó đóng vai trò là một DHICA oxidase).
Ở người, chức năng chính của TRP-1 dường như là cấu trúc và điều hòa. Nó đóng vai trò then chốt trong việc ổn định protein Tyrosinase. TRP-1 tạo thành một phức hợp với tyrosinase, bảo vệ tyrosinase khỏi sự phân giải sớm (ví dụ như bởi proteasome hoặc lysosome), qua đó kéo dài thời gian bán hủy (có thể hiểu nôm na là tăng “độ bền”) và tăng cường hiệu suất tổng thể của tyrosinase.
TRP-1 chính là “chất keo” giúp “metabolon” sinh sắc tố giữ được sự ổn định và hiệu quả.
 c. Protein liên quan đến Tyrosinase 2 (TRP-2 / DCT): Còn gọi là Dopachrome Tautomerase – mô tả lần đầu vào năm 1992. Dopaquinone (sản phẩm của tyrosinase) sẽ tự động chuyển hóa thành Dopachrome. Tại đây, TRP-2 can thiệp và xúc tác quá trình đồng phân hóa (tautomerization) Dopachrome thành DHICA (5,6-dihydroxyindole-2-carboxylic acid). Vai trò này cực kỳ quan trọng vì nó định hướng quá trình tổng hợp sắc tố.
Nếu không có TRP-2, Dopachrome sẽ chuyển hóa thành DHI. Eumelanin có nguồn gốc từ DHICA (sản phẩm của TRP-2) ít độc hại cho tế bào hơn và có màu sắc hơi khác so với Eumelanin từ DHI. Do đó, TRP-2 quyết định chất lượng và loại Eumelanin được tạo ra.
Một vai trò quan trọng khác nhưng thường bị bỏ qua của TRP-2 chính là khả năng kích hoạt phân chia tế bào, chứ không nhất thiết tương quan với hàm lượng sắc tố tổng thể. Đáng chú ý nhất, sự biểu hiện của TRP-2 đã được chứng minh là có khả năng bảo vệ và cứu sống các tế bào hắc tố khỏi quá trình apoptosis (chết tế bào theo chương trình) do phơi nhiễm tia UVB gây ra trong nghiên cứu của Nishioka, E. và cộng sự vào năm 1999.
1.2. “Công tắc tổng” MITF
Một điểm mấu chốt là cả ba enzyme (TYR, TRP-1, TRP-2) không được bật/tắt riêng lẻ. Chúng được điều khiển bởi một “công tắc tổng” duy nhất: MITF (Microphthalmia-associated transcription factor – Yếu tố phiên mã liên quan đến chứng teo nhãn cầu). MITF là một yếu tố phiên mã chủ chốt, liên kết với vùng promoter (có thể hiểu là các đoạn mã di truyền có khả năng) trên các gen mã hóa cho cả ba enzyme này (cũng như nhiều enzyme hay protein khác liên quan đến sự sống còn của tế bào hắc tố).
MITF chính là “bộ xử lý trung tâm” của tế bào hắc tố. Nó nhận tín hiệu từ vô số con đường tín hiệu được phát đi từ vô số các “bộ phát” (tức là các tế bào hay các sự tổn thương diễn ra quanh tế bào hắc tố). Tiêu biểu có:
- Con đường cAMP/PKA (kích hoạt bởi tín hiệu α-MSH, một trong những tín hiệu “then chốt” nhất).
- Con đường Wnt/β-catenin (ngoài sinh sắc tố đơn thuần, con đường này điều hoà cả sự sống, biệt hoá để thực hiện chức năng và phân chia của tế bào hắc tố)..
- Con đường SCF/c-Kit (thường là con đường tín hiệu được “trưng dụng” bởi các nguyên bào sợi tổn thương – loại tế bào sản sinh collagen thường nằm dưới trung bì).
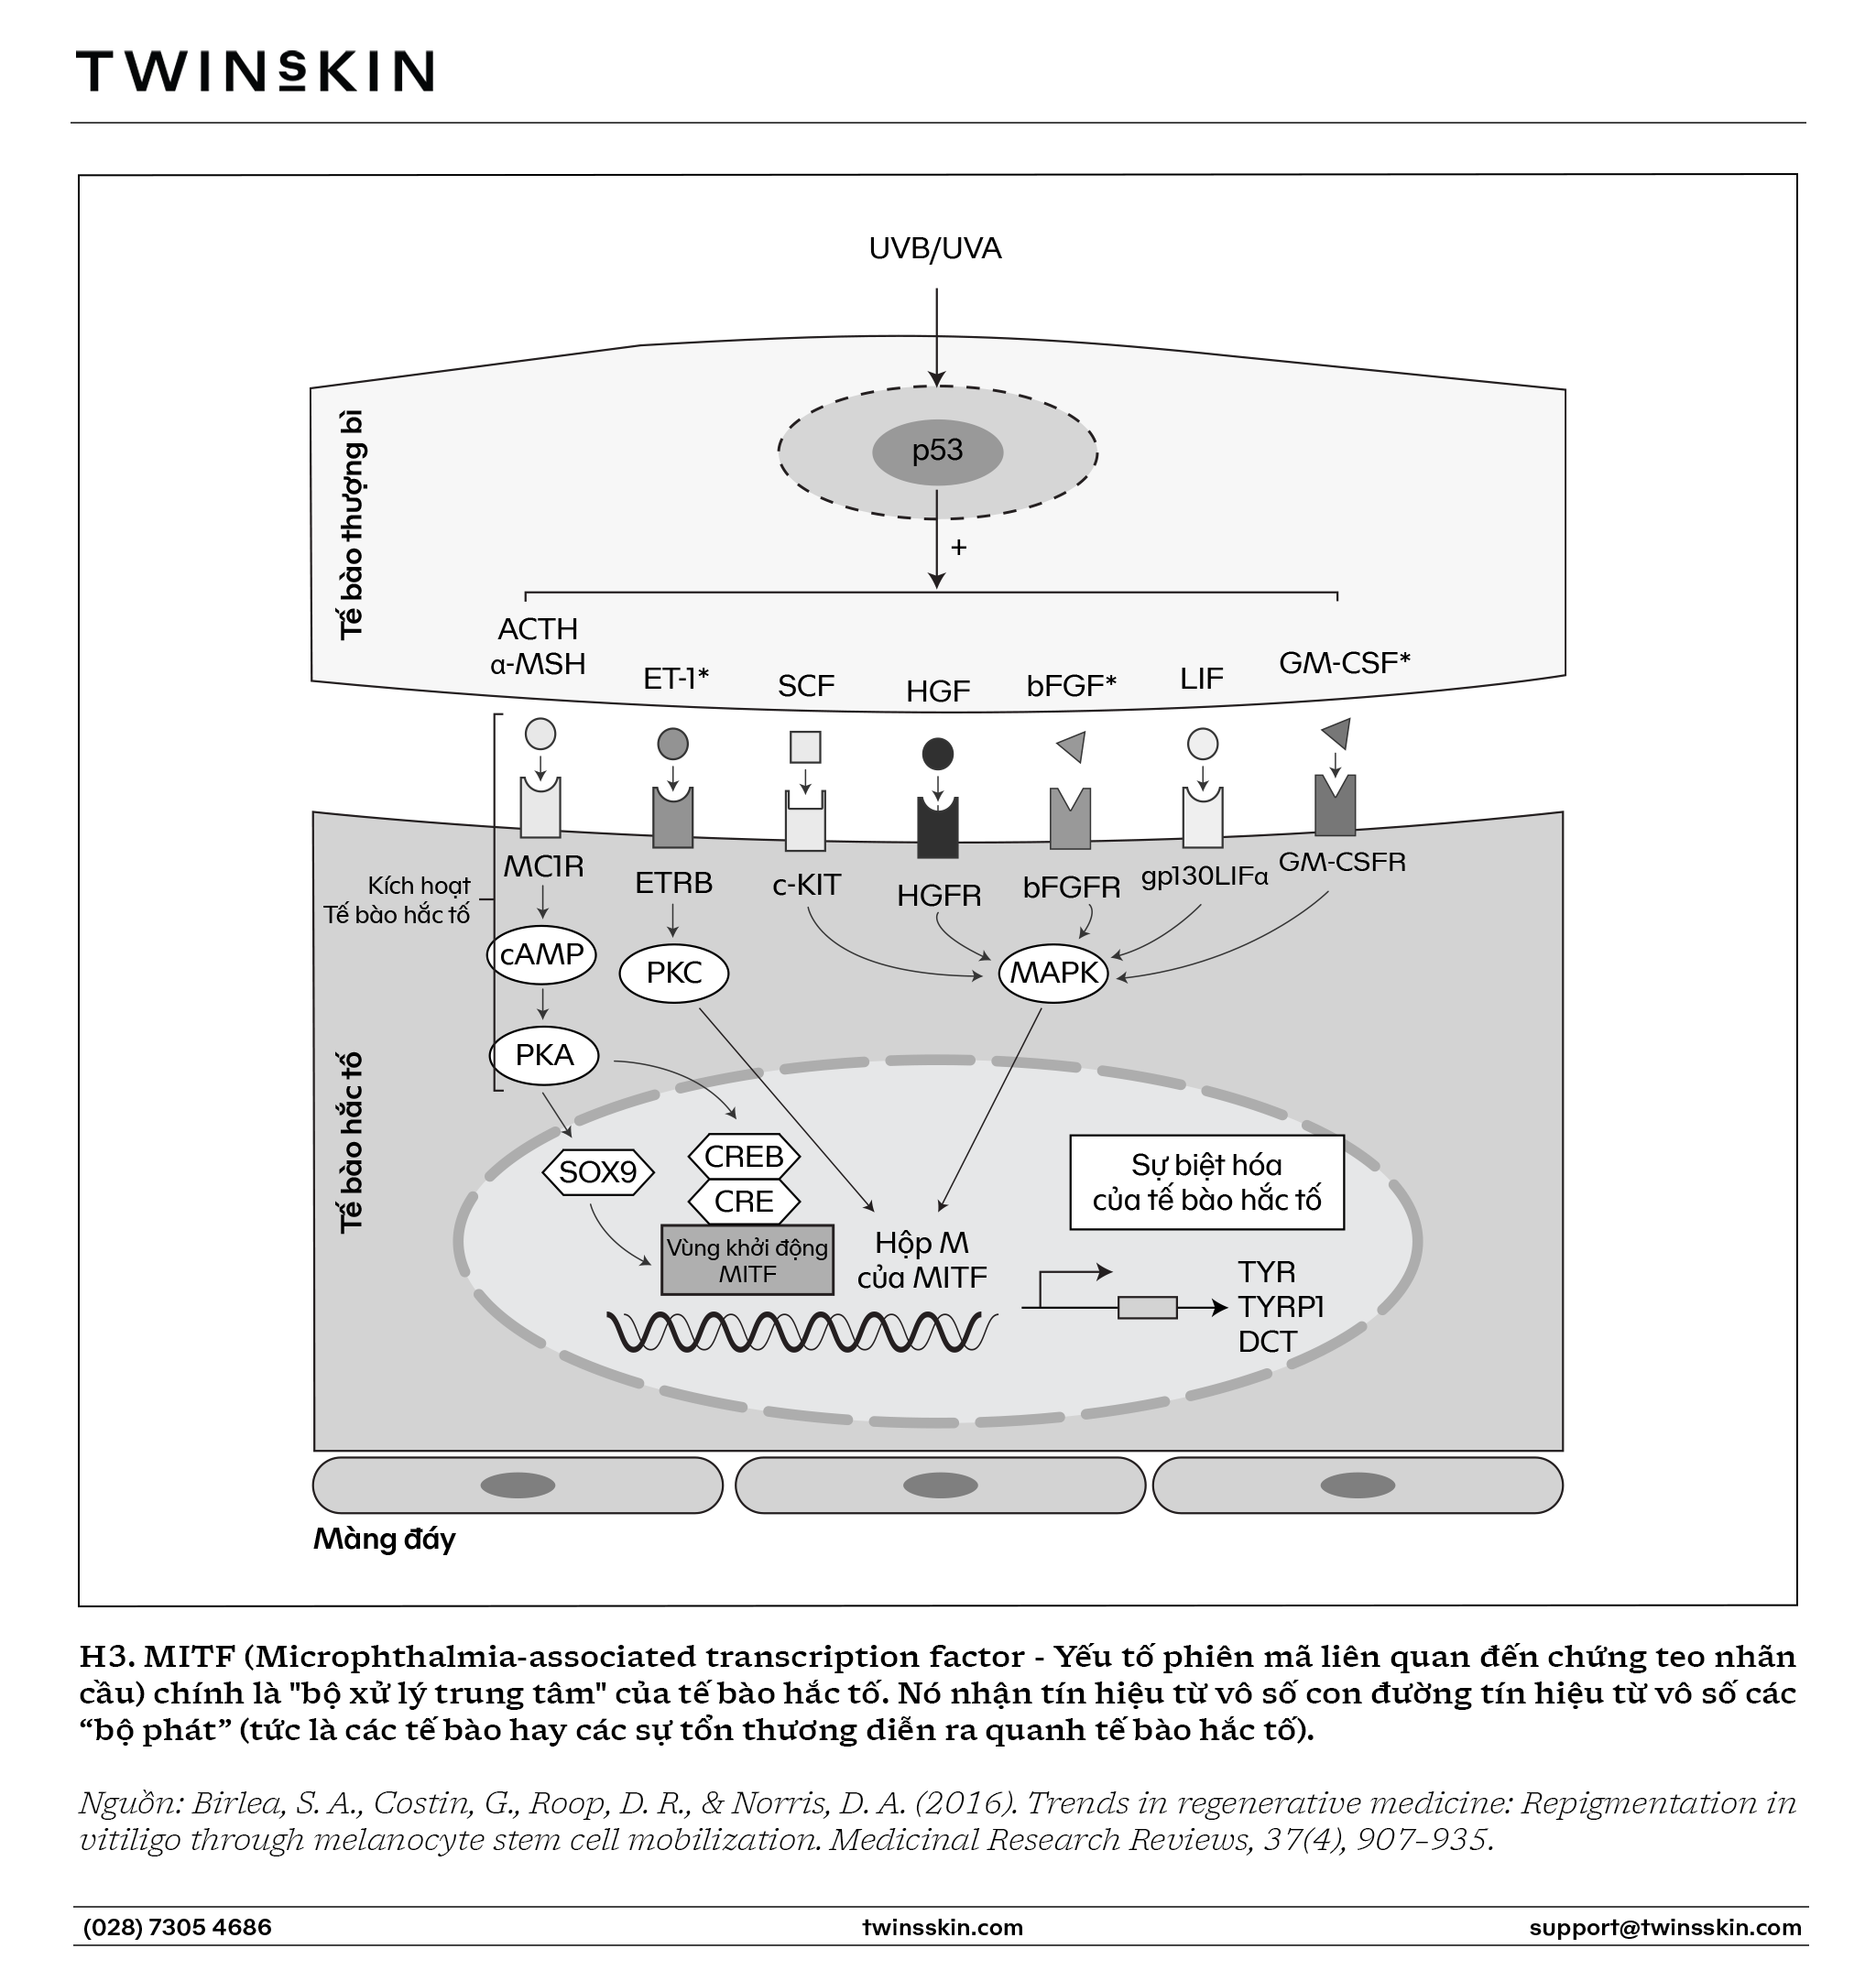
Các tín hiệu bệnh lý trong nám không cần “nhắm” vào từng enzyme. Chúng chỉ cần kích hoạt một trong các con đường của MITF là đủ để “bật công tắc” cho toàn bộ “nhà máy” enzyme sinh chuyển sắc tố, gây ra sự sản xuất melanin ồ ạt. Rối loạn trong nám, do đó, là ở sự kích hoạt quá mức của toàn bộ mô-đun enzyme này, do mệnh lệnh sai lầm từ các hệ thống tín hiệu bên ngoài.
Nhưng như vậy thì đã đủ để “chốt hạ” những hiểu biết về nám chưa?
Liệu hiểu tyrosinase, TRP-1, TRP-2 hay yếu tố phiên mã MITF có là đủ chưa?
2. “Hậu cần” ẩn của nám – Vai trò của các ion kim loại kẽm, đồng và môi trường pH
Thật ra, hoạt động của hệ thống “nhà máy” sản xuất sắc tố kia hoàn toàn phụ thuộc vào một mạng lưới các protein và enzyme phụ trợ tinh vi khác – vốn thường bị bỏ qua. Đây là “cơ sở hạ tầng” ẩn, đảm bảo “nhà máy” có thể vận hành. Sự thất bại của cơ sở hạ tầng này gây ra bệnh bạch tạng, nhưng sự hiệu quả quá mức hoặc sự hỗ trợ liên tục của nó lại góp phần vào nám.
2.1. Hệ thống cung cấp cofactor kim loại nhằm hỗ trợ sự hoàn thiện của các enzyme sinh sắc tố
Đây là một trong những khía cạnh phức tạp của sinh học phân tử tế bào hắc tố. Phức hợp TRP là một hệ thống metalloenzyme (metallo- nghĩa là có kim loại, thế nên metalloenzyme có thể hiểu là enzyme có chứa một hoặc nhiều ion kim loại để hoàn thiện chức năng của nó), đòi hỏi một hệ thống hậu cần tinh vi để cung cấp đúng kim loại, cho đúng enzyme, tại đúng vị trí. Tế bào hắc tố phải quản lý sự cân bằng nội môi của ít nhất hai kim loại khác nhau:
- Tyrosinase (TYR) cần ion Đồng (Cu²⁺): Tyrosinase ở trạng thái mới tổng hợp (apo-tyrosinase) là một enzyme không hoạt động. Nó cần được “nạp” hai ion đồng vào trung tâm hoạt động. Quá trình này được thực hiện bởi một enzyme vận chuyển đồng chuyên biệt, sử dụng năng lượng ATP (gọi tắt là ATPase) có tên là ATP7A. ATP7A bơm Cu²⁺ từ bào tương vào mạng lưới bộ máy Golgi và túi sắc tố melanosome.
Hệ quả: Nếu ATP7A thất bại (như trong Bệnh Menkes, gây giảm sắc tố), gen TYR vẫn được phiên mã, protein tyrosinase vẫn được tạo ra, nhưng nó là một “xác” protein không có chức năng. Điều này cho thấy tầm quan trọng của hệ thống hậu cần: không có đồng, không có melanin.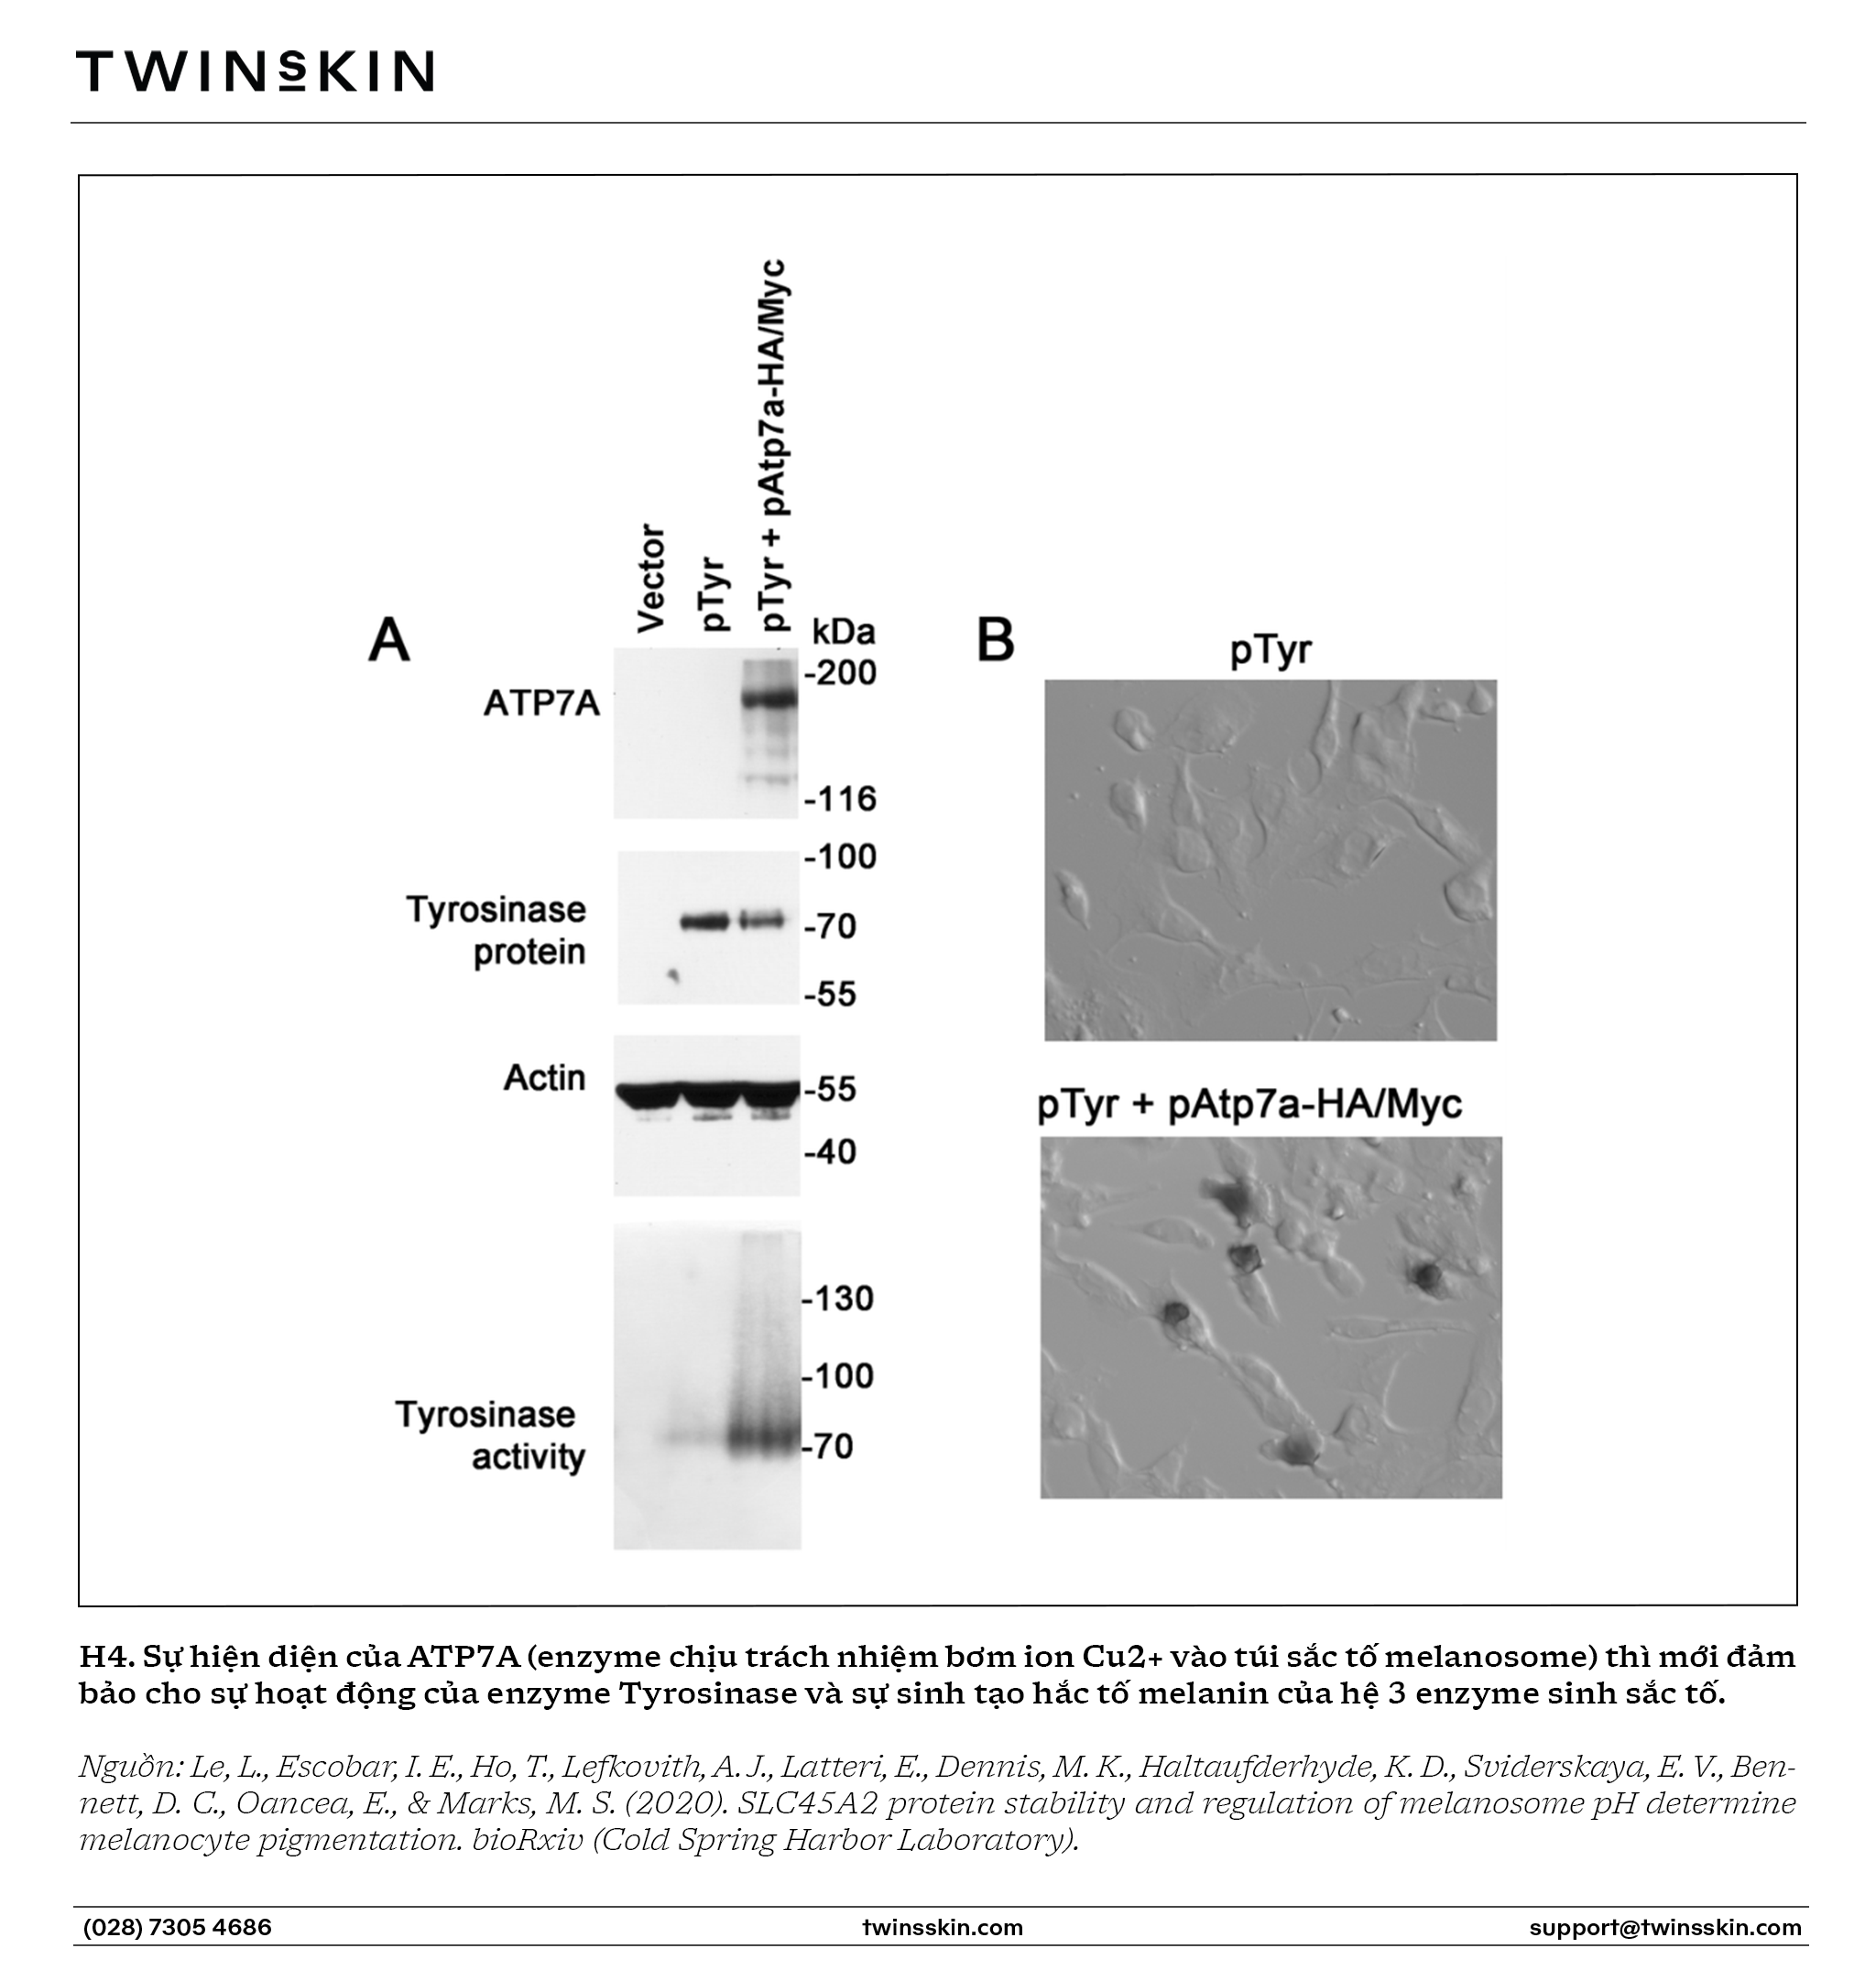
- TRP-1 và TRP-2 cần ion Kẽm (Zn²⁺): Gần đây, các nghiên cứu đã xác nhận rằng chức năng của TRP-1 (và có thể cả TRP-2) là các metalloenzyme phụ thuộc vào kẽm. Chúng cần Zn²⁺ để ổn định cấu trúc và chức năng. Việc cung cấp kẽm này được quản lý bởi các protein vận chuyển kẽm chuyên biệt như ZNT5, ZNT6, ZNT7.
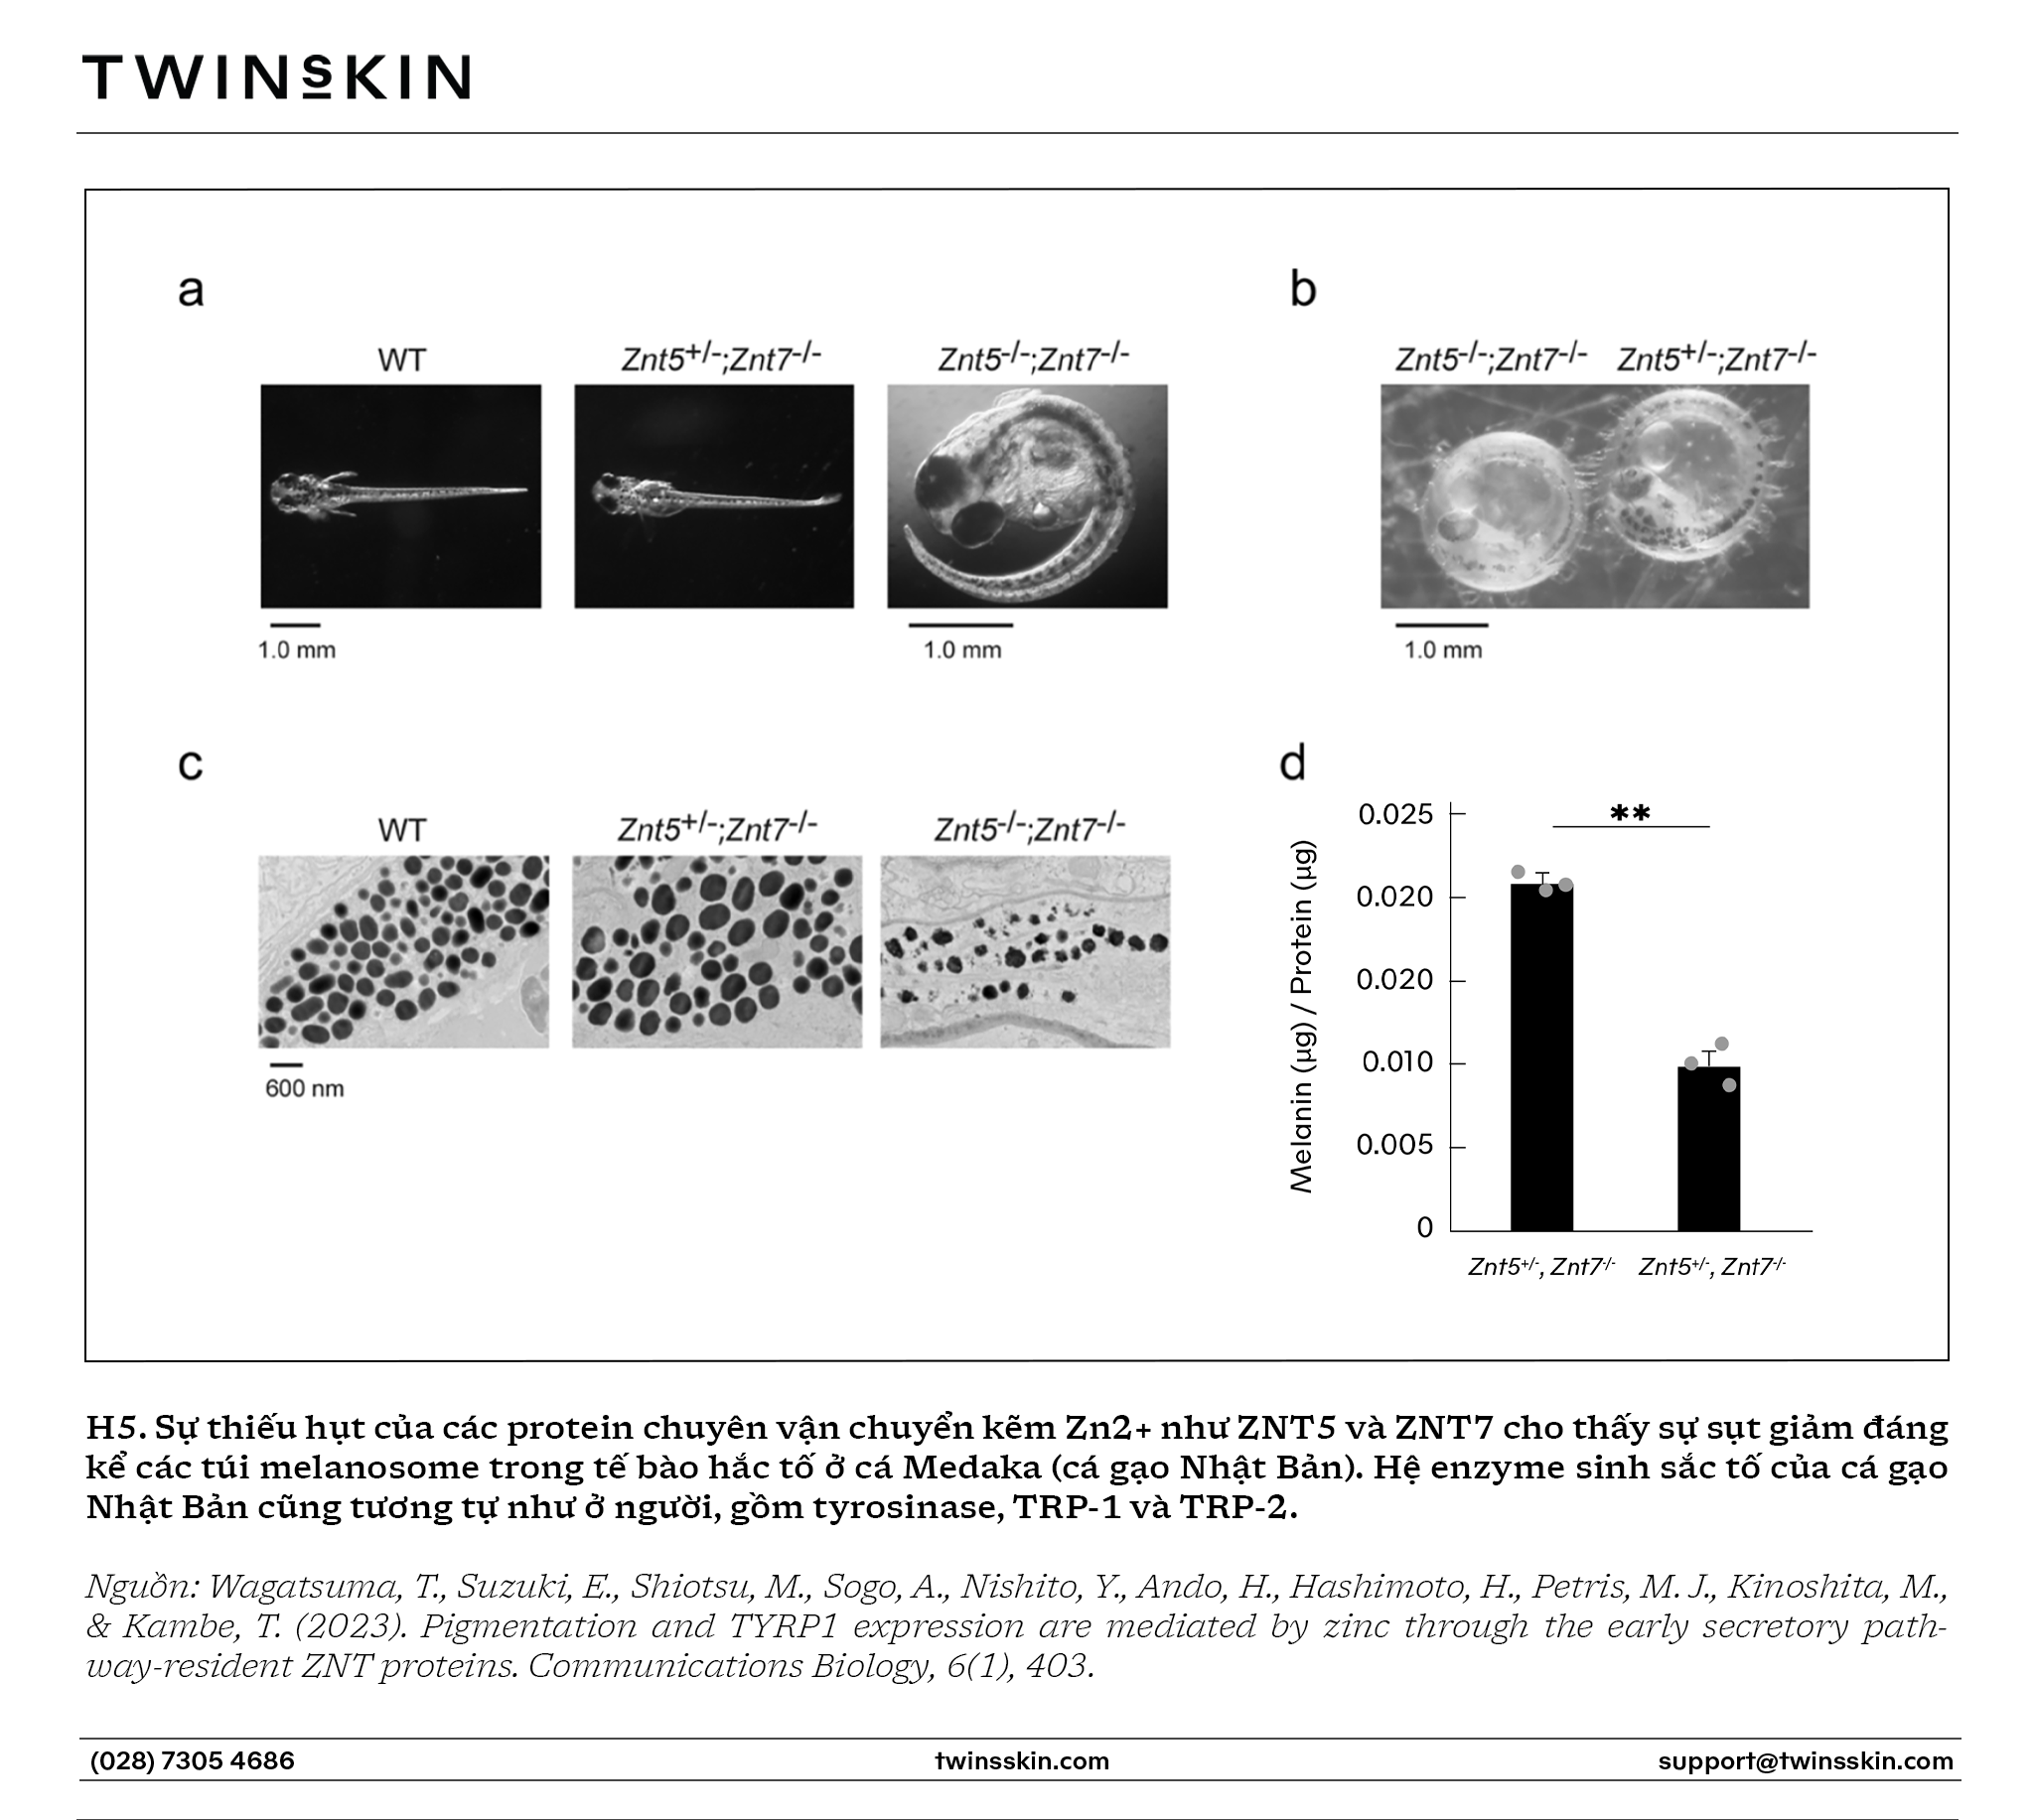
Sự phụ thuộc vào hai kim loại riêng biệt (Đồng và Kẽm) cho thấy một tầng điều hòa cực kỳ tinh vi. Tế bào hắc tố phải quản lý hai hệ thống vận chuyển kim loại song song. Bất kỳ sự mất cân bằng nào trong nội môi kim loại hoặc hoạt động của các enzyme vận chuyển này đều có thể ảnh ảnh hưởng gián tiếp đến toàn bộ quá trình sản xuất melanin, mở ra các mục tiêu điều trị mới ngoài việc ức chế tyrosinase hay hệ enzyme sinh sắc tố.
Mở rộng thêm, Twins nhận thấy đâu đó ngoài kia vẫn có một “nỗi sợ vô hình”: Liệu việc sử dụng các loại đồng peptide, như trong sản phẩm Biovector Copper Peptide của Twins Skin có nguy cơ gây tăng sắc tố hay không (vì đã biết tyrosinase cần đồng để hoạt động)?
→ Mặc dù enzyme tyrosinase bên trong melanosome CẦN đồng (Cu²⁺) để hoạt động, việc bôi đồng peptide lên bề mặt da không đồng nghĩa với việc “nạp” đồng trực tiếp cho enzyme này. Quá trình kích hoạt tyrosinase đòi hỏi một hệ thống vận chuyển nội bào cực kỳ chuyên biệt để bơm đồng vào đúng vị trí.
Ngược lại, đồng peptide trong mỹ phẩm hoạt động chủ yếu như một peptide tín hiệu. Vai trò nổi bật hơn nữa của đồng peptide là hoạt tính kìm viêm mạnh mẽ và kích thích nguyên bào sợi tại trung bì tổng hợp collagen-elastin, giúp sửa chữa các tổn thương trong cấu trúc da.
Do đó, thay vì gây nám, đồng peptide thực ra giúp bình thường hóa môi trường da và sửa chữa các tổn thương (vốn là gốc rễ của nám), khiến nó trở thành một thành phần hỗ trợ điều trị, chứ không phải là nguyên nhân gây tăng sắc tố.
2.2. Hệ thống kiểm soát độ pH môi trường bên trong các túi sắc tố melanosome để tối ưu phản ứng sinh sắc tố
Melanosome là một loại bào quan chuyên biệt của tế bào hắc tố, chứa bộ 3 “nhà máy” sản sinh sắc tố – tyrosinase, TRP-1 và TRP-2. Chúng là một trong số một nhóm các “bào quan liên quan đến lysosome” (lysosome-related organelle – LRO). Do đó, về bản chất, các “pre-melanosome” (tiền melanosome) ở các giai đoạn I và II có môi trường acid khá mạnh (pH ~4-5) – hơi tương tự các lysosome có trong tế bào.
Các giai đoạn trưởng thành của một melanosome sẽ bao gồm các giai đoạn:
- Giai đoạn I và II là lúc hệ “giàn giáo” Pmel17 được dựng lên bên trong túi melanosome;
- Giai đoạn III là lúc quá trình sản sinh sắc tố melanin bắt đầu và melanin bắt đầu “lắng” lên hệ thống giàn giáo Pmel17;
- Giai đoạn IV là khi túi melanosome chứa đầy sắc tố melanin đã hoàn thiện và sẵn sàng được vận chuyển.
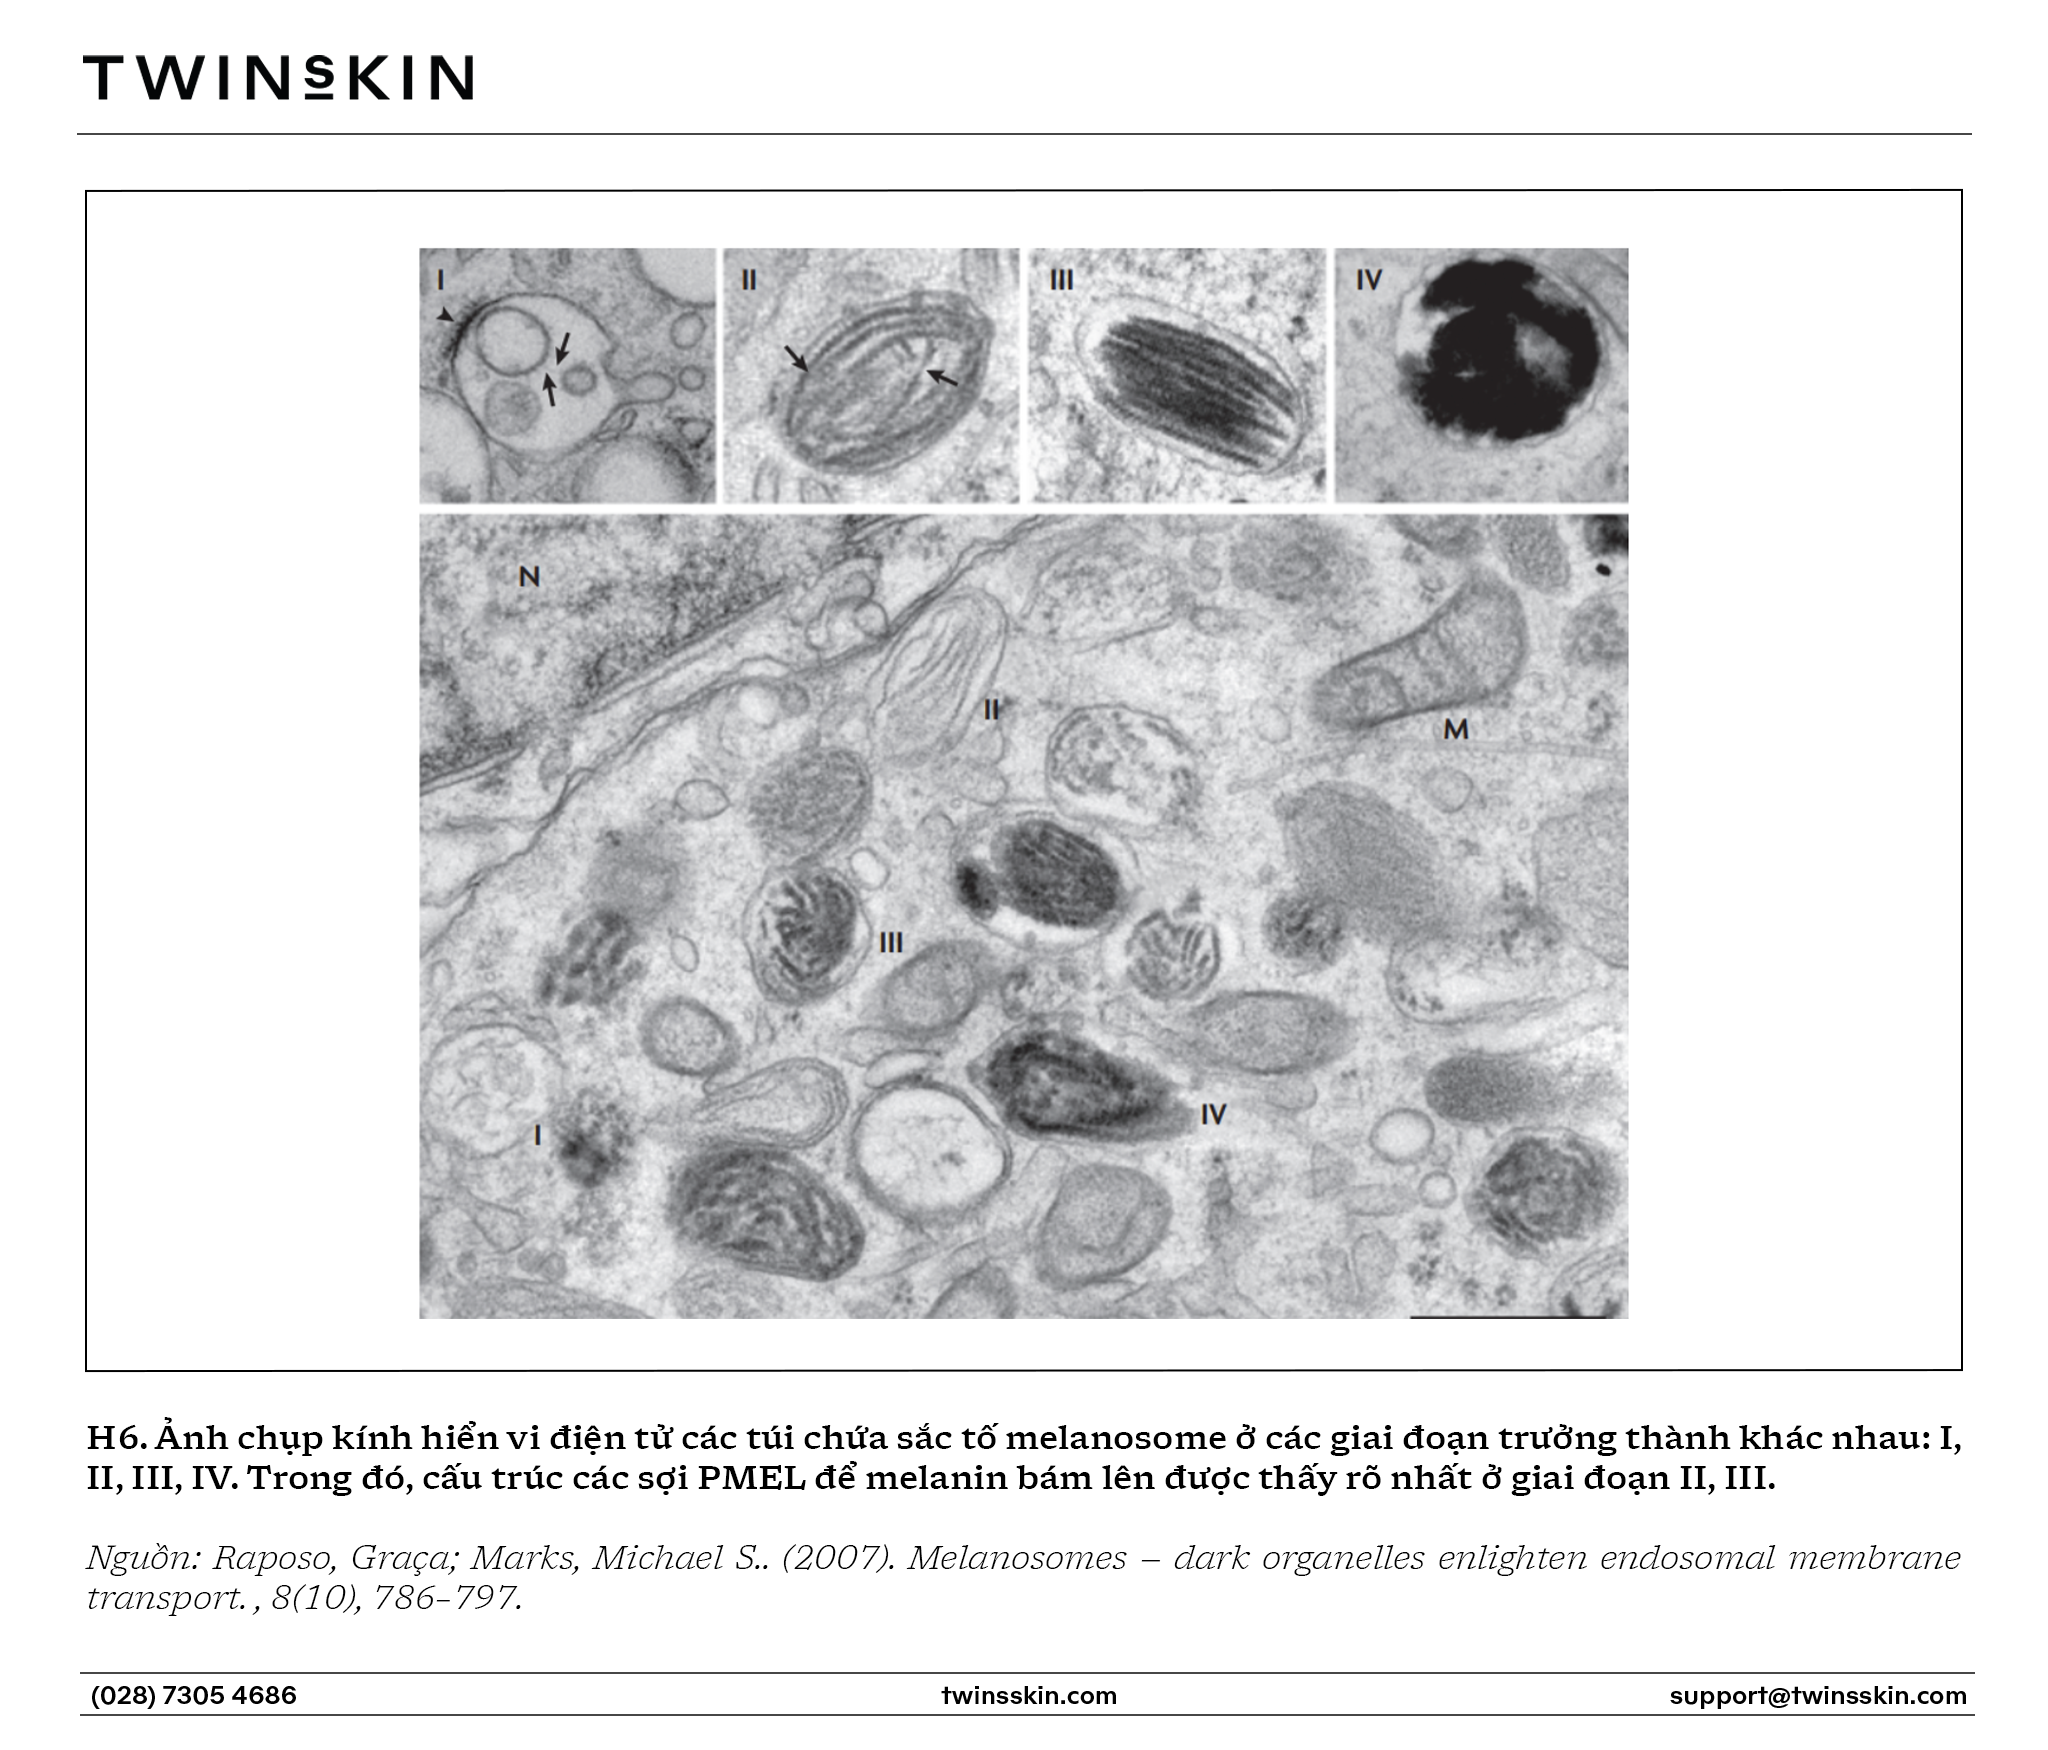
Ở giai đoạn đầu thì môi trường acid này không hẳn là một “lỗi”. Nó là cần thiết cho các bước ban đầu, ví dụ như việc xử lý và gấp cuộn protein cấu trúc Pmel17 (protein tạo nên “giàn giáo” sợi bên trong melanosome).
Vấn đề là: Enzyme tyrosinase chỉ hoạt động tối ưu ở pH gần trung tính (~6.8). Môi trường acid của melanosome giai đoạn đầu sẽ ức chế hoàn toàn tyrosinase.
May thay, tế bào hắc tố sở hữu các protein màng chuyên biệt để “trung hòa” melanosome khi nó trưởng thành. Hai protein then chốt là OCA2 và SLC45A2 (còn gọi là MATP). Khi túi sắc tố melanosome chuyển dần sang giai đoạn III (giai đoạn bắt đầu tổng hợp melanin), hai protein này hoạt động như các kênh ion hoặc chất đồng vận chuyển, bơm các ion ra/vào để chủ động tăng độ pH của bào quan từ ~4.5 lên ~6.8.
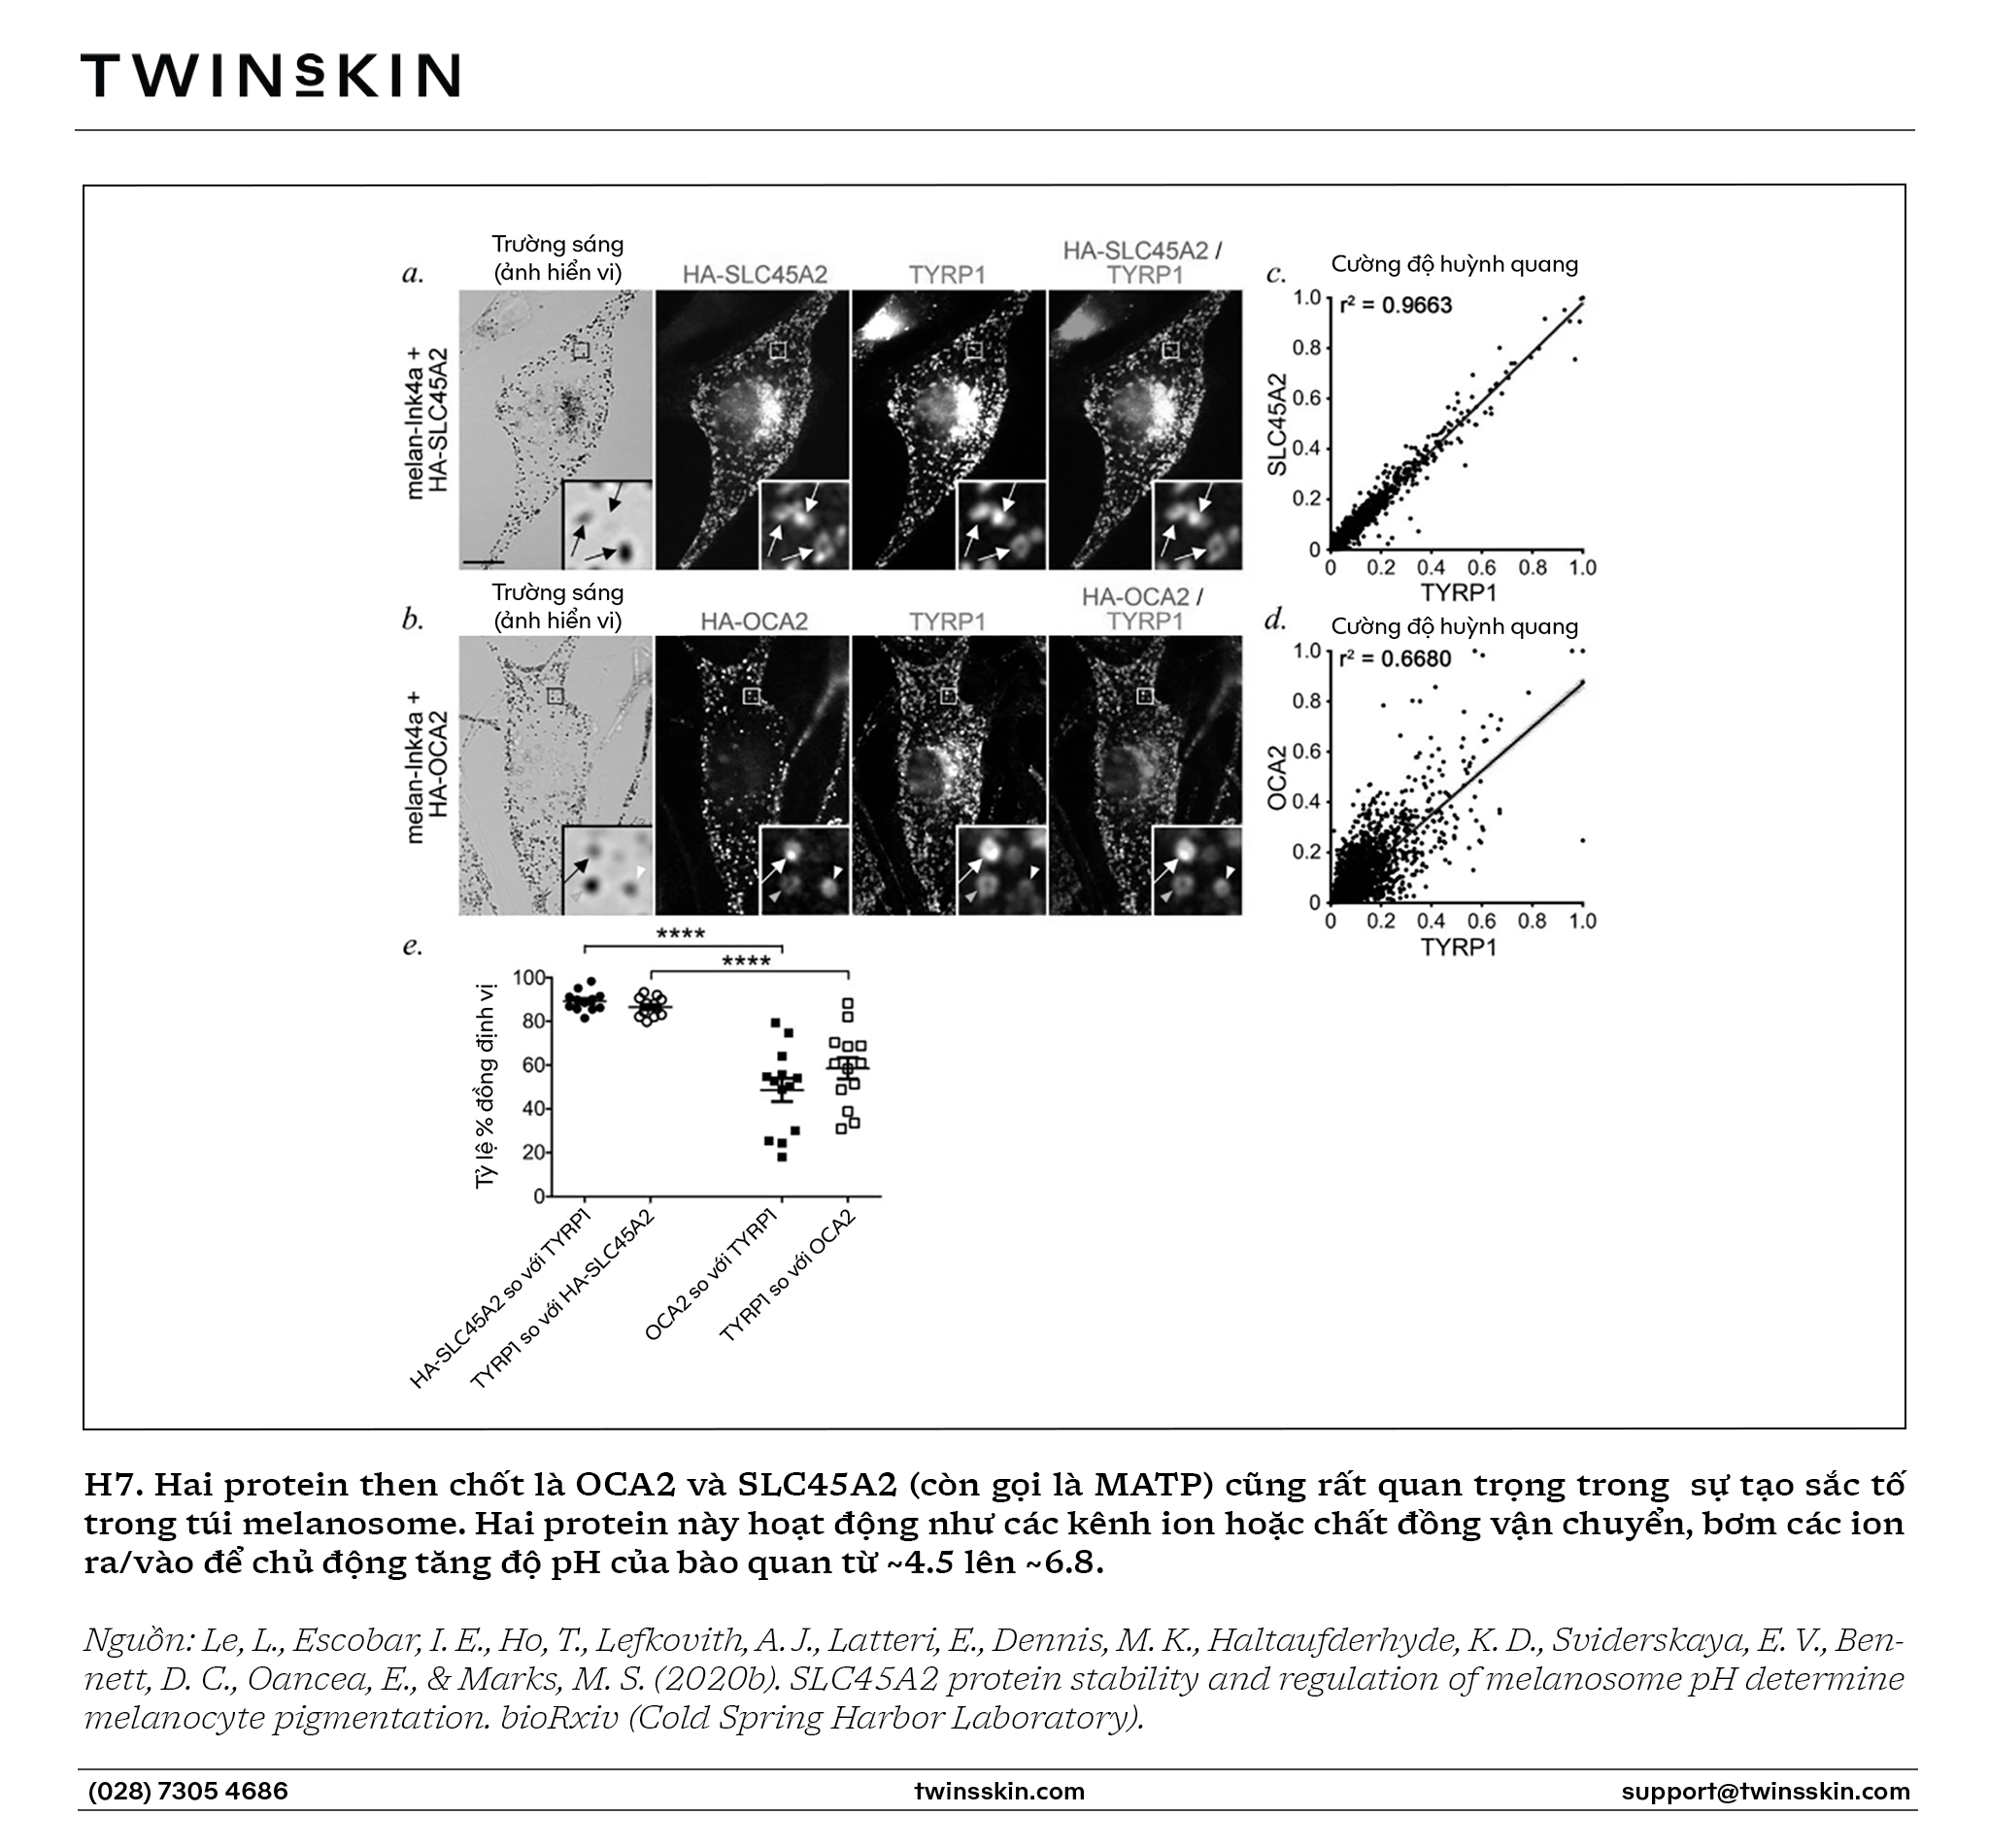
Sự khiếm khuyết trong các protein này (gây ra bệnh bạch tạng mắt-da loại 2 và 4) dẫn đến các túi melanosome bị acid hóa vĩnh viễn, làm cho tyrosinase không hoạt động ngay cả khi enzyme này hoàn toàn bình thường. Trong sinh bệnh học nám, sự điều tiết hiệu quả và chính xác của hệ thống pH này là một điều kiện bắt buộc để hệ thống enzyme sinh sắc tố có thể hoạt động hết công suất.
3. Hệ thống các “shipper” phân tử – Cỗ máy vận chuyển các túi chứa sắc tố melanosome đến đích
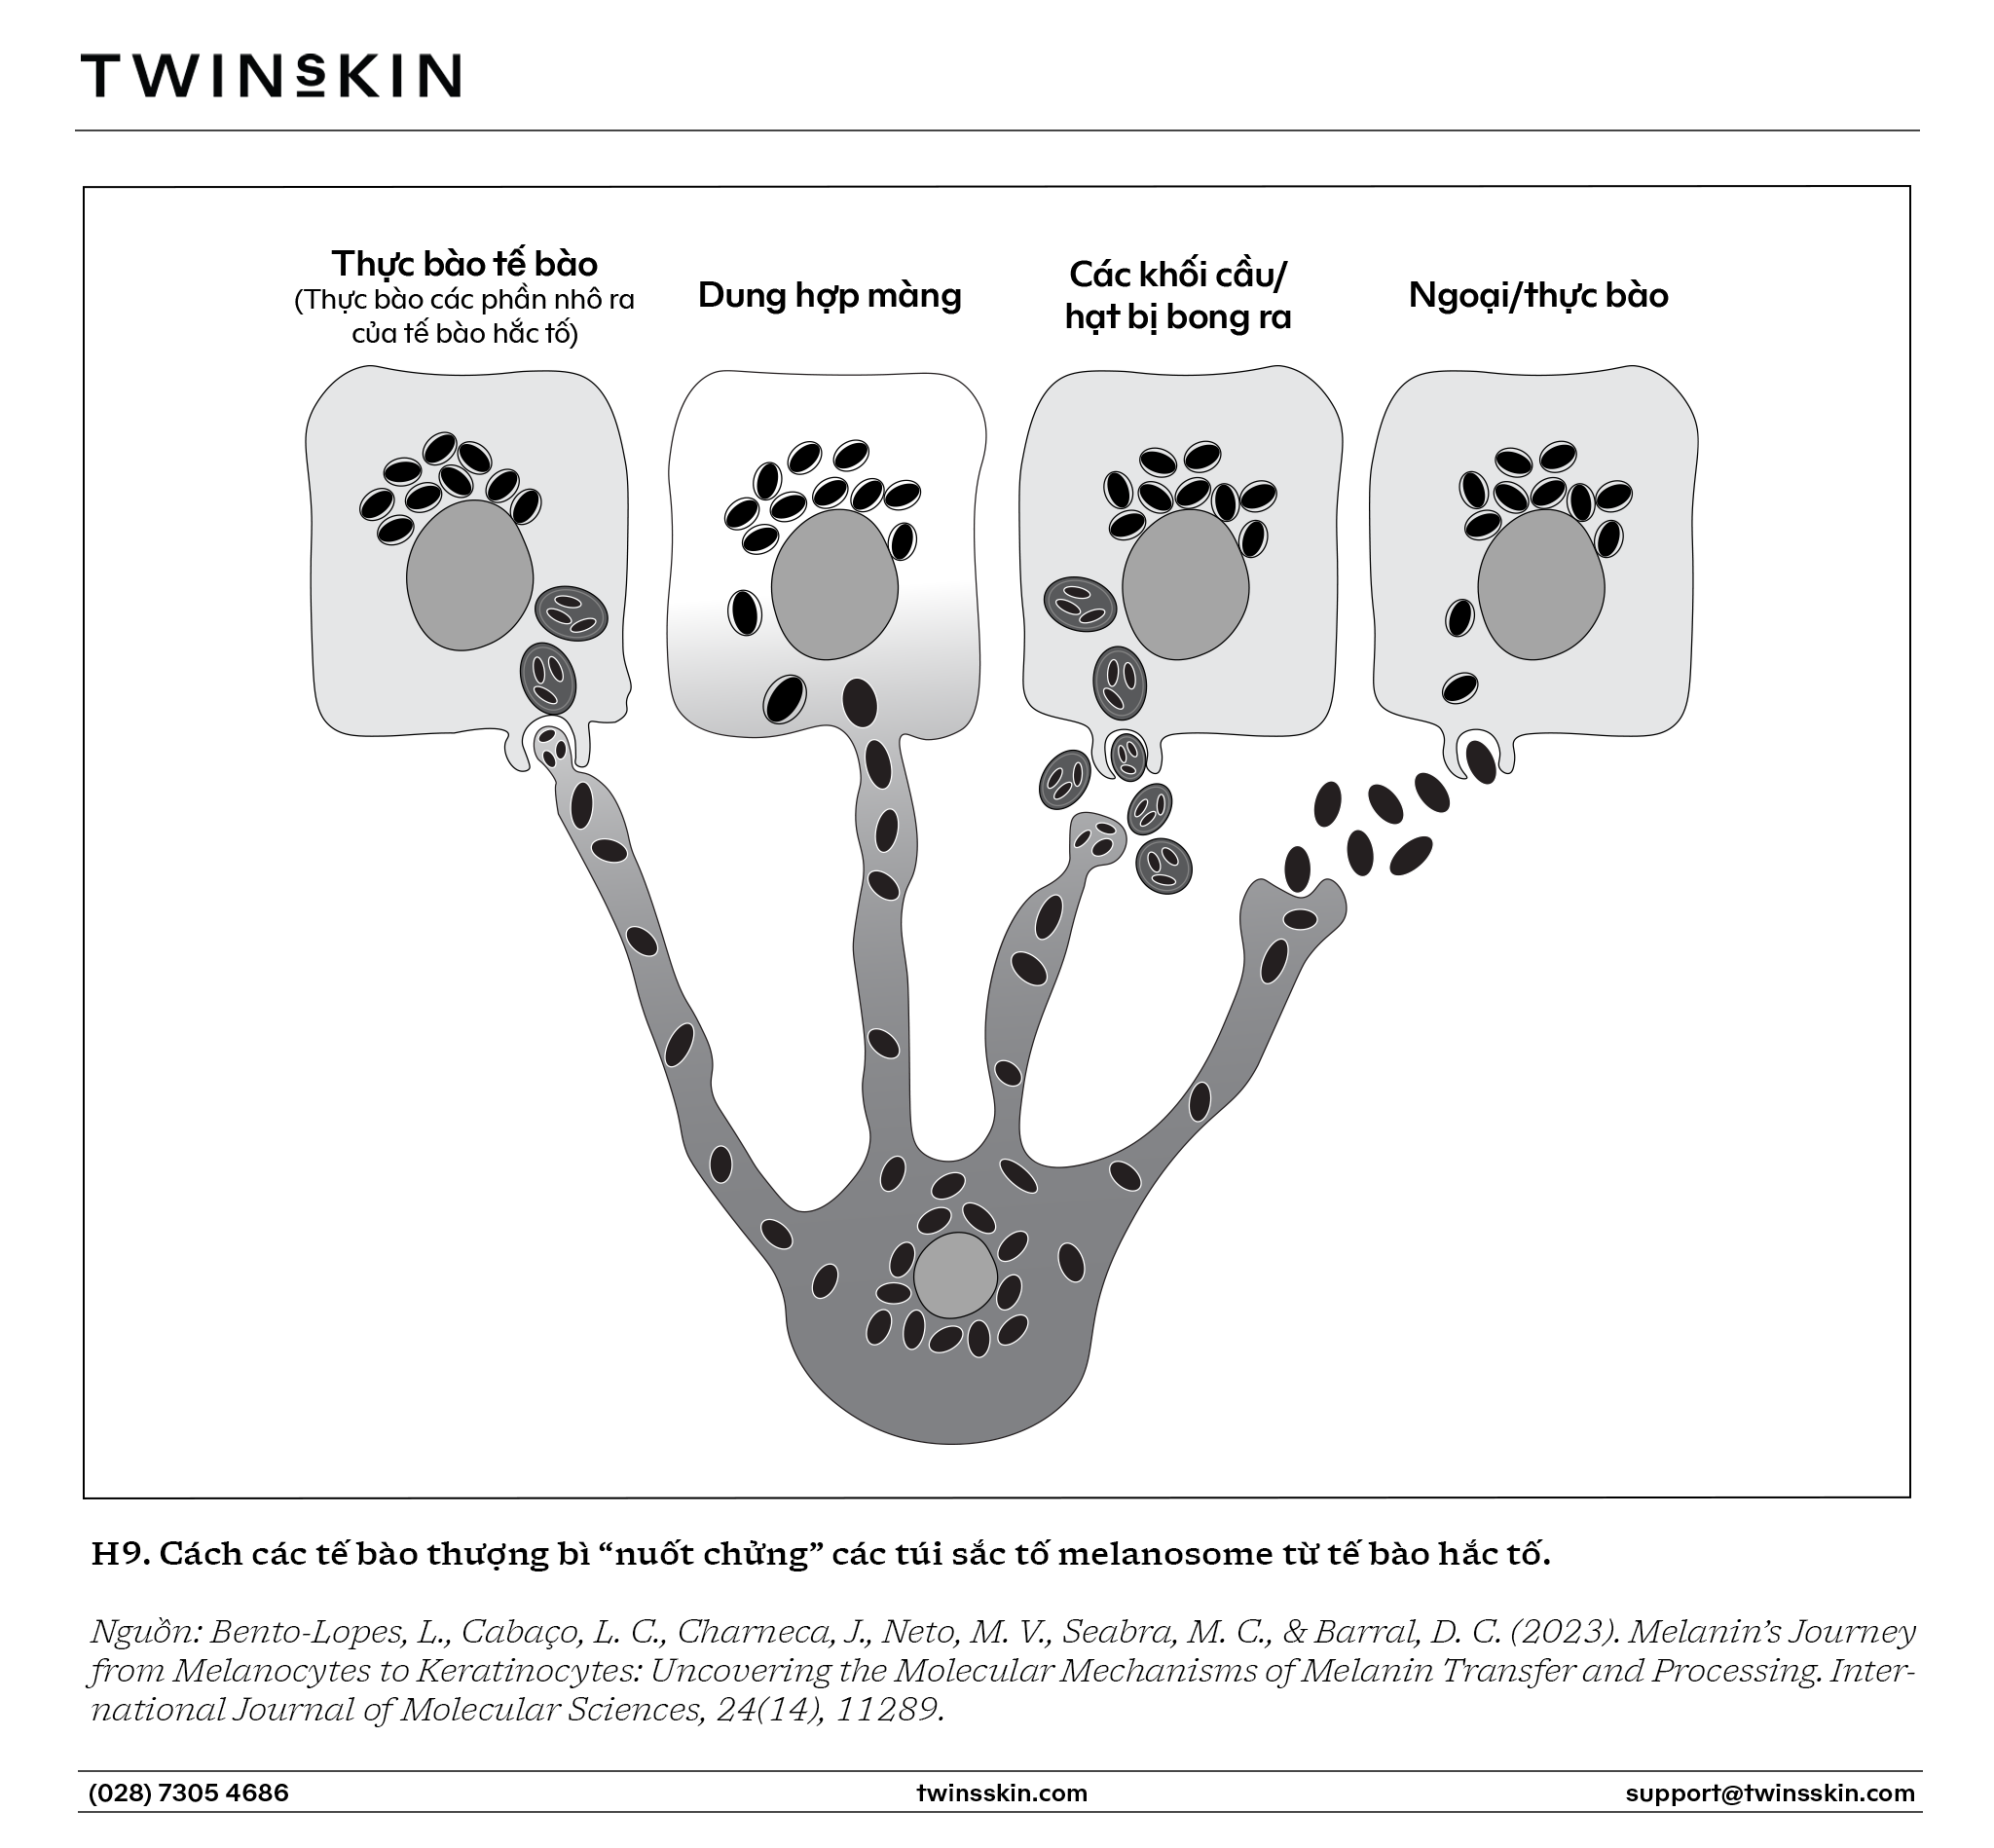
Melanin được sản xuất trong tế bào hắc tố, nhưng nó phải được “chuyển giao” cho các tế bào thượng bì (keratinocyte) xung quanh để tạo ra màu da. Quá trình này cực kỳ phức tạp, bao gồm hai giai đoạn:
- Vận chuyển tầm xa: Melanosome (gói sắc tố) là một “kiện hàng” vừa được sản xuất xong tại “nhà kho” (khu vực quanh nhân tế bào). Để đi ra ngoài gần màng tế bào, nó cần một hệ thống “đường ray cao tốc”. Hệ thống này chính là các vi ống (microtubule) – có thể hình dung đây là hệ thống đường ray xe lửa liên tỉnh, là bộ khung xương chính của tế bào, giúp vận chuyển hàng hóa đi xa. “Đoàn tàu” kéo kiện hàng đi là các “động cơ phân tử”- về cơ bản là những protein tí hon “biết đi” và kéo theo hàng hóa – có tên là Kinesin (chuyên chạy ra) và Dynein (chuyên chạy vào).
- Vận chuyển tầm ngắn và neo đậu: Khi “đoàn tàu” (trên đường ray vi ống) đến “trạm trung chuyển” (khu vực đầu tua gai), túi chứa melanosome phải được dỡ xuống và chuyển sang một hệ thống “đường nội bộ” nhỏ hơn để đến đúng địa chỉ giao hàng. “Đường nội bộ” này chính là các sợi actin. Quá trình này là then chốt để “neo” kiện hàng lại, không để nó trôi ngược vào “nhà kho”.
Công việc chuyển vận này được thực hiện bởi “phức hợp ba thành phần” (tripartite complex):
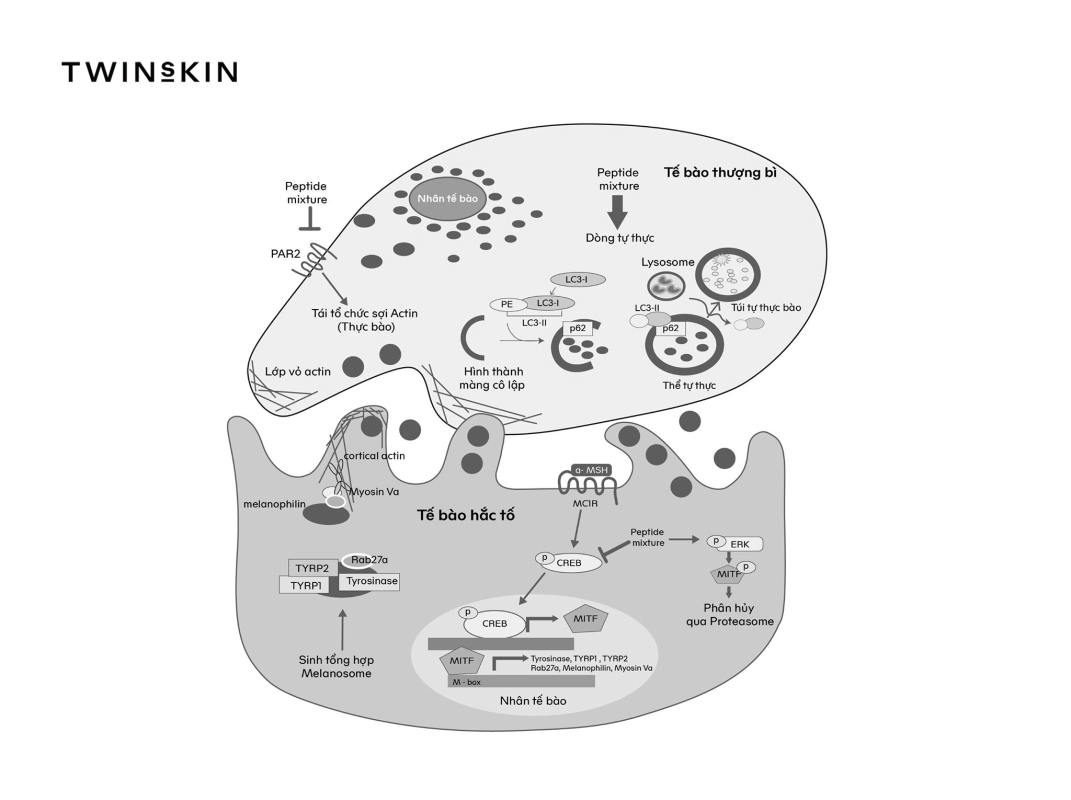
- Rab27a: Đây là “người giám sát” nằm trên vỏ của “kiện hàng” melanosome. Về mặt kỹ thuật, nó là một protein GTPase.
Có thể hiểu đơn giản đây là một “công tắc” có thể bật/ tắt. Khi được nạp năng lượng (bởi một phân tử gọi là GTP), công tắc này “bật” lên, làm thay đổi hình dạng của nó. Sự thay đổi này chính là tín hiệu, hoạt động như một “mã bưu chính” hoặc “điểm neo”, báo hiệu rằng “Kiện hàng này đã sẵn sàng để được giao” và đồng thời tuyển dụng “người liên lạc”.
- Melanophilin (MLPH): Đây là “người liên lạc”. Vai trò của nó đơn giản là “kết nối”, với thiết kế đặc biệt với hai “tay” (tức là hai vị trí liên kết): một tay nó nắm chặt lấy Rab27a (đang ở trên kiện hàng), tay còn lại nó chìa ra để tìm và nắm lấy “người vận chuyển”.
- Myosin Va (Myo5a): Đây là “người vận chuyển” thực thụ. Nó là một “động cơ phân tử” sử dụng ATP – nguồn năng lượng tức thời, giống như “pin” của tế bào – để bước đi dọc theo con đường làm bằng sợi actin. Vì Myosin Va đã được “người liên lạc” (MLPH) kết nối với “kiện hàng” melanosome, mỗi bước đi của nó sẽ kéo theo toàn bộ kiện hàng ra sát màng tế bào. Nó không chỉ kéo ra mà còn giữ chặt (neo đậu) kiện hàng ở đó, sẵn sàng cho bước cuối cùng: được tế bào thượng bì “nuốt” lấy. Quá trình “nuốt” tế bào này có tên khoa học là thực bào (phagocytosis).
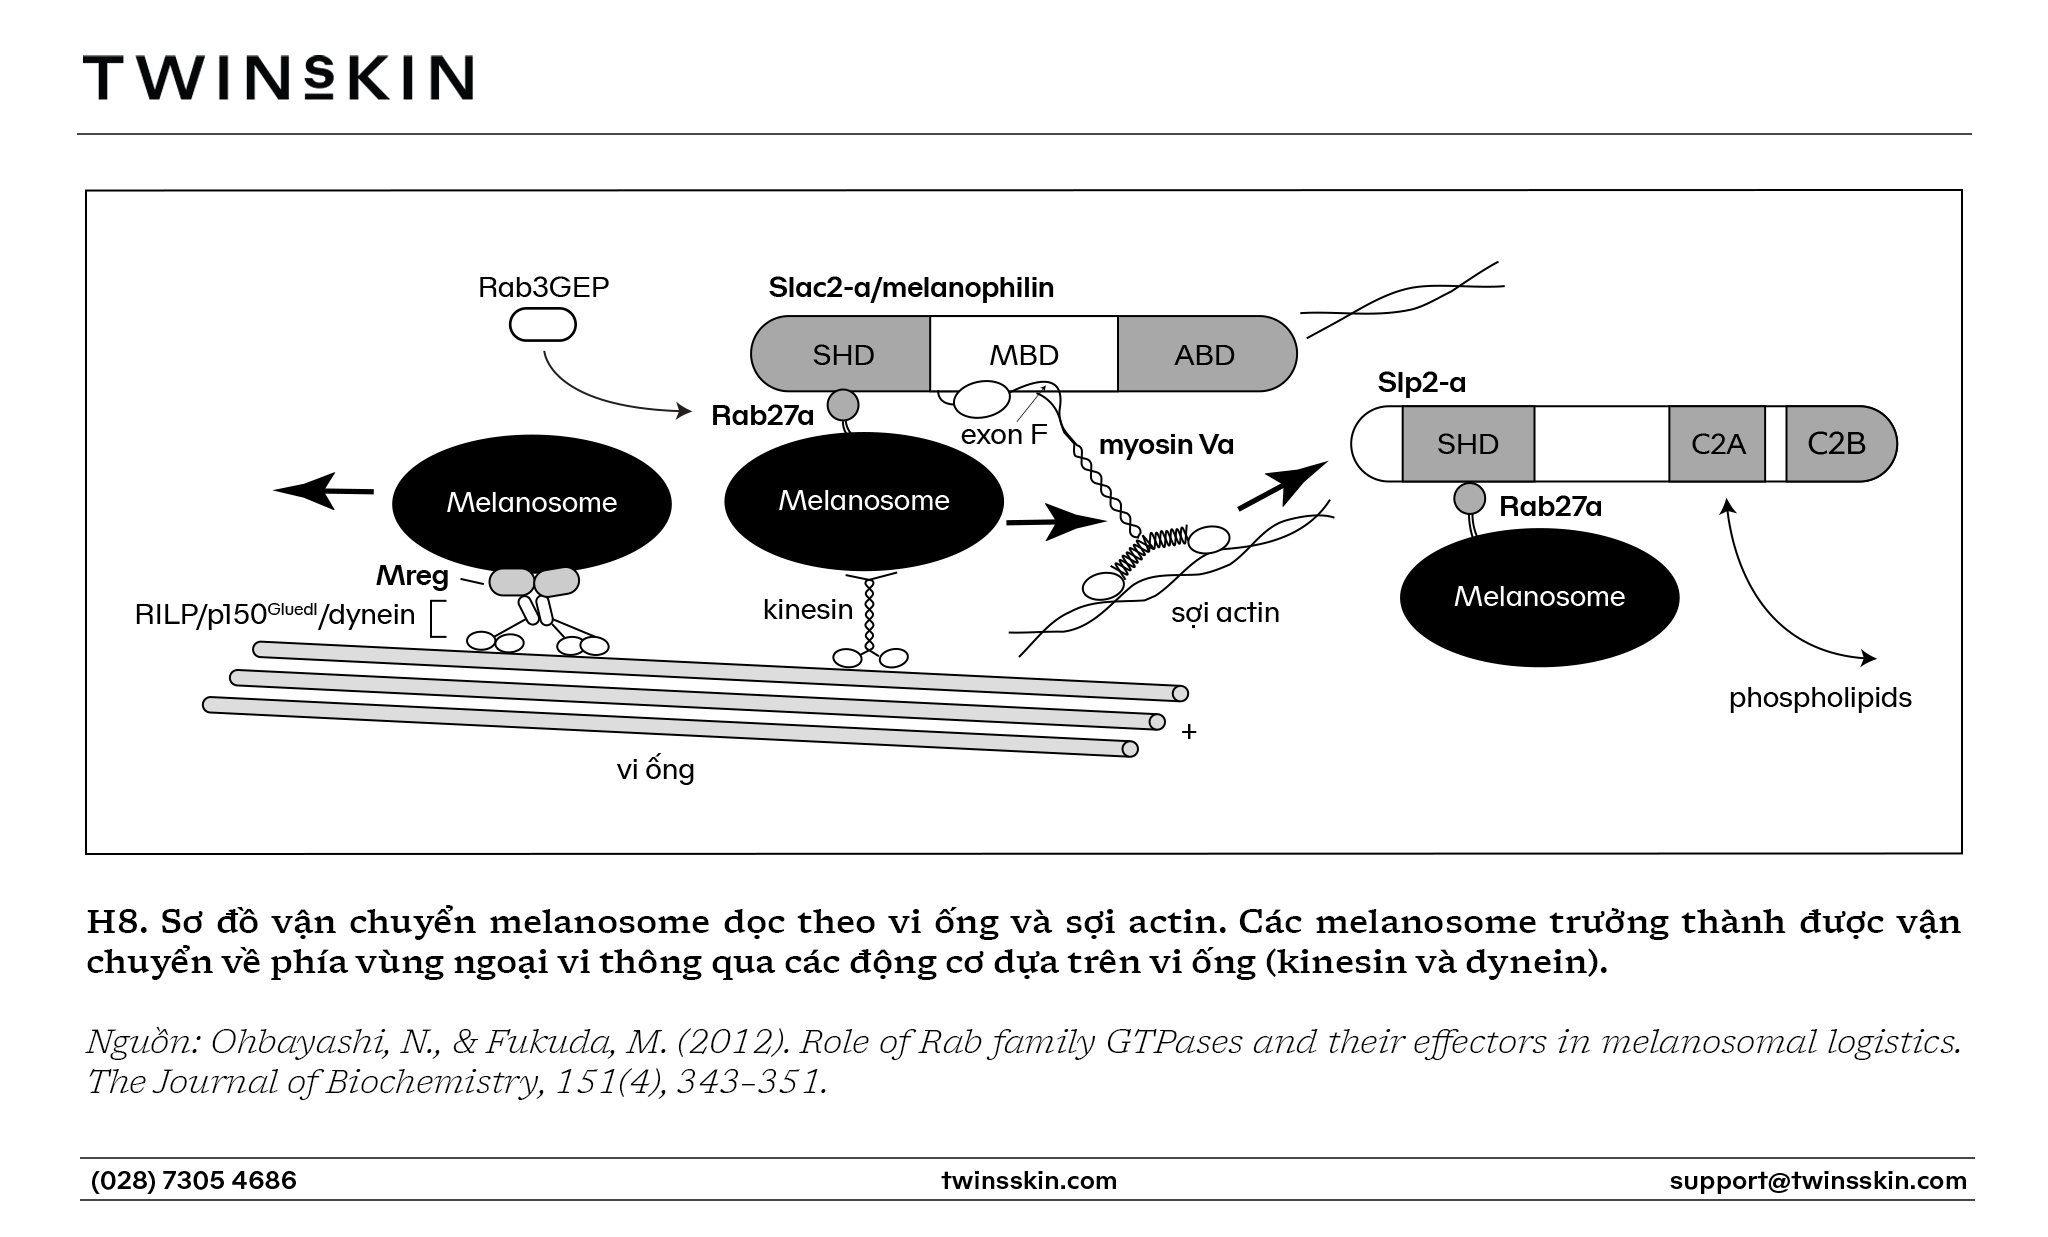
Tầm quan trọng của “đội shipper” 3 người này được minh chứng rõ nhất bởi di truyền học. Hội chứng Griscelli (Griscelli syndrome) là một bệnh di truyền hiếm gặp. Những người mắc bệnh này có đột biến gen làm hỏng bất kỳ ai trong ba “shipper” này (Rab27a, MLPH, hoặc Myo5a). Hậu quả? Melanosome được sản xuất ra nhưng bị “kẹt” lại ở “nhà kho” tế bào hắc tố, không thể giao đi đâu cả. Kết quả lâm sàng là tình trạng giảm sắc tố nghiêm trọng (da và tóc trắng).
Qua đó, logic ngược từ Hội chứng Griscelli (hỏng = giảm sắc tố) cho ta một suy luận quan trọng: Nếu hệ thống này bị tăng cường hoạt động thì sao?
Trong nám, da bị stress (do UV, do viêm hay do các rối loạn hệ thống phức tạp như từ nguyên bào sợi, tế bào thượng bì, tế bào lão hoá…). Tế bào thượng bì (người nhận hàng) gửi tín hiệu “đòi hỏi” (tín hiệu SOS) đến tế bào hắc tố.
Một trong những tín hiệu “đòi hỏi” quan trọng nhất là thông qua việc kích hoạt thụ thể PAR-2 (Protease-Activated Receptor 2). Đây là một loại cảm biến trên bề mặt tế bào hắc tố. Khi da bị stress (như bị enzyme từ tế bào thượng bì “chọc” vào), cảm biến PAR-2 này sẽ báo động cho tế bào hắc tố rằng “Bên ngoài đang có vấn đề! Giao hàng nhanh lên!”.
→ Kết quả là toàn bộ hệ thống “shipper” này bị tăng cường điều tiết. Hậu quả cuối cùng là không chỉ sản xuất nhiều melanin hơn, mà còn “giao” các túi hàng sắc tố melanosome đến tế bào thượng bì một cách hiệu quả và nhanh chóng hơn, khiến các đốm nám trở nên rõ rệt và đậm màu.
 4. Gốc rễ mãn tính của sinh bệnh học nám – “Ổ viêm” lớp trung bì và nhóm các enzyme phá vỡ màng đáy
Đây là hệ thống quan trọng nhất để giải thích tại sao nám là một “rối loạn hệ thống” mãn tính và có tính “ẩm ương, khó trị, dễ tái phát”. Các enzyme trong hệ thống này không tạo ra sắc tố, nhưng chúng tạo ra một môi trường vi mô bệnh lý – tức là vừa khiến các tín hiệu sai lệch liên tục đến hệ thống thụ thể của tế bào hắc tố, tăng lượng enzyme sinh tạo sắc tố và phá vỡ cấu trúc vật lý của màng đáy – lớp liên kết giữa tầng thượng bì và tầng trung bì.
4.1. Mối liên kết then chốt: Tại sao phá vỡ màng đáy lại là gốc rễ của nám “chân sâu, khó trị”?
Trước hết, chúng ta cần hiểu về màng đáy (basement membrane – BM). Đây là một lớp cấu trúc mỏng manh nhưng cực kỳ quan trọng, nằm giữa lớp thượng bì (nơi có tế bào hắc tố) và lớp trung bì (nơi có collagen, elastin, nguyên bào sợi, mạch máu…). Nó hoạt động như một “hàng rào” vật lý và sinh học, ngăn cách hai thế giới.
Trong da nám mãn tính, đặc biệt là da bị lão hóa, hàng rào này bị tổn thương. Khi các enzyme phá hoại “đục thủng” màng đáy, chúng gây ra một hậu quả nghiêm trọng gọi là “sự mất kiểm soát sắc tố” (pigmentary incontinence), tức là: Sắc tố melanin không còn bị giới hạn và khu trú ở lớp thượng bì nữa, mà chúng “rơi vãi” xuống lớp trung bì bên dưới.
Khi đã “rơi” xuống lớp trung bì, melanin trở thành “dị vật”. Hệ thống miễn dịch của da lập tức phản ứng. Các tế bào đại thực bào (macrophage) – vốn là “lính dọn dẹp” của cơ thể – sẽ đến và “ăn” các hạt melanin này. Khi một đại thực bào đã “ăn” no melanin, nó được gọi bằng một cái tên mới: Đại thực bào “ngậm” sắc tố (Melanophage – là từ ghép của tiền tố melano- nghĩa là sắc tố và hậu tố -phage nghĩa là đại thực bào).
Sự hiện diện của các melanophage nằm rải rác ở lớp bì này chính là cơ chế bệnh sinh của nám trung bì (dermal melasma – hay còn gọi là nám chân sâu).
Đây chính là gốc rễ của nám, vì hai lý do:
- Vị trí sâu: Sắc tố nằm sâu ngoài tầm với của các hoạt chất bôi tại chỗ (như Hydroquinone, các loại Retinoid…) vốn chỉ hoạt động tốt ở lớp thượng bì.
- Không có chu trình tái tạo: Sắc tố ở thượng bì sẽ tự bong ra theo chu trình 28 ngày. Sắc tố nằm trong melanophage ở lớp trung bì thì không. Tế bào đại thực bào có thể “ôm” lấy sắc tố đó và “nằm ì” ở lớp bì trong nhiều tháng, thậm chí nhiều năm, khiến đốm nám trở nên gần như “bền vững trước thời gian”.
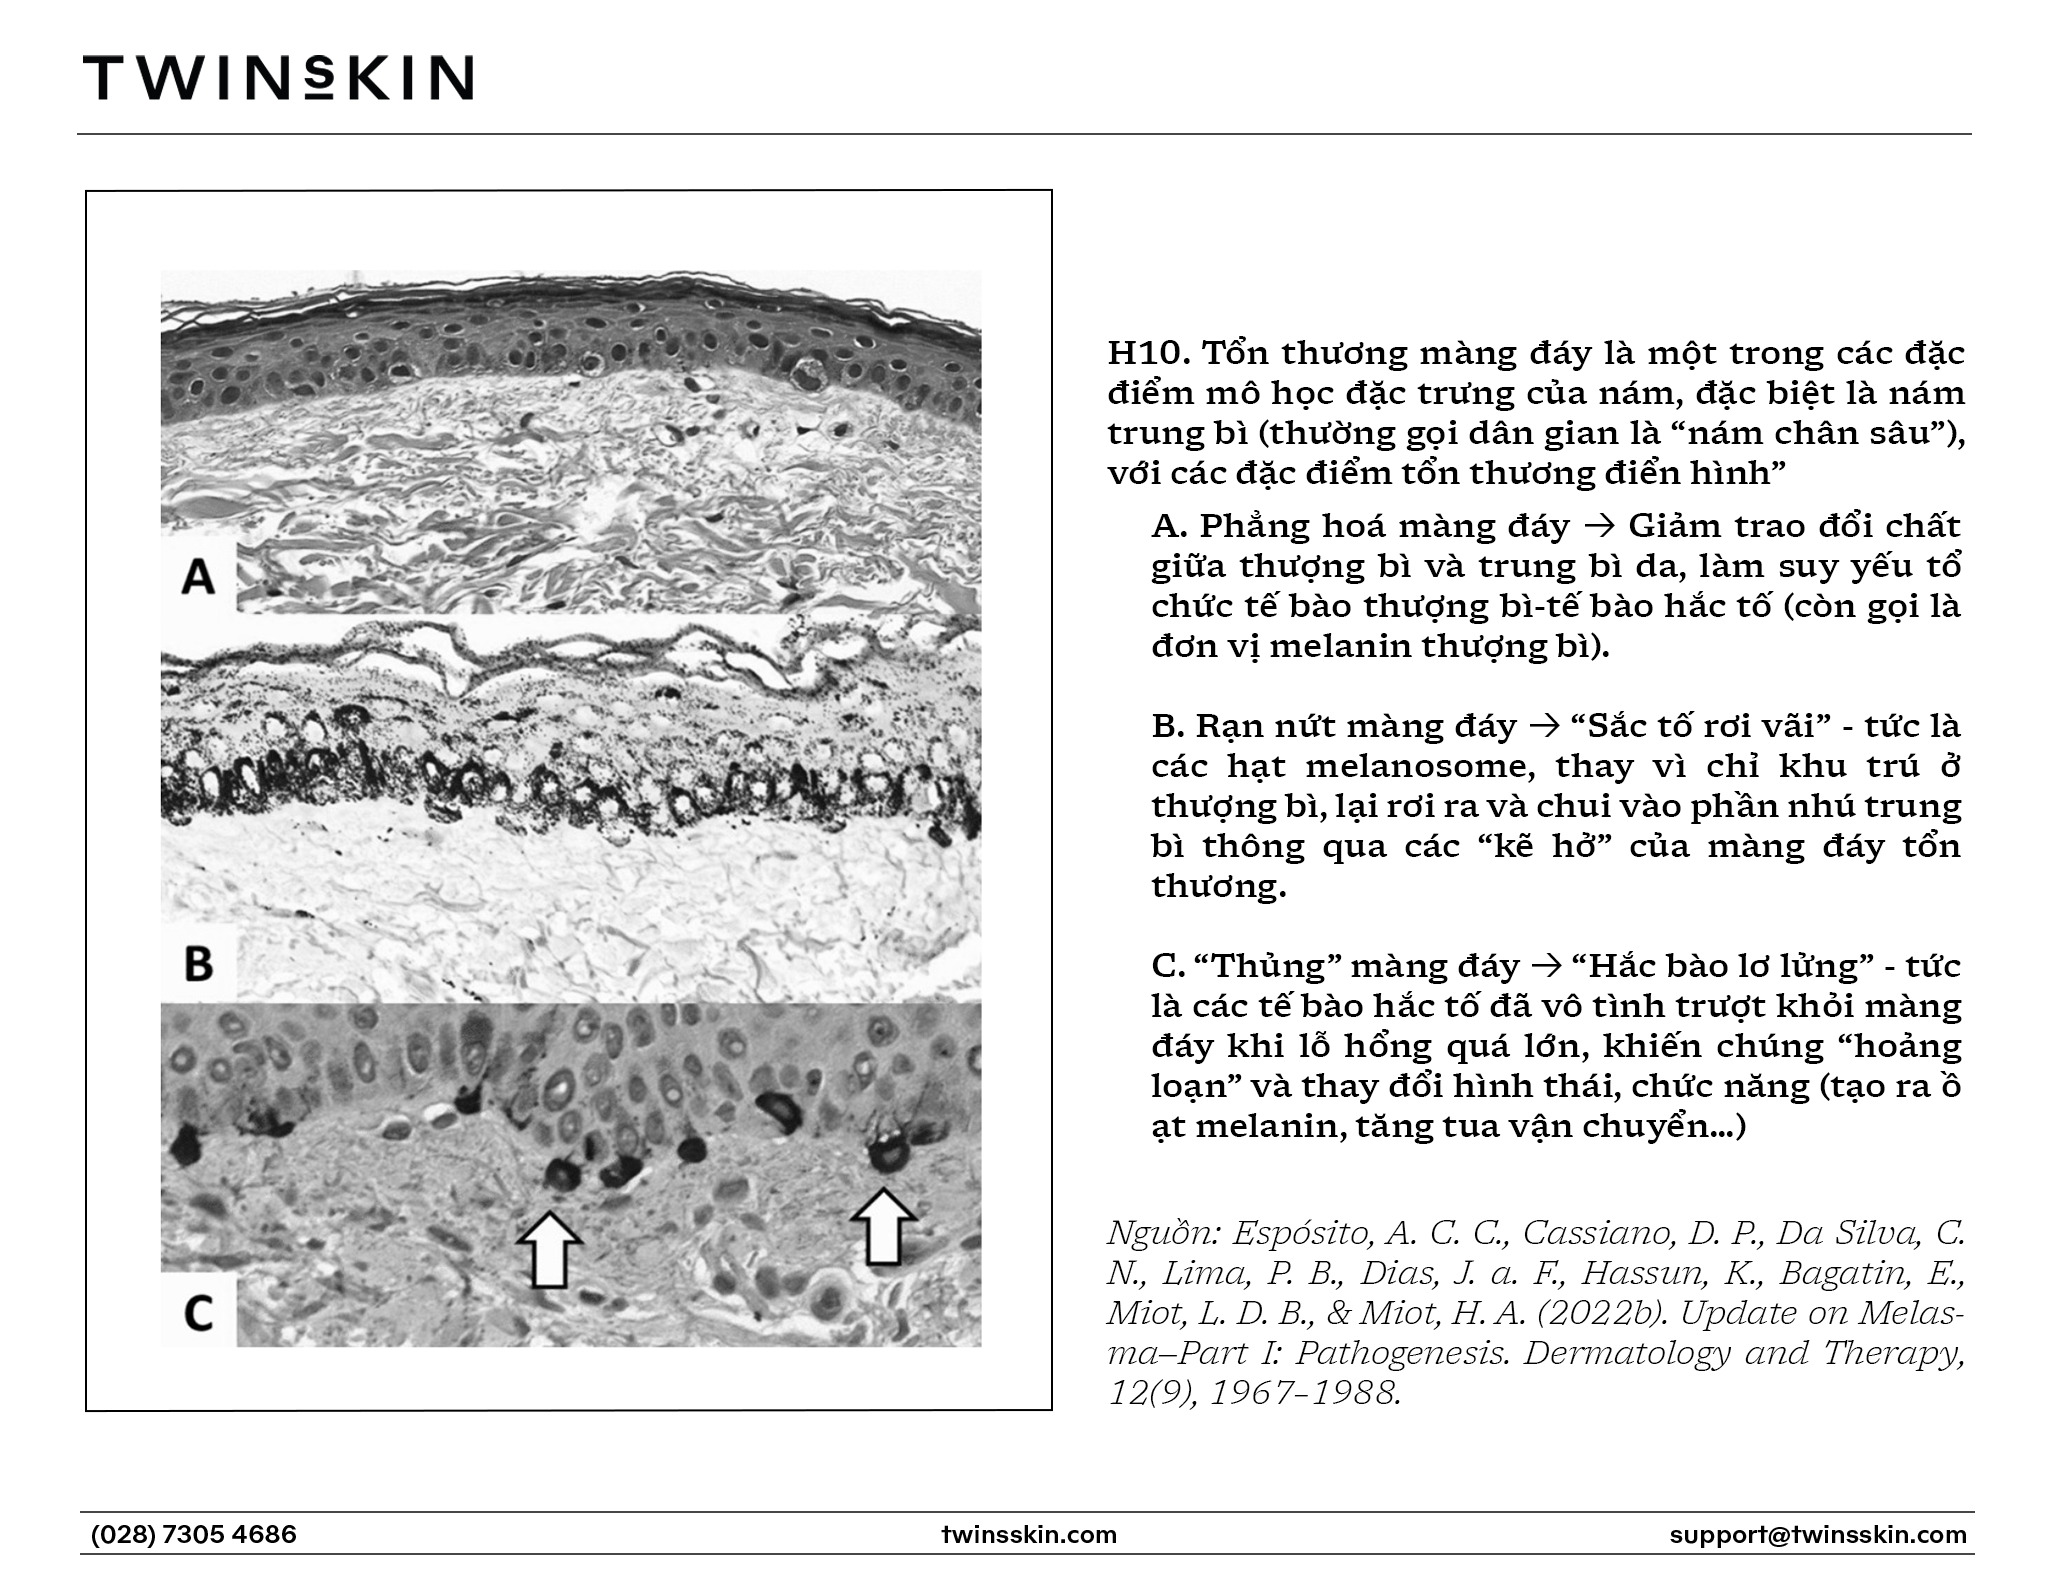
→ Vì vậy, bất cứ thứ gì gây phá vỡ màng đáy đều đang trực tiếp làm nám nặng hơn và biến nó thành dạng “ăn sâu” kháng trị. Giờ chúng ta sẽ xem “thủ phạm” nào gây ra điều này.
4.2. “Biệt đội phá hoại”: Các enzyme phân hủy màng đáy và ma trận ngoại bào
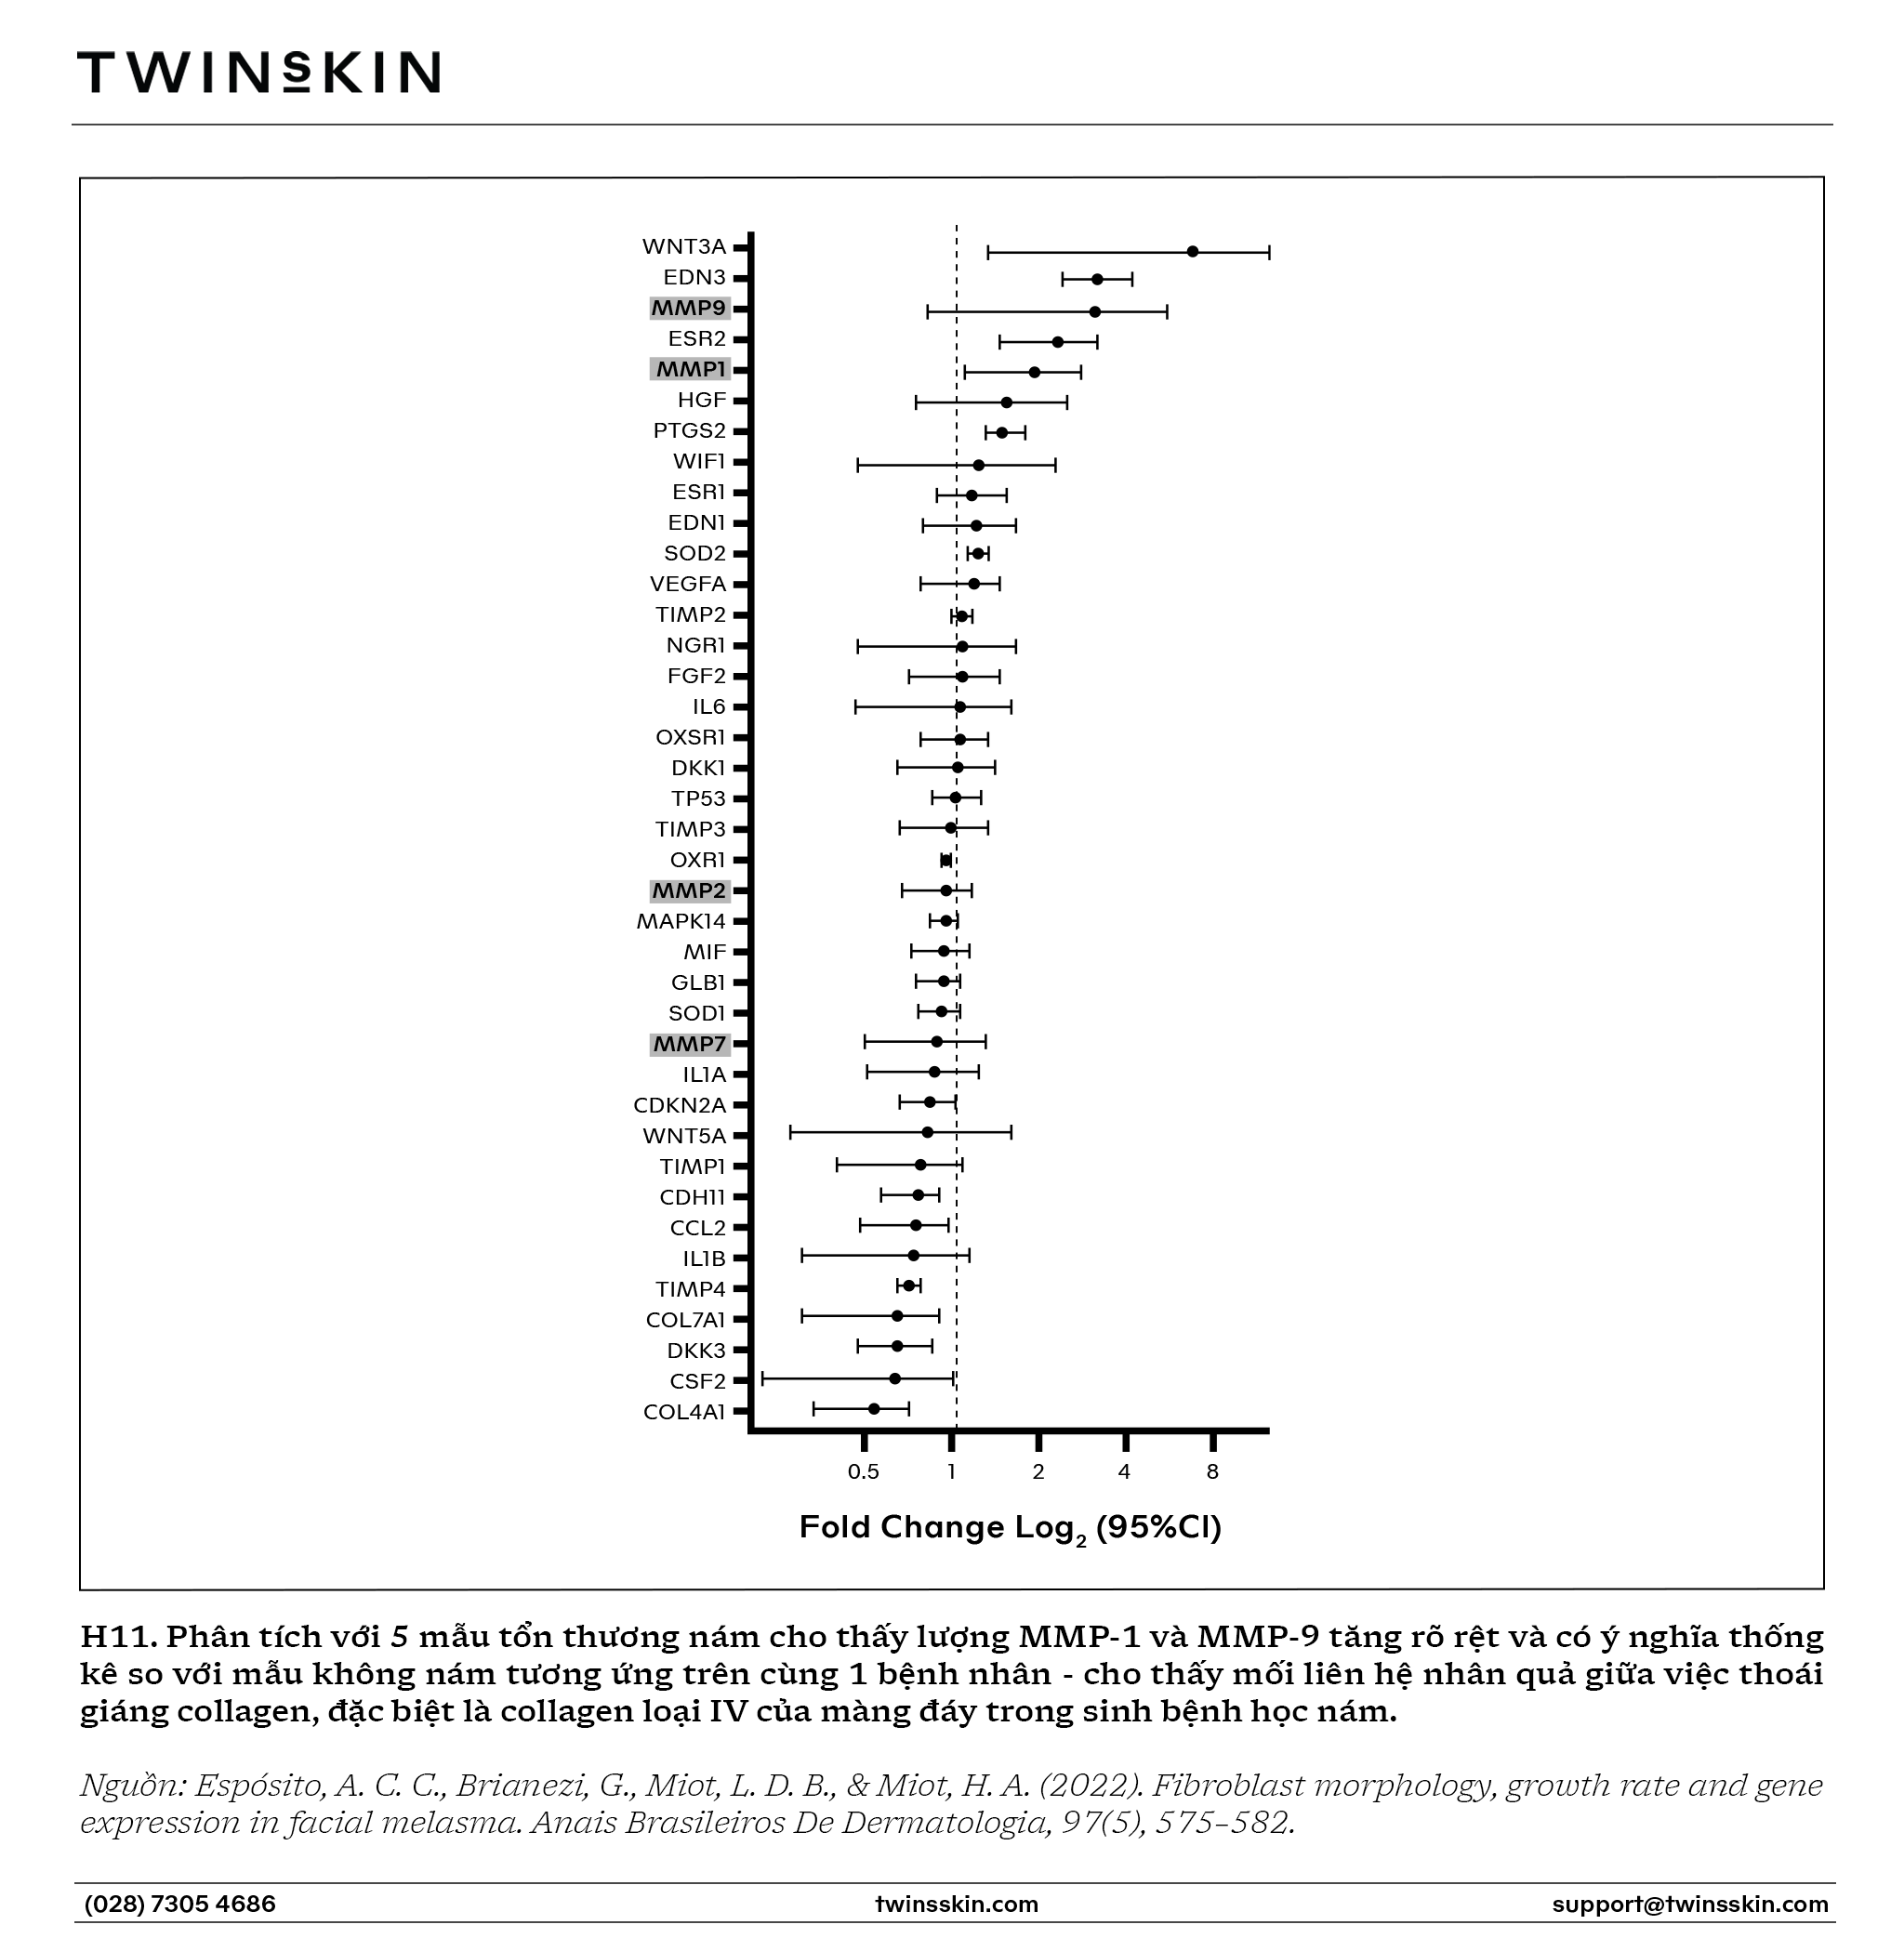
Các “thủ phạm” trực tiếp đục thủng màng đáy là một nhóm enzyme gọi là Matrix Metalloproteinases (MMP). Đây là các enzyme “cắt” protein, chuyên phân hủy ma trận ngoại bào (collagen, elastin…).
Không, tổ hợp này không chỉ có MMP-2 và 9 – vốn là 2 loại MMP chuyên thoái giáng cấu trúc màng đáy. Đó là cả một “biệt đội” hiệp đồng tác chiến, bao gồm:
- MMP-2 (Gelatinase A) và MMP-9 (Gelatinase B): Đây là “chuyên gia” phá màng đáy. Chúng được gọi là Gelatinase vì chúng tấn công trực tiếp vào Collagen loại IV và VII – hai thành phần chính cấu tạo nên màng đáy. Chúng là “mũi khoan” chính đục thủng màng.
- MMP-1 (Collagenase-1): Enzyme này có một vai trò khác. Nó là “kẻ phá móng”. MMP-1 không chuyên tấn công Collagen loại IV, mà chuyên tấn công Collagen loại I và III – vốn là “khung” collagen chính của lớp trung bì (lớp đệm bên dưới màng đáy). Khi “nền móng” (tức là lớp trung bì) bị sụp, thì “sàn nhà” (màng đáy) cũng mất đi sự nâng đỡ và dần nứt sụp theo. Đây là cơ chế phá vỡ gián tiếp nhưng cực kỳ nguy hiểm.
- MMP-3 (Stromelysin-1): Enzyme này lại có biệt danh là “kẻ khuếch đại”. MMP-3 có khả năng “đa nhiệm” – tức là nó vừa có thể trực tiếp phân hủy Collagen loại IV (ở màng đáy), nhưng vai trò đáng sợ hơn của nó là một chất kích hoạt. Hầu hết các MMP khác được tiết ra ở dạng bất hoạt (gọi là pro-MMP). MMP-3 chính là enzyme “bật công tắc” cho các pro-MMPs khác (như pro-MMP-1, -2 và -9), biến chúng từ dạng “ngủ” sang dạng “hoạt động” và sẵn sàng phá hoại.
4.3. “Ổ viêm” lớp trung bì: Nguồn gốc của tín hiệu và enzyme
Vậy “biệt đội” MMP này từ đâu ra? Chúng đến từ hai nguồn chính trong lớp trung bì, vốn bị kích hoạt bởi các yếu tố mãn tính (như UV, viêm, stress, lão hóa…):
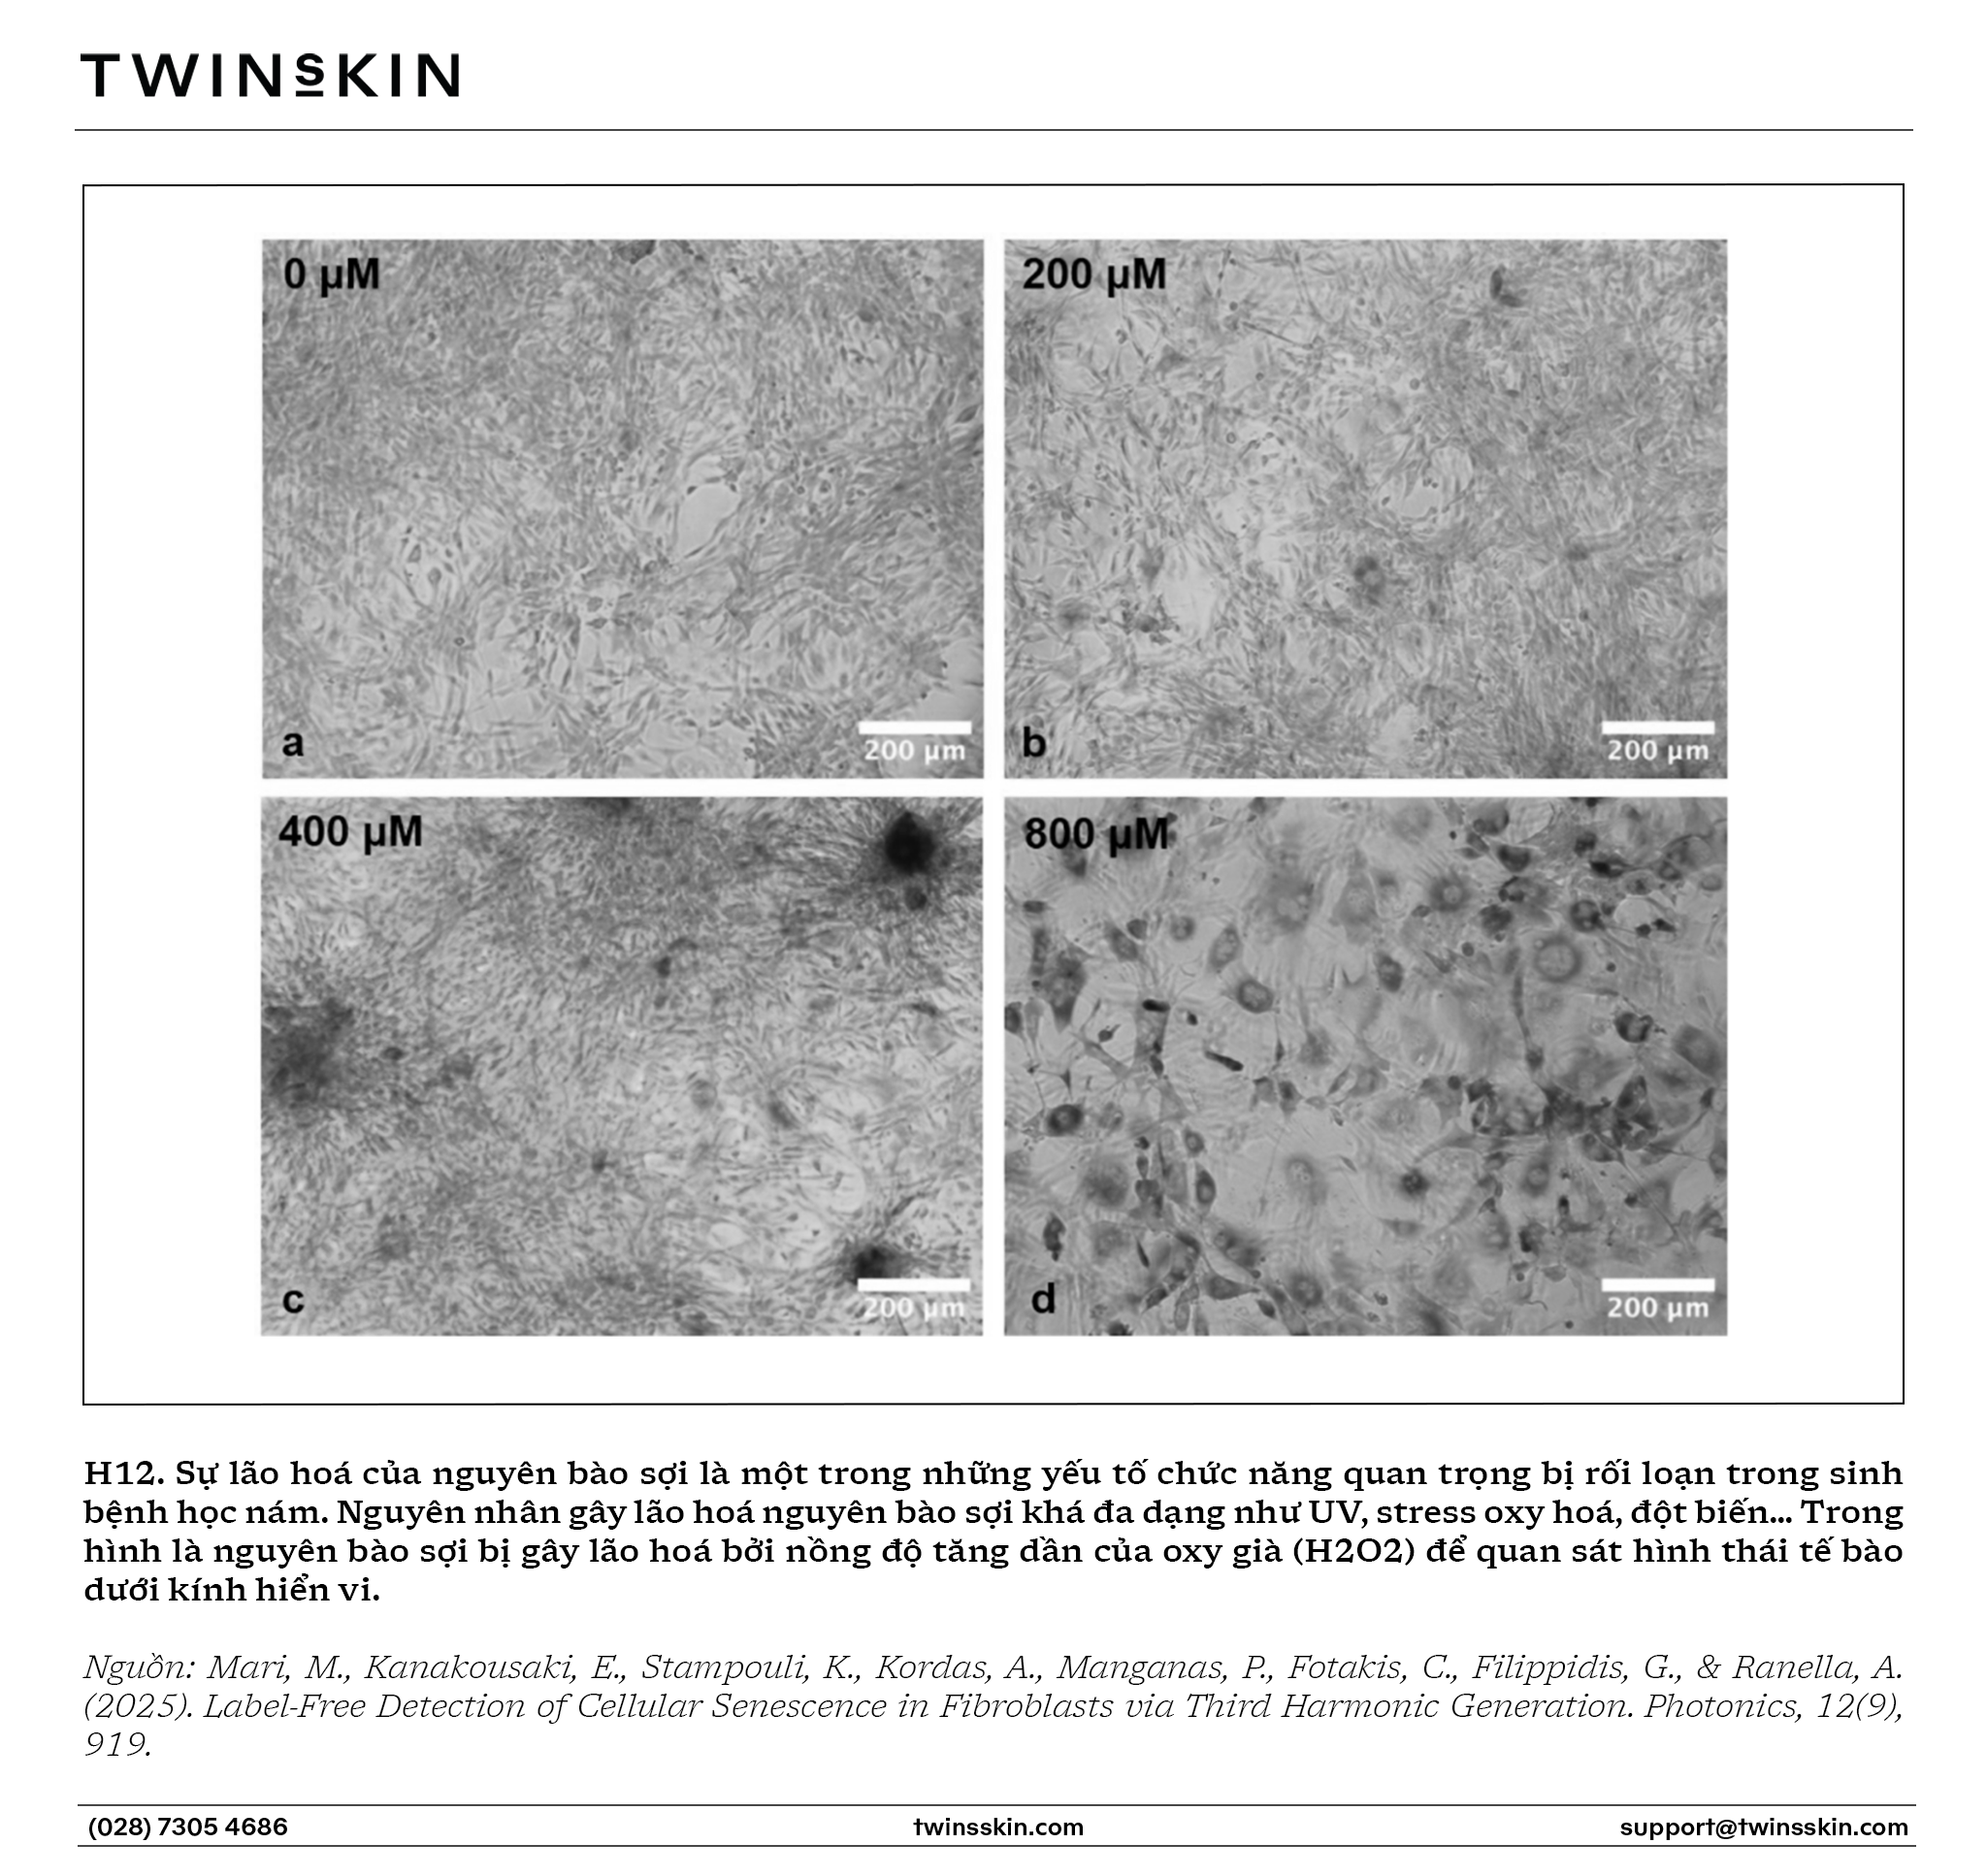
a. Nguyên bào sợi già (senescent fibroblast):
- Đây là các “tế bào zombie” – hậu quả của lão hóa tế bào mãn tính (tức là các tế bào đã hư hỏng quá mức, không còn hoạt động được nữa, nhưng cũng không “tự huỷ” mà vẫn ở tại chỗ và “làm phiền” đến những tế bào và mô chưa lão hoá xung quanh).
- Chúng là “nhà máy sản xuất đạn”. Các tế bào lão hoá này tiết ra một “hỗn hợp cocktail” độc hại gọi là SASP (Senescence-associated secretory phenotype – tạm dịch: Kiểu hình tiết chế liên quan đến lão hóa).
- SASP chứa đầy các enzyme MMP (như MMP-1, -2, -3, -9) ở dạng pro-MMP (dạng “đạn” chờ).
Quan trọng: SASP cũng chứa các tín hiệu (như SCF – stem cell factor, yếu tố tế bào gốc) đồng thời ra lệnh cho tế bào hắc tố sản xuất thêm melanin thông qua hệ thống nhận tin MITF.
 b. Tế bào Mast (Mast cell):
- Đây là các “tế bào miễn dịch” trực chờ, số lượng của chúng tăng vọt trong da nám. Nhuộm hoá mô miễn dịch (một kiểu nhuộm đặc hiệu, ứng dụng các kháng thể phát huỳnh quang) cho thấy mật độ tế bào mast tăng cao (58 ± 39.9 tế bào/mm2) ở da nám so với khoảng 37 ± 28.8 tế bào/mm2 ở vùng da không nám lân cận.
- Chúng là “kíp nổ”. Khi bị kích hoạt bởi các yếu tố mãn tính kể trên, tế bào mast “khử hạt” – tức là chúng sẽ giải phóng một loạt các “quả bom” hóa chất.
- Những “quả bom” này thường chứa:
- Tryptase và Chymase: Đây là các protease (enzyme) “kích nổ” cho số “đạn” pro-MMP mà nguyên bào sợi già tạo ra, biến chúng thành các MMP hoạt động.
- Histamine: Tín hiệu này đồng thời ra lệnh cho tế bào hắc tố trực tiếp sản xuất thêm sắc tố melanin.
- Thậm chí còn có thể có chứa cả VEGF – vừa gây tăng sinh mạch máu mất kiểm soát, vừa cộng hưởng thêm với histamine để gây kích hoạt tế bào hắc tố.
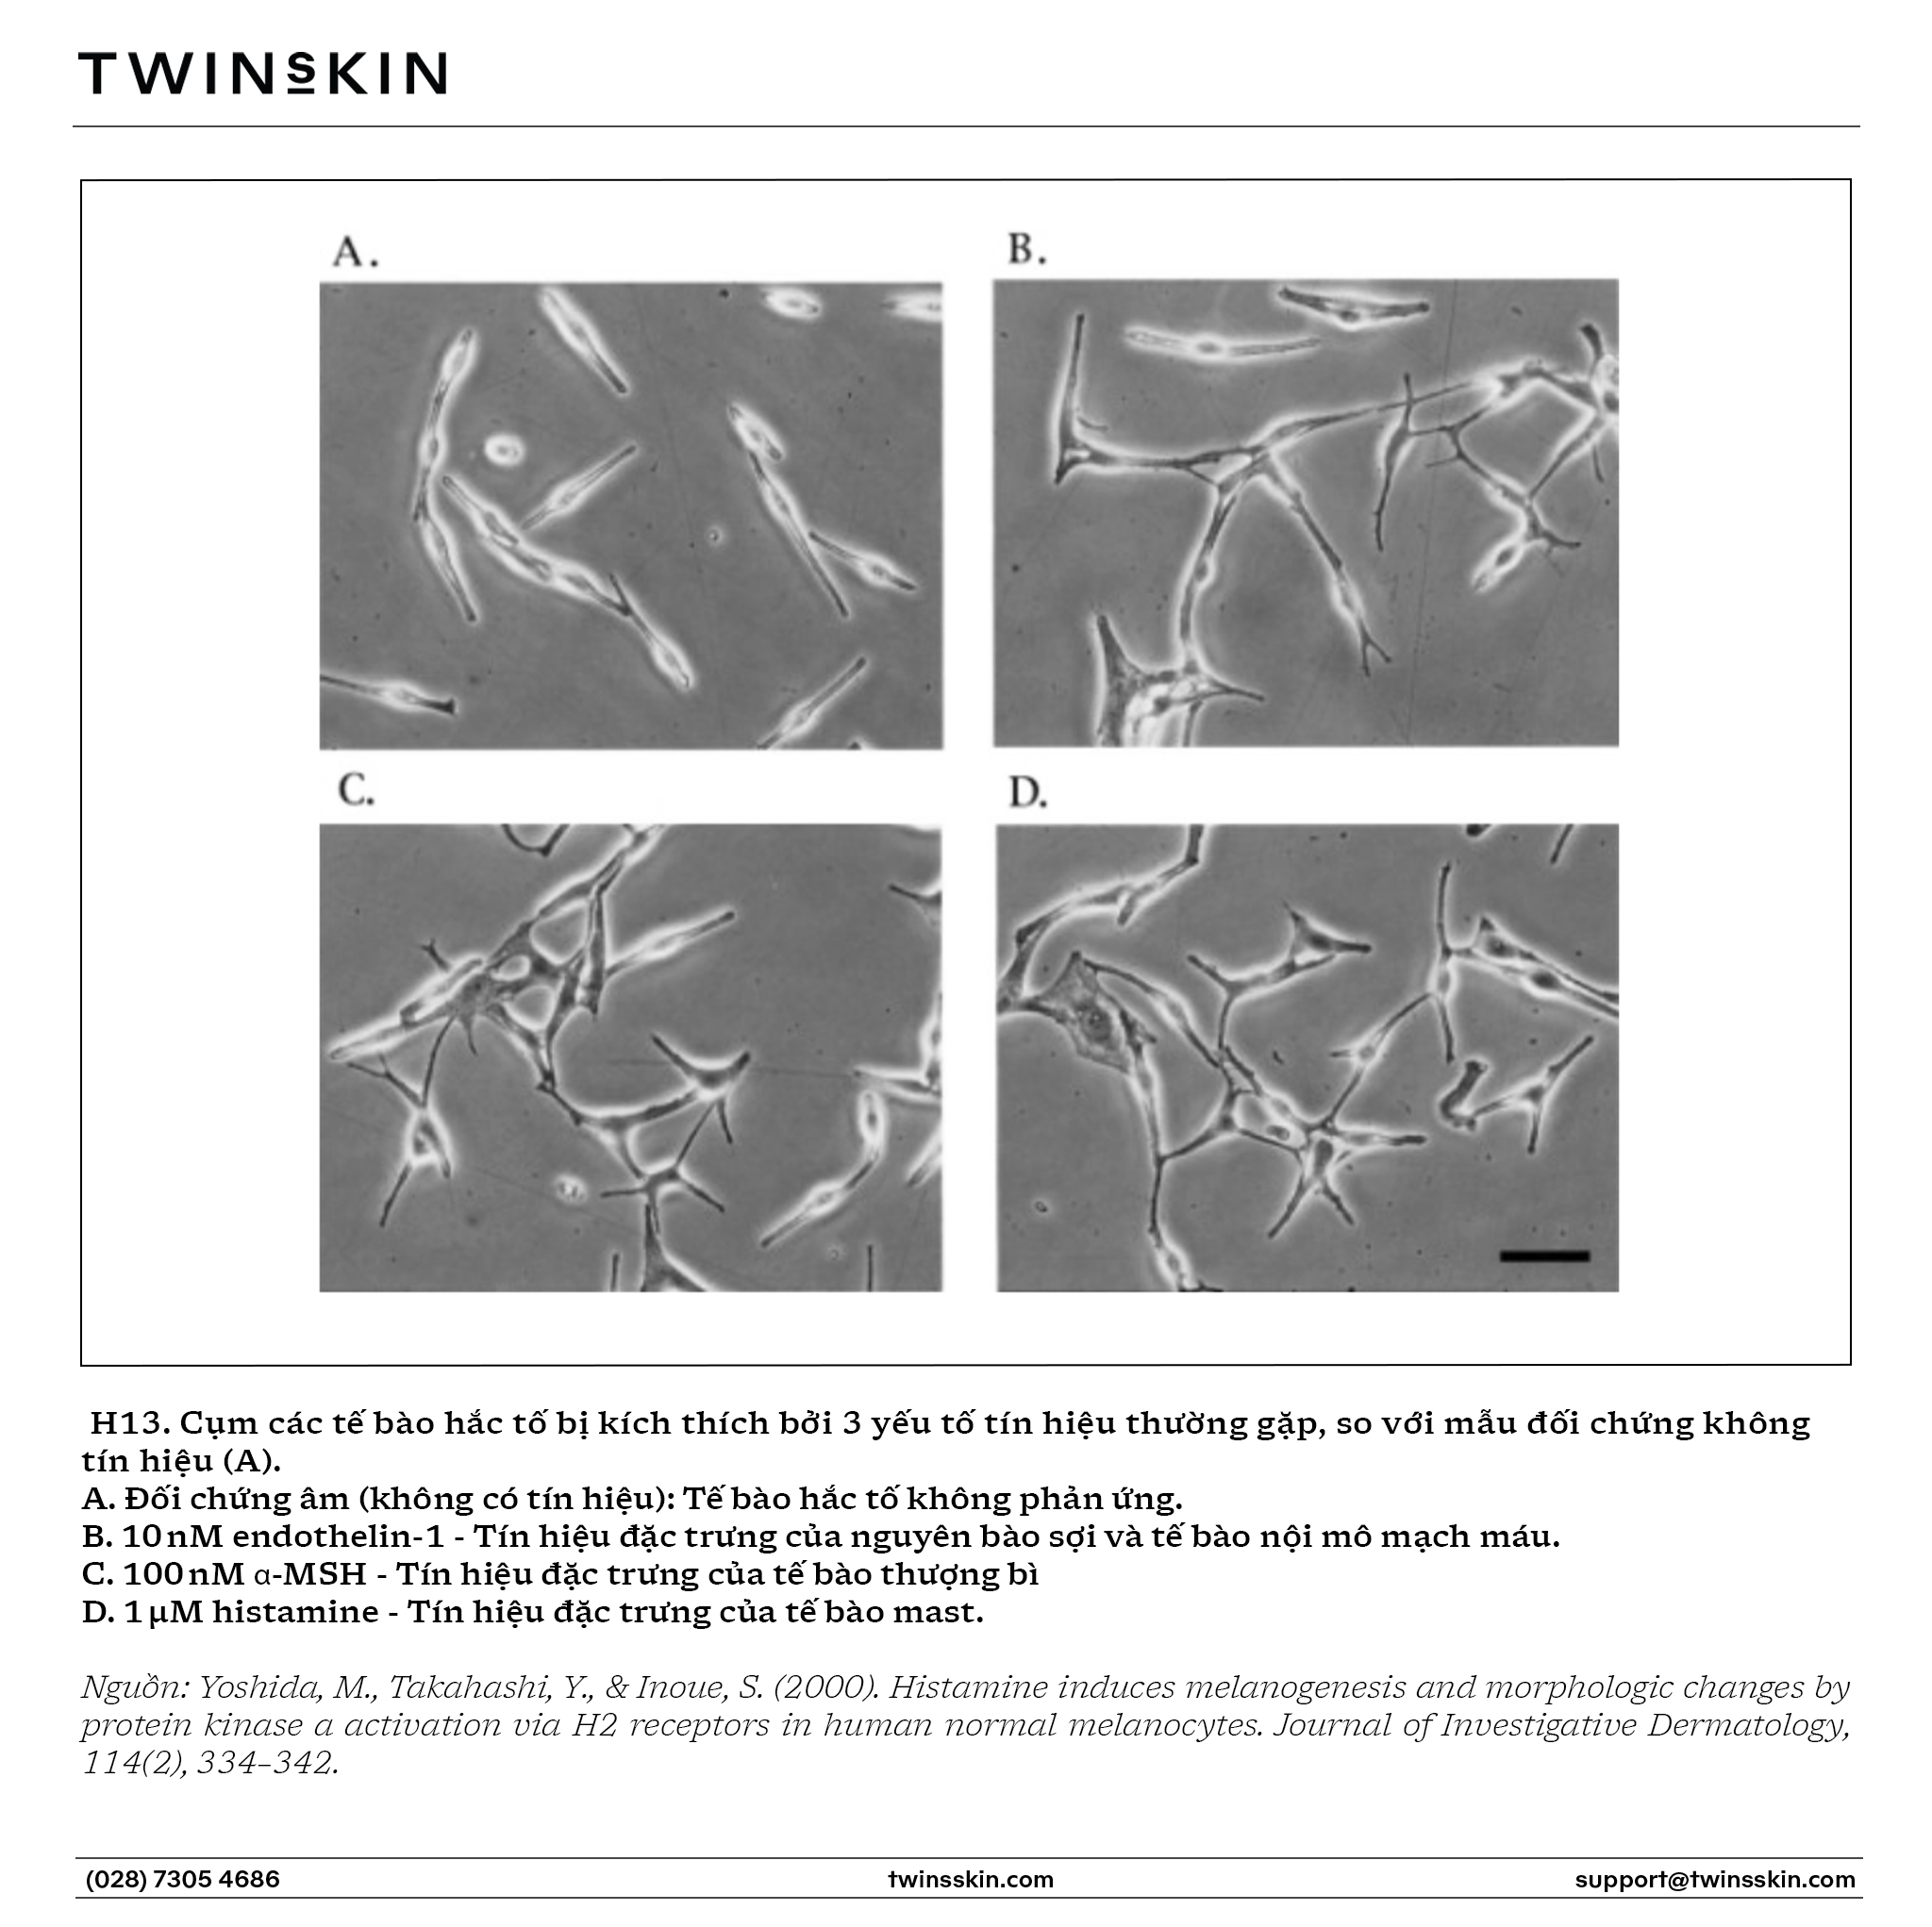
→ Các bạn thấy sự “hiệp đồng” đáng sợ ở đây không: Để phá huỷ màng đáy bằng các MMP hoàn chỉnh, nguyên bào sợi già tạo ra “đạn” và tế bào Mast cung cấp “kíp nổ”. Đồng thời, cả hai cũng cùng nhau gửi tín hiệu lên tế bào hắc tố để yêu cầu “sản xuất thêm sắc tố!”. Tất cả tạo nên một vòng lặp “tự dọn đường”, tự duy trì để sự bất ổn từ trung bì lan lên thượng bì và sắc tố từ thượng bì tràn xuống trung bì.
4.4. Vòng lặp hiệp đồng: Vai trò của số lượng mạch máu bất thường và enzyme plasmin
Hệ thống phá hoại này được “trợ lực” thêm bởi một vòng lặp luẩn quẩn liên quan đến mạch máu, tạo nên nền da đỏ (nám thể mạch máu):
- Tăng sinh mạch máu: Da nám có sự tăng biểu hiện của VEGF (vascular endothelial growth factor – yếu tố tăng trưởng nội mô mạch máu), làm tăng số lượng mao mạch. Các mạch máu này “rò rỉ” các yếu tố huyết tương vào lớp bì, trong đó có một tiền chất gọi là Plasminogen.
- Enzyme Plasmin: Bức xạ UVB kích thích tế bào thượng bì sản xuất ra các chất kích hoạt (như uPA – urokinase-type plasminogen activator). uPA sẽ biến Plasminogen (bị rò rỉ từ mạch máu) thành Plasmin hoạt động.
Plasmin có chức năng kép, tạo ra một vòng lặp:
- Kích hoạt hệ thống sản sinh sắc tố: Plasmin “ra lệnh” cho tế bào thượng bì sản xuất ra tín hiệu α-MSH, một trong những tín hiệu “bật công tắc” MITF mạnh nhất, thúc đẩy sản xuất melanin.
- Nuôi dưỡng hệ thống mạch máu bất thường: Plasmin cũng kích hoạt/giải phóng VEGF, làm tăng sinh thêm mạch máu. Mạch máu tăng sinh lại “rò rỉ” thêm Plasminogen.
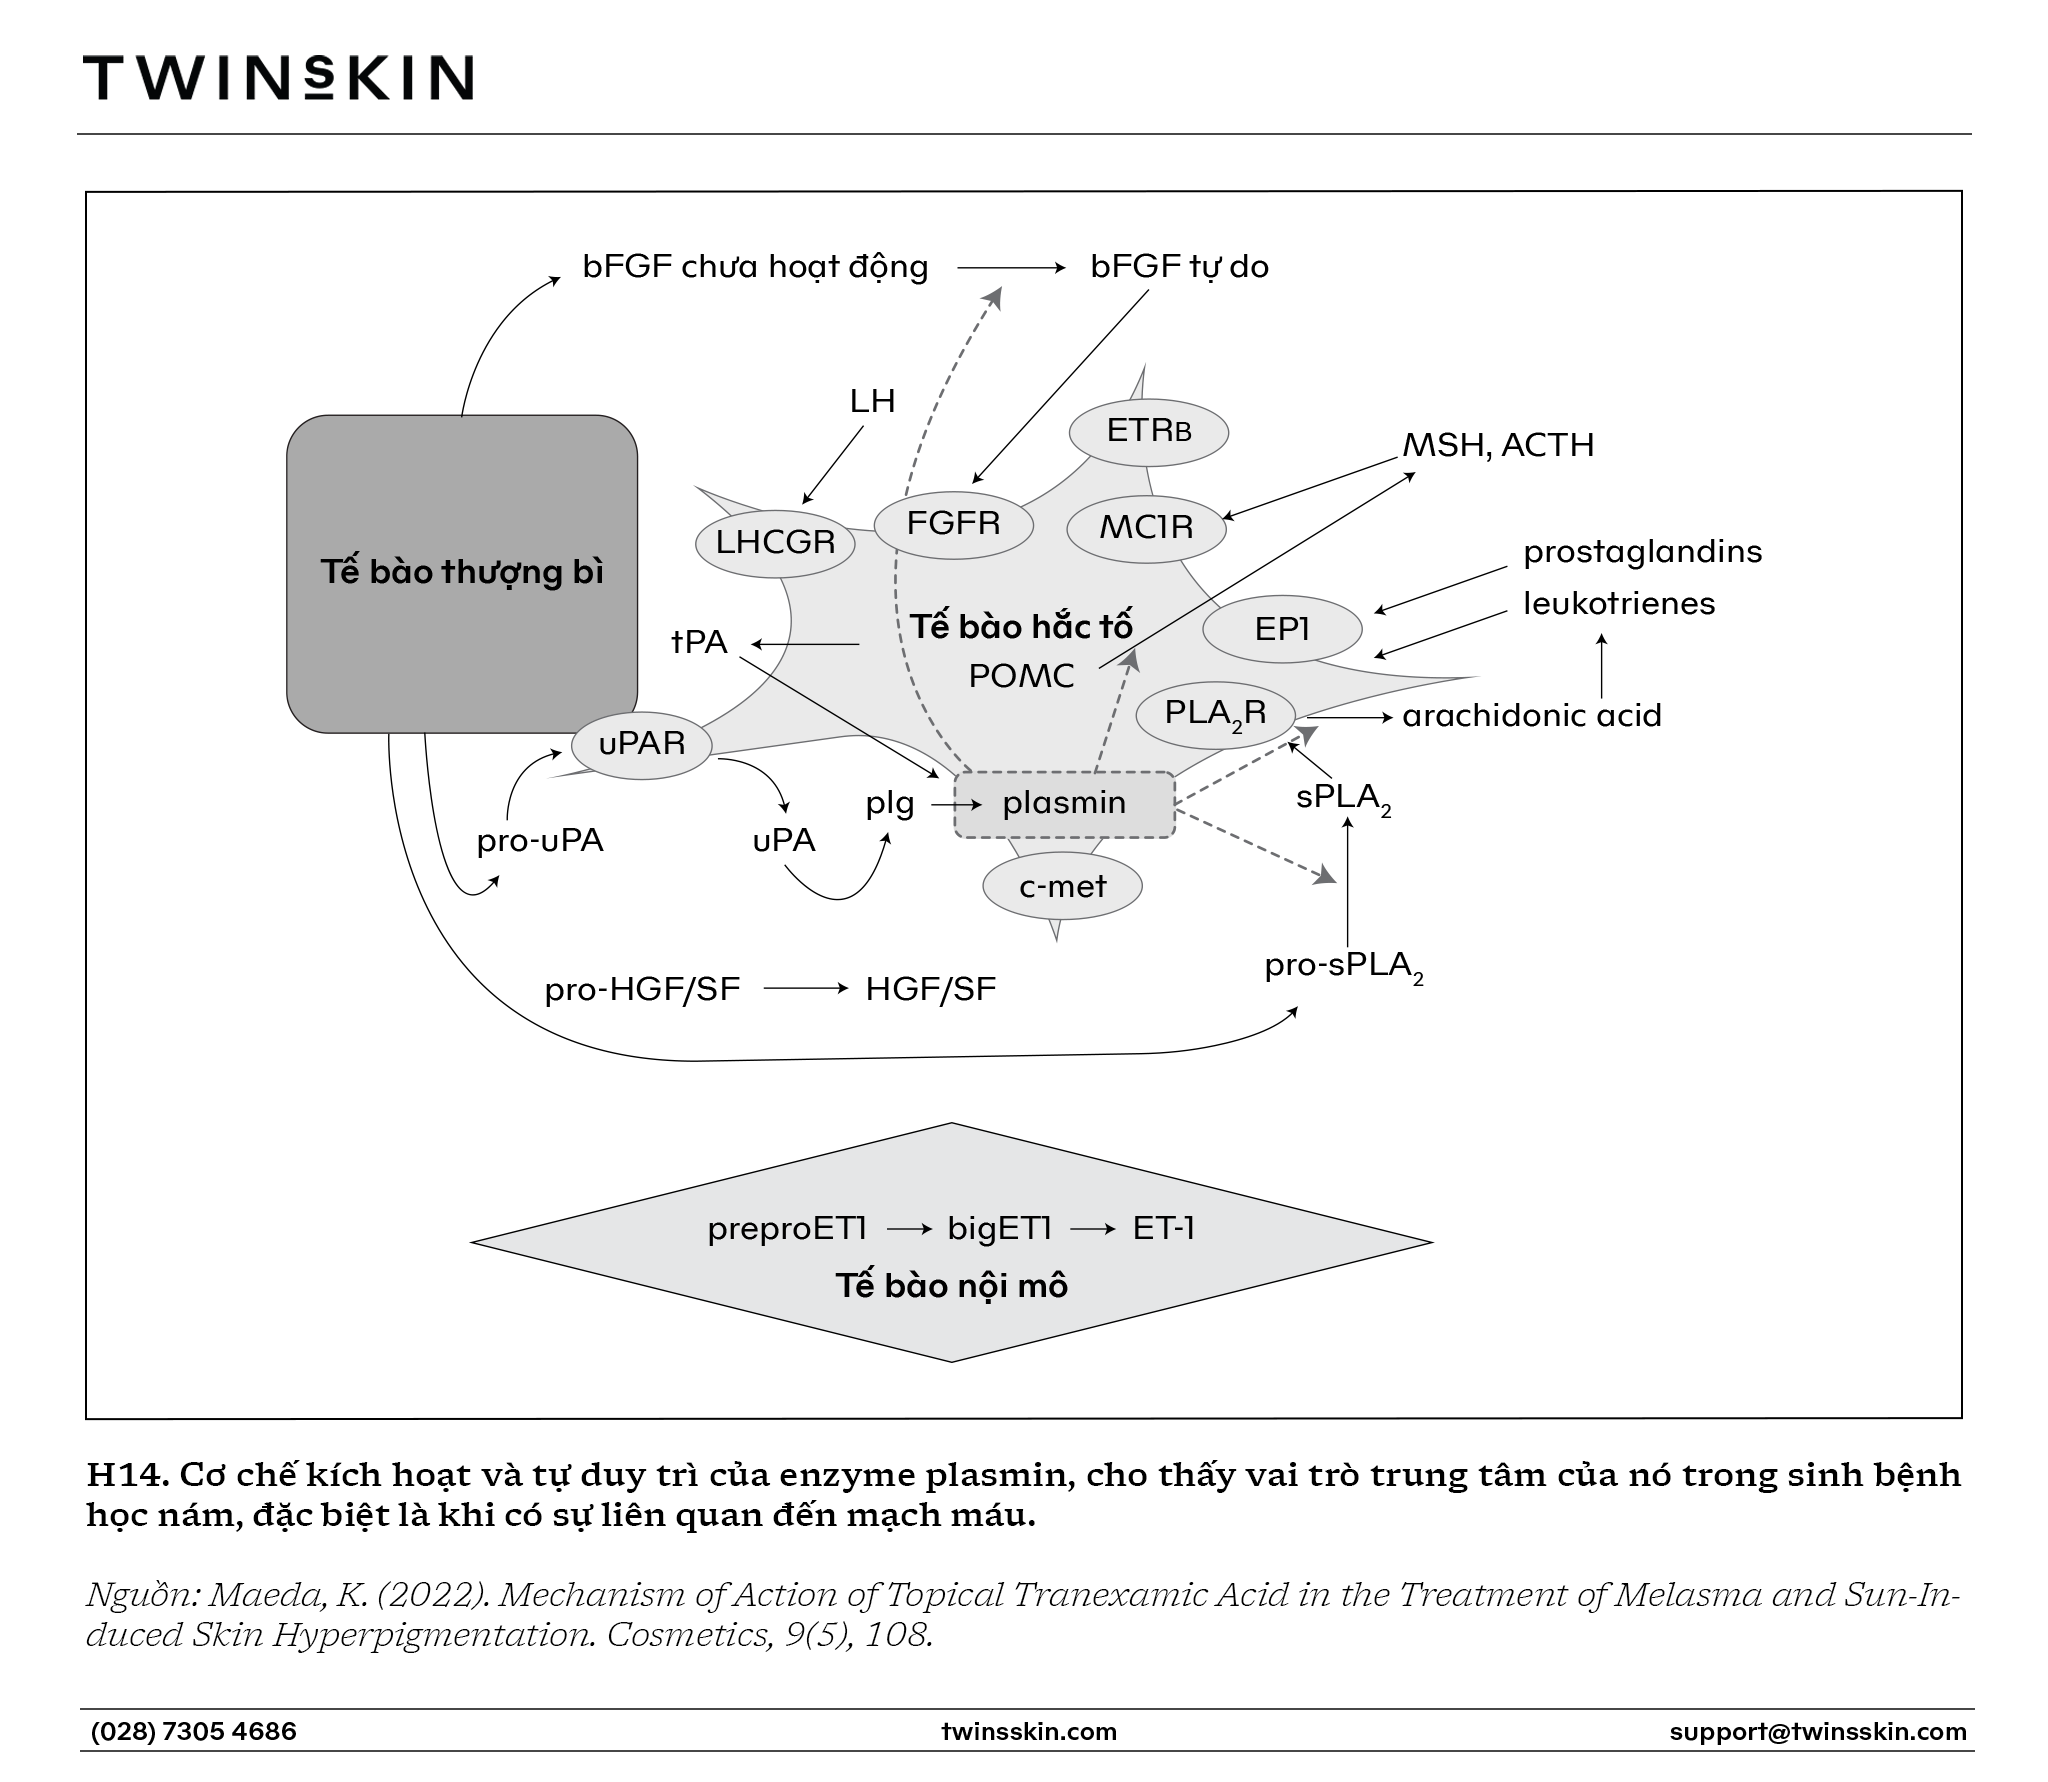
Đây là lý do tại sao Tranexamic acid – một chất ức chế Plasmin phổ biến, lại có thể gây “tái nám” nếu không theo dõi sát sao. Đây là một hoạt chất điều trị nám hiệu quả, vì nó “chặt đứt” các nhánh của vòng lặp có liên quan đến mạch máu. Tuy nhiên, Tranexamic acid không thể kiểm soát được việc tế bào thượng bì tăng tiết uPA để tăng hoạt hoá Plasminogen thành Plasmin mới – nên hễ dừng dùng Tranexamic acid là sẽ đều có nguy cơ tiềm ẩn “tăng sắc tố dội ngược” do ứ đọng uPA.
Hơn nữa, tế bào thượng bì bị tổn thương cũng là một nguồn sản sinh VEGF nhiều và đột ngột. Do đó, nếu vấn đề xuất phát từ sự bất ổn ở tầng thượng bì thì hễ ngưng dùng Tranexamic acid thì nám sẽ vẫn có thể quay lại – không sớm thì muộn. Do đó, cần phải chú tâm vào căn nguyên gốc rễ của vấn đề, chứ không chỉ đơn giản là hoạt chất gì, phương pháp gì mờ nám trên người khác thì cũng sẽ hiệu quả với bản thân mình.
→ Tóm lại, ở nám chân sâu thì cần chú trọng “ổ viêm” mãn tính ở lớp trung bì – nơi các nguyên bào sợi già và tế bào mast hiệp lực để sản xuất và kích hoạt “biệt đội” MMP. Các enzyme này phá vỡ màng đáy, làm melanin “rơi” xuống tạo thành nám trung bì khó trị. Toàn bộ quá trình này được khuếch đại bởi vòng lặp mạch máu – plasmin, tạo nên một tình trạng mãn tính, “ăn sâu” và cực kỳ khó kiểm soát.
5. Khi hiểu lầm dẫn đến những sai lầm trong kiểm soát nám
Việc áp dụng các chiến lược điều trị cổ điển dựa trên tư duy “đơn cực” (tức là chỉ nhắm vào enzyme Tyrosinase hoặc phá hủy sắc tố vật lý) mà bỏ qua bối cảnh rối loạn hệ thống đã dẫn đến những các thất bại điều trị phổ biến hay thậm chí là biến chứng nghiêm trọng.
5.1. Cơ chế của “dội ngược sắc tố” (rebound hyperpigmentation) sau ức chế đơn lẻ
Khi sử dụng các chất ức chế Tyrosinase đơn thuần mà không kiểm soát tín hiệu thượng nguồn, chúng ta vô tình kích hoạt một cơ chế phòng vệ của tế bào:
- Cơ chế “bù trừ ngược”: Tế bào hắc tố như một nhà máy đang nhận lệnh sản xuất khẩn cấp (từ MITF). Khi đột ngột chặn dây chuyền sản xuất (ức chế Tyrosinase), tế bào hắc tố sẽ “hiểu nhầm” rằng nó đang làm việc chưa đủ hiệu quả. Thông qua cơ chế phản hồi ngược, nhân tế bào sẽ nhận tín hiệu thiếu hụt melanin và lập tức tăng cường phiên mã gen sinh sắc tố và MITF để bù đắp.
- Hệ quả: Tế bào hắc tố âm thầm tích lũy một lượng khổng lồ enzyme Tyrosinase mới (ở dạng chờ). Ngay khi vừa ngừng bôi hoạt chất ức chế, lượng enzyme dự trữ này sẽ được giải phóng ồ ạt, dẫn đến sự sản xuất melanin bùng nổ và nhanh chóng hơn mức ban đầu. Đây là lý do nám tái phát đậm hơn sau khi ngưng bôi.
5.2. Cơ chế của “mất sắc tố dạng lốm đốm” (confetti-like depigmentation) do gây độc tế bào
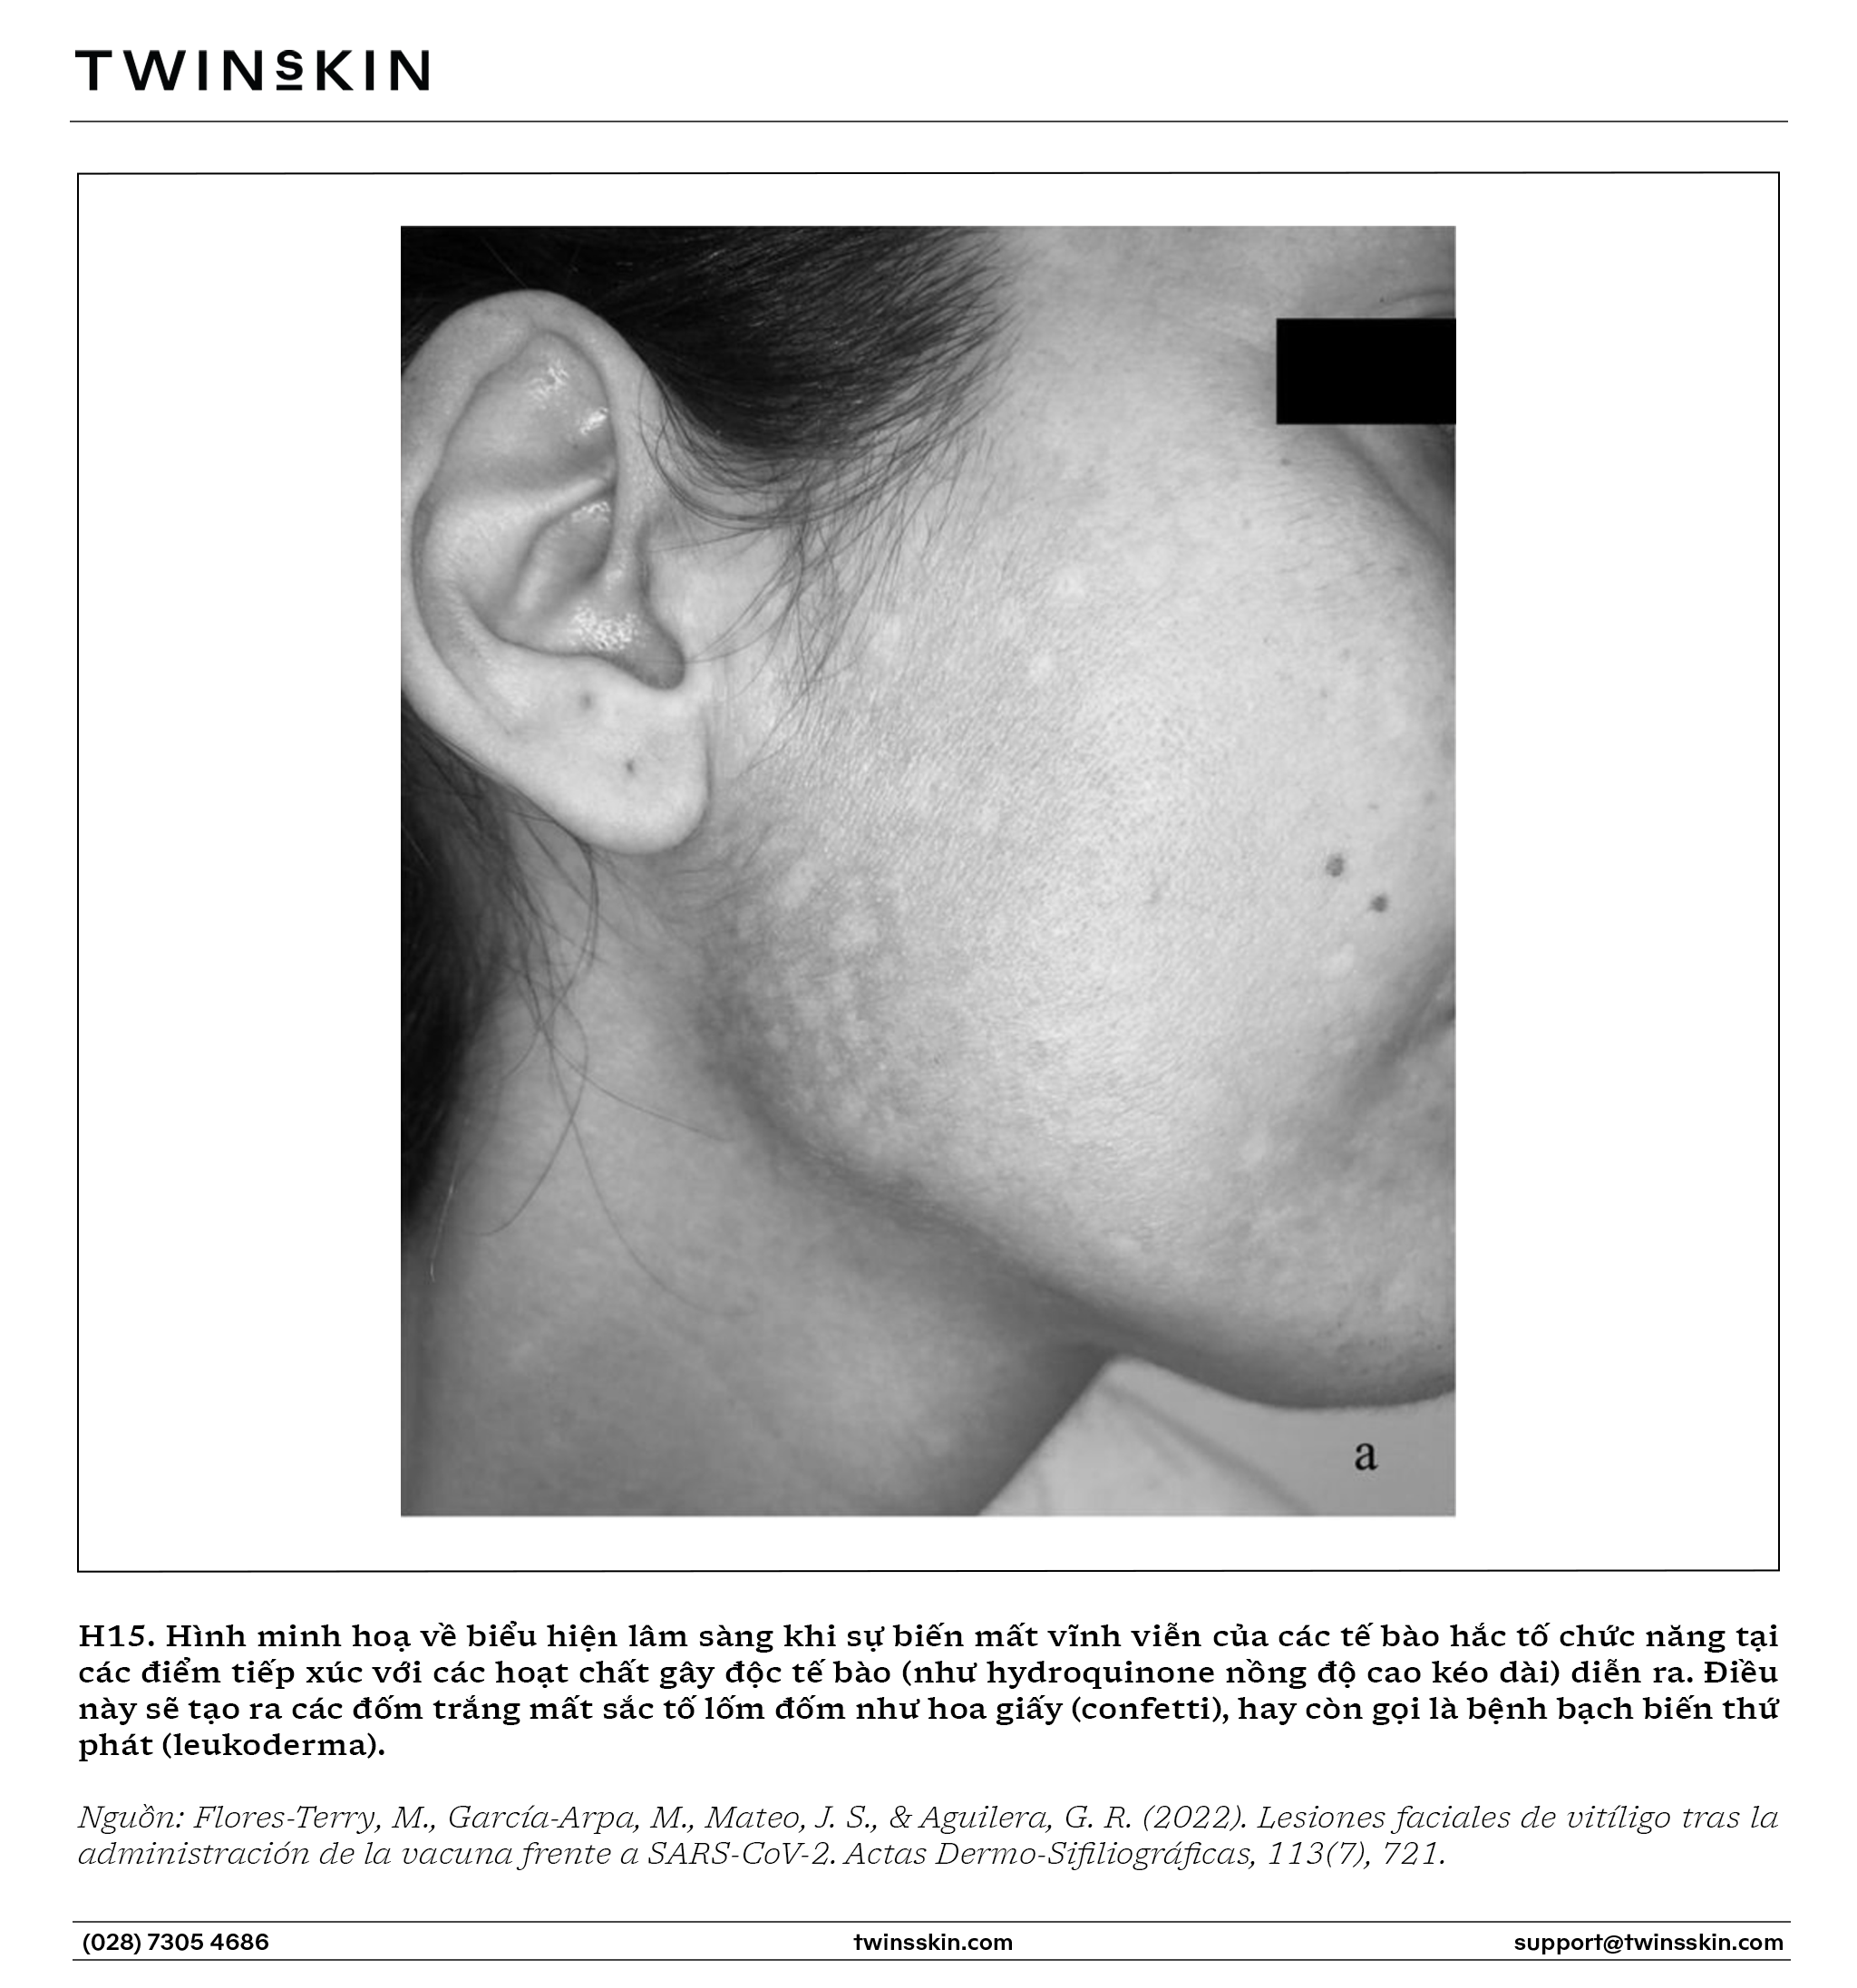
Việc sử dụng các tác nhân gây độc tế bào như Hydroquinone nồng độ cao (>4%) kéo dài hoặc Laser Q-Switched năng lượng cao thường được ví như việc “dội bom” vào tế bào hắc tố:
- Cơ chế gây chết tế bào (Apoptosis/ Necrosis): Các tác nhân này không chỉ ức chế enzyme mà còn gây tổn thương trực tiếp lên DNA hoặc ty thể (nhà máy năng lượng của tế bào) của tế bào hắc tố. Khi tổn thương vượt quá ngưỡng chịu đựng và không thể sửa chữa, tế bào hắc tố sẽ kích hoạt quy trình chết tế bào theo chương trình (apoptosis) – tức là tự hủy để bảo vệ cơ thể.
- Hệ quả: Sự biến mất vĩnh viễn của các tế bào hắc tố chức năng tại các điểm tiếp xúc tạo ra các đốm trắng mất sắc tố lốm đốm như hoa giấy (confetti), hay còn gọi là bệnh bạch biến thứ phát (leukoderma). Khác với nám, tình trạng này gần như không thể phục hồi vì “nhà máy” sản xuất sắc tố đã bị phá hủy hoàn toàn.
5.3. Cơ chế nám tái phát sau lột tẩy/ laser xâm lấn
Các liệu pháp lột tẩy hóa học sâu hoặc laser xâm lấn một cách quá đà nhằm “lột bỏ” lớp sắc tố bề mặt thường gây ra tác dụng phụ nghiêm trọng ở tầng da sâu hơn:
- Kích hoạt dòng thác viêm: Tổn thương mô do lột tẩy kích hoạt giải phóng ồ ạt các “tín hiệu báo động” (cytokine viêm như IL-1α, TNF-α) và các enzyme tiêu hủy protein (protease, như MMP, tryptase, chymase, plasmin…).
- Tổn thương màng đáy thứ phát: Các enzyme này tấn công vào màng đáy vốn đã mỏng manh của da nám, làm các “vết rách” trở nên lớn hơn.
- Hệ quả: Thay vì được loại bỏ ra ngoài, melanin và các mảnh vỡ tế bào sắc tố bị áp lực viêm “ép” rơi xuống lớp trung bì qua các khe hở màng đáy. Tại đây, chúng bị đại thực bào nuốt lấy và “khóa chặt” vĩnh viễn. Kết quả là nám chuyển từ dạng thượng bì (nông, màu nâu, dễ trị) sang dạng nám trung bì (sâu, màu xanh xám, khó trị, dễ tái).
6. Tạm kết: Nám thực chất là một “rối loạn hệ thống”
Trong nhiều thập kỷ, cuộc chiến với nám có vẻ đang là một sự ám ảnh đơn lẻ: Enzyme Tyrosinase. Chúng ta đã dồn toàn bộ trí lực vào việc “phong tỏa” enzyme này, tin rằng đó là chìa khóa duy nhất.
Nhưng qua bài viết này, các bạn cùng Twins đã nhận ra một bức tranh lớn hơn: Tyrosinase không phải là “kẻ chủ mưu”. Nó chỉ là “nhân viên” của một “nhà máy” đang vâng lệnh.
Sự thật là, nám còn được “chỉ huy” bởi một hệ thống enzyme thứ hai, một “biệt đội” hoàn toàn khác, nằm sâu ở lớp trung bì.
Nếu chỉ xét riêng về hệ thống enzyme kích thích sinh nám thì chúng cần được nhìn nhận là một sự rối loạn kép của hai hệ thống enzyme lớn:
- Hệ thống enzyme sản xuất sắc tố (tại thượng bì): Tyrosinase, TRP-1, TRP-2… bị kích hoạt quá mức để tạo ra sắc tố. Đây là “ngọn”.
- Hệ thống enzyme hủy hoại màng đáy (tại trung bì): Các MMP, Tryptase, Chymase, và Plasmin… Đây là “gốc”. Chúng là các enzyme “phá hoại” (đục thủng màng đáy, gây nám hạ bì) và đồng thời là các enzyme “tín hiệu” (như Plasmin) liên tục gửi lệnh “khẩn cấp” lên, ra lệnh tiếp tục sản xuất sắc tố.
Sự thấu hiểu này giải thích tại sao chỉ “khóa” enzyme Tyrosinase là một chiến lược chưa hoàn chỉnh và đồng thời, lý giải được phần nào tính “hên xui” của các liệu trình chỉ tập trung vào kiểm soát sắc tố và tyrosinase.
Không hẳn là “triệt tiêu”, mà là “phục hồi chức năng” của hệ thống enzyme sinh tạo, ổn định và vận chuyển sắc tố – nhằm đưa cả hệ thống lớn trở về trạng thái cân bằng.
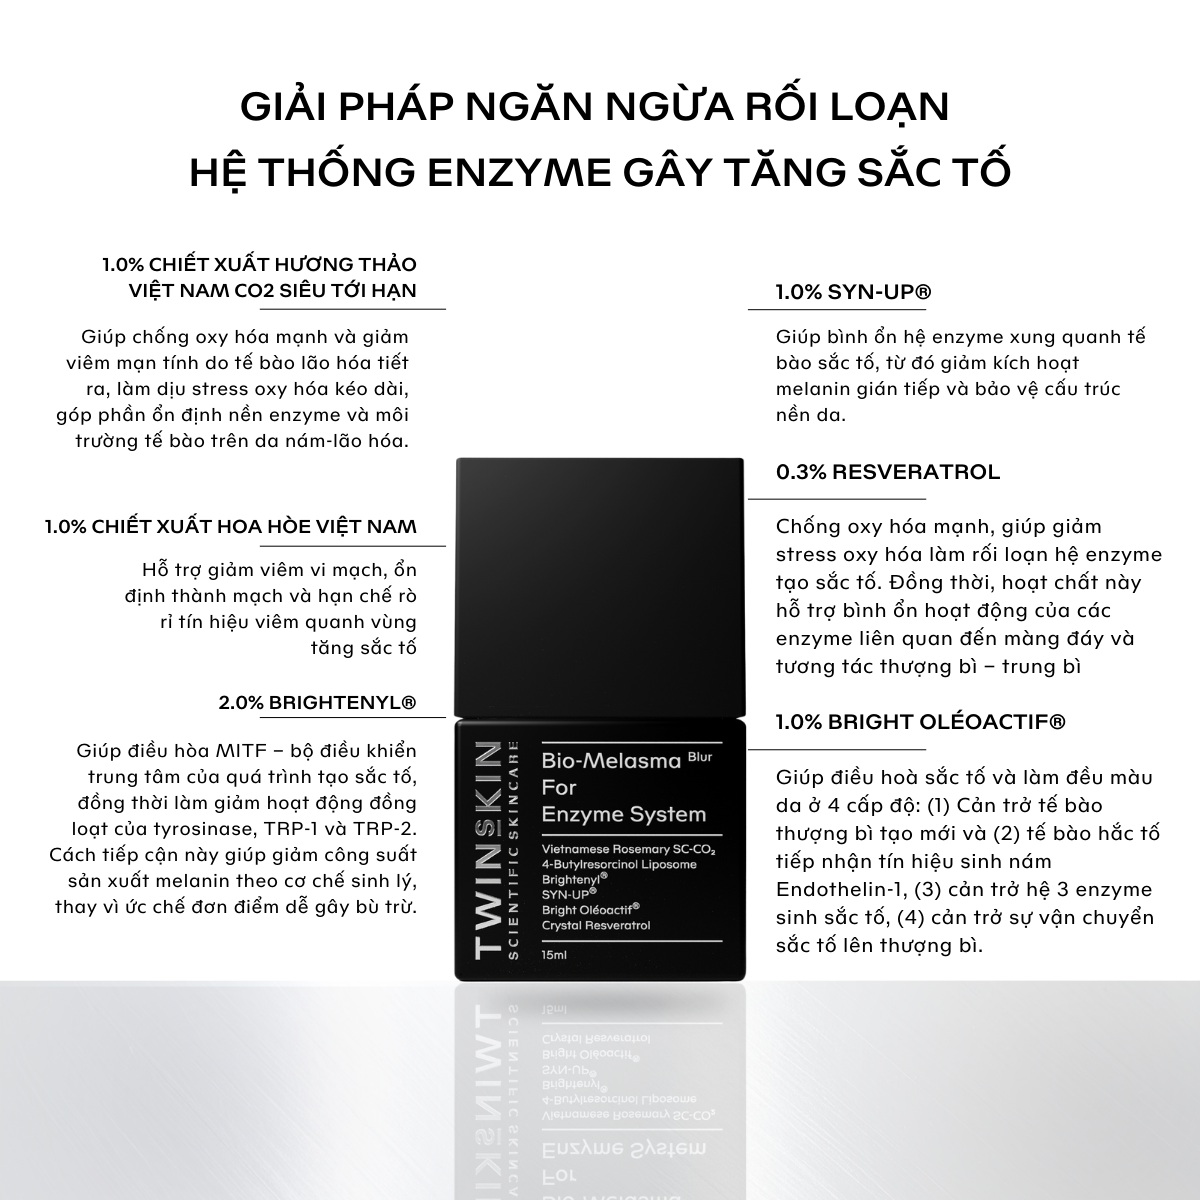
Đây chính là triết lý đằng sau sản phẩm Bio-Blur Melasma For Enzyme System của Twins Skin. Sản phẩm được thiết kế chính xác để giải quyết “rối loạn kép” này bằng một chiến lược “gọng kìm”:
- Một mặt, nó “điều tiết” hệ thống sản xuất melanin bằng các hoạt chất như Brightenyl®, 4-butyl resorcinol bọc liposome hay chiết xuất hương thảo để “vặn nhỏ” công tắc tổng MITF và cạnh tranh an toàn với Tyrosinase.
- Mặt khác, nó tập trung nguồn lực vào “gốc rễ” để “bình định” hệ thống enzyme “phá đáy”. Đây là lúc các thành phần “át chủ bài” như peptide sinh học SYN-UP® hay Resveratrol. Chúng được thiết kế để ức chế chính xác các enzyme “phá hoại” như Plasmin và MMP, giúp bảo tồn và tái thiết màng đáy.
Tóm lại, về hệ thống enzyme kích thích sinh nám – một trong bốn hệ thống yếu tố chức năng nền tảng trong sinh bệnh học nám da, việc kiểm soát nám hiệu quả là quá trình tái thiết lập lại trạng thái cân bằng nội môi của đơn vị sắc tố, thông qua việc tác động đồng bộ, chính xác và tôn trọng sinh lý vào mạng lưới enzyme phức tạp của làn da.
_______________________________________________
SẢN PHẨM THAM KHẢO
Bio-Blur Melasma For Enzyme System – Giải pháp ngăn ngừa rối loạn hệ thống enzyme kích thích sinh nám
Bio-Blur Melasma For Enzyme System, một trong bốn sản phẩm thuộc bộ protocol “Nám Du Kích” được Twins Skin phát triển với phương pháp luận dựa trên nền tảng sinh bệnh học nám da ở cấp độ sinh học tế bào – phân tử: Phục hồi chức năng các hệ thống yếu tố rối loạn sinh nám.
- Điều hòa “bộ điều khiển thượng nguồn” MITF – giảm kích hoạt hàng loạt enzyme tạo sắc tố (tyrosinase, TRP-1 và TRP-2), thay vì chỉ ức chế rời rạc từng mắt xích đơn lẻ như các sản phẩm làm sáng thông thường.
- Hạn chế sự hoạt động “bộ 3 enzyme” sản xuất sắc tố – giảm công suất sản xuất melanin một cách đồng bộ và toàn diện, từ đó hạn chế hiện tượng bù trừ sinh học thường gặp khi kiểm soát sắc tố đơn điểm.
- Bình ổn & khôi phục hệ enzyme liên quan đến màng đáy – cải thiện tính toàn vẹn của cấu trúc nền, từ đó giúp sắc tố được kiểm soát theo hướng bền vững hơn, hạn chế nám tái phát và tiến triển nặng thành nám trung bì.
- Giảm viêm & oxy hoá để tránh kích hoạt enzyme sai lệch – giảm nguy cơ “dội ngược” sắc tố, hạn chế tình trạng tái nám.
SẢN PHẨM NÀY PHÙ HỢP CHO:
- Da nám trên nền lão hoá, da yếu, da tổn thương lâu năm;
- Da từng điều trị nám nhiều đợt nhưng dễ tái phát;
- Người muốn chăm sóc và cải thiện tình trạng nám theo hướng bền vững, phục hồi nền da, không chỉ xử lý sắc tố ngắn hạn.
TÀI LIỆU THAM KHẢO
- Aishwarya, K., Bhagwat, P. V., & John, N. (2020). Current concepts in melasma – A review article. Journal of Skin and Sexually Transmitted Diseases, 2, 13–17.
- Ali, L., & Niaimi, F. A. (2025). Pathogenesis of melasma explained. International Journal of Dermatology, 64(7), 1201–1212.
- Bao, M., Gempeler, M., & Campiche, R. (2025). Melanosome Transport and Processing in Skin Pigmentation: Mechanisms and Targets for Pigmentation Modulation. International Journal of Molecular Sciences, 26(17), 8630.
- Bellei, B., Pitisci, A., Catricalà, C., Larue, L., & Picardo, M. (2010). Wnt/β‐catenin signaling is stimulated by α‐melanocyte‐stimulating hormone in melanoma and melanocyte cells: implication in cell differentiation. Pigment Cell & Melanoma Research, 24(2), 309–325.
- Bellei, B., Pitisci, A., Izzo, E., & Picardo, M. (2012). Inhibition of melanogenesis by the pyridinyl imidazole class of compounds: possible involvement of the WNT/Β-Catenin signaling pathway. PLoS ONE, 7(3), e33021.
- Birlea, S. A., Costin, G., Roop, D. R., & Norris, D. A. (2016). Trends in regenerative medicine: Repigmentation in vitiligo through melanocyte stem cell mobilization. Medicinal Research Reviews, 37(4), 907–935.
- Campiche, R., Imfeld, D., Cuddapah, C., Budel, L., & Gempeler, M. (2024). Establishing the Inhibition of the Serine Protease Plasmin as a Skin Anti-Aging Pathway. Cosmetics, 11(3), 103.
- Caughey, G. H. (2007). Mast cell tryptases and chymases in inflammation and host defense. Immunological Reviews, 217(1), 141–154.
- Chen, Y., Chen, Y., Huang, L., & Yu, J. (2011). Evaluation of heparanase and matrix metalloproteinase‐9 in patients with cutaneous malignant melanoma. The Journal of Dermatology, 39(4), 339–343.
- Cho, E., Hyung, K. E., Choi, Y.-H., Chun, H., Kim, D., Jun, S.-H., & Kang, N.-G. (2024). Modulating OCA2 Expression as a Promising Approach to Enhance Skin Brightness and Reduce Dark Spots. Biomolecules, 14(10), 1284.
- D’Mello, S., Finlay, G., Baguley, B., & Askarian-Amiri, M. (2016). Signaling pathways in melanogenesis. International Journal of Molecular Sciences, 17(7), 1144.
- Du, J., Miller, A. J., Widlund, H. R., Horstmann, M. A., Ramaswamy, S., & Fisher, D. E. (2003). MLANA/MART1 and SILV/PMEL17/GP100 are transcriptionally regulated by MITF in melanocytes and melanoma. American Journal of Pathology, 163(1), 333–343.
- Espósito, A. C. C., Brianezi, G., Miot, L. D. B., & Miot, H. A. (2022). Fibroblast morphology, growth rate and gene expression in facial melasma. Anais Brasileiros De Dermatologia, 97(5), 575–582.
- Espósito, A. C. C., Cassiano, D. P., Da Silva, C. N., Lima, P. B., Dias, J. a. F., Hassun, K., Bagatin, E., Miot, L. D. B., & Miot, H. A. (2022b). Update on Melasma—Part I: Pathogenesis. Dermatology and Therapy, 12(9), 1967–1988.
- García‐Borrón, J. C., Abdel‐Malek, Z., & Jiménez‐Cervantes, C. (2014). MC1R, the cAMP pathway, and the response to solar UV: extending the horizon beyond pigmentation. Pigment Cell & Melanoma Research, 27(5), 699–720.
- Gilat, D., Hershkoviz, R., Goldkorn, I., Cahalon, L., Korner, G., Vlodavsky, I., & Lider, O. (1995). Molecular behavior adapts to context: heparanase functions as an extracellular matrix-degrading enzyme or as a T cell adhesion molecule, depending on the local pH. The Journal of Experimental Medicine, 181(5), 1929–1934.
- Hida, T., Kamiya, T., Kawakami, A., Ogino, J., Sohma, H., Uhara, H., & Jimbow, K. (2020). Elucidation of melanogenesis cascade for identifying pathophysiology and therapeutic approach of pigmentary disorders and melanoma. International Journal of Molecular Sciences, 21(17), 6129.
- Hoashi, T., Watabe, H., Muller, J., Yamaguchi, Y., Vieira, W. D., & Hearing, V. J. (2005). MART-1 is required for the function of the melanosomal matrix protein PMEL17/GP100 and the maturation of melanosomes. Journal of Biological Chemistry, 280(14), 14006–14016.
- Iriyama, S., Matsunaga, Y., Takahashi, K., Matsuzaki, K., Kumagai, N., & Amano, S. (2011). Activation of heparanase by ultraviolet B irradiation leads to functional loss of basement membrane at the dermal–epidermal junction in human skin. Archives of Dermatological Research, 303(4), 253–261.
- Jin, W., Stehbens, S. J., Barnard, R. T., Blaskovich, M. a. T., & Ziora, Z. M. (2023). Dysregulation of tyrosinase activity: a potential link between skin disorders and neurodegeneration. Journal of Pharmacy and Pharmacology, 76(1), 13–22.
- Katiyar, S., Yadav, D., & Singh, S. K. (2024). Markers of Oxidative Stress and Tyrosinase Activity in Melasma Patients:A Biochemical Investigation. Current Protein and Peptide Science, 25(2), 183–188.
- Kobayashi, T., Urabe, K., Winder, A., Jiménez-Cervantes, C., Imokawa, G., Brewington, T., Solano, F., García-Borrón, J., & Hearing, V. (1994). Tyrosinase related protein 1 (TRP1) functions as a DHICA oxidase in melanin biosynthesis. The EMBO Journal, 13(24), 5818–5825.
- Kwon, S.-H., Hwang, Y.-J., Lee, S.-K., & Park, K.-C. (2016). Heterogeneous Pathology of Melasma and Its Clinical Implications. International Journal of Molecular Sciences, 17(6), 824.
- Lazar, A. M., Costea, D. O., Popp, C. G., & Mastalier, B. (2024). Skin Malignant Melanoma and Matrix Metalloproteinases: Promising Links to Efficient Therapies. International Journal of Molecular Sciences, 25(14), 7804.
- Le, L., Escobar, I. E., Ho, T., Lefkovith, A. J., Latteri, E., Haltaufderhyde, K. D., Dennis, M. K., Plowright, L., Sviderskaya, E. V., Bennett, D. C., Oancea, E., & Marks, M. S. (2020). SLC45A2 protein stability and regulation of melanosome pH determine melanocyte pigmentation. Molecular Biology of the Cell, 31(24), 2687–2702.
- Liu, W., Chen, Q., & Xia, Y. (2023). New mechanistic insights of Melasma. Clinical Cosmetic and Investigational Dermatology, Volume 16, 429–442.
- Maddaleno, A. S., Camargo, J., Mitjans, M., & Vinardell, M. P. (2021). Melanogenesis and Melasma Treatment. Cosmetics, 8(3), 82.
- Miao, F., Wan, J., Zhou, Y., & Shi, Y. (2025). Unraveling Melasma: From Epidermal Pigmentation to Microenvironmental Dysregulation. Biology, 14(10), 1402.
- Nishioka, E., Funasaka, Y., Kondoh, H., Chakraborty, A. K., Mishima, Y., & Ichihashi, M. (1999). Expression of tyrosinase, TRP-1 and TRP-2 in ultraviolet-irradiated human melanomas and melanocytes.https://www.academia.edu/download/123159827/00008390-199910000-0000220250606-1-cz0pal.pdf Melanoma Research, 9(5), 433–444.
- Ogura, Y., Matsunaga, Y., Nishiyama, T., & Amano, S. (2008). Plasmin induces degradation and dysfunction of laminin 332 (laminin 5) and impaired assembly of basement membrane at the dermal–epidermal junction. British Journal of Dermatology, 159(1), 49–60.
- Park, K., & Kim, I. (2017). Pathogenesis of Melasma.
- Phansuk, K., Vachiramon, V., Jurairattanaporn, N., Chanprapaph, K., & Rattananukrom, T. (2022). Dermal Pathology in Melasma: An update review. Clinical Cosmetic and Investigational Dermatology, Volume 15, 11–19.
- Philips, N., Auler, S., Hugo, R., & Gonzalez, S. (2011). Beneficial regulation of matrix metalloproteinases for skin health. Enzyme Research, 2011, 1–4.
- Raposo, Graça; Marks, Michael S.. (2007). Melanosomes — dark organelles enlighten endosomal membrane transport. , 8(10), 786–797.
- Robinson, C. L., Evans, R. D., Sivarasa, K., Ramalho, J. S., Briggs, D. A., & Hume, A. N. (2019). The adaptor protein melanophilin regulates dynamic myosin-Va:cargo interaction and dendrite development in melanocytes. Molecular Biology of the Cell, 30(6), 742–752.
- Roig-Rosello, E., & Rousselle, P. (2020). The Human Epidermal Basement Membrane: A Shaped and Cell Instructive Platform That Aging Slowly Alters. Biomolecules, 10(12), 1607.
- Salo, T., Liotta, L. A., Keski‐Oja, J., Turpeenniemi‐Hujanen, T., & Tryggvason, K. (1982). Secretion of basement membrane collagen degrading enzyme and plasminogen activator by transformed cells – role in metastasis. International Journal of Cancer, 30(5), 669–673.
- Strom, M., Hume, A. N., Tarafder, A. K., Barkagianni, E., & Seabra, M. C. (2002). A family of RAB27-binding proteins. Journal of Biological Chemistry, 277(28), 25423–25430.
- Sriwiriyanont, P., Ohuchi, A., Hachiya, A., Visscher, M. O., & Boissy, R. E. (2006). Interaction between stem cell factor and endothelin-1: effects on melanogenesis in human skin xenografts. Laboratory Investigation, 86(11), 1115–1125.
- Theos, A. C., Truschel, S. T., Raposo, G., & Marks, M. S. (2005). The Silver locus product Pmel17/gp100/Silv/ME20: controversial in name and in function. Pigment cell research, 18(5), 322–336.
- Varkey, M., Ding, J., & Tredget, E. E. (2013). Superficial dermal fibroblasts enhance basement membrane and epidermal barrier formation in Tissue-Engineered skin: Implications for Treatment of skin basement membrane Disorders. Tissue Engineering Part A, 20(3–4), 131017062434004.
- Wagatsuma, T., Suzuki, E., Shiotsu, M., Sogo, A., Nishito, Y., Ando, H., Hashimoto, H., Petris, M. J., Kinoshita, M., & Kambe, T. (2023). Pigmentation and TYRP1 expression are mediated by zinc through the early secretory pathway-resident ZNT proteins. Communications Biology, 6(1), 403.
- Wiriyasermkul, P., Moriyama, S., & Nagamori, S. (2020). Membrane transport proteins in melanosomes: Regulation of ions for pigmentation. Biochimica Et Biophysica Acta (BBA) – Biomembranes, 1862(12), 183318.
- Yoshida-Amano, Y., Hachiya, A., Ohuchi, A., Kobinger, G. P., Kitahara, T., Takema, Y., & Fukuda, M. (2012). Essential role of RAB27A in determining constitutive human skin color. PLoS ONE, 7(7), e41160.
- Yoshida, M., Takahashi, Y., & Inoue, S. (2000). Histamine induces melanogenesis and morphologic changes by protein kinase a activation via H2 receptors in human normal melanocytes. Journal of Investigative Dermatology, 114(2), 334–342.
- Zolghadri, S., Beygi, M., Mohammad, T. F., Alijanianzadeh, M., Pillaiyar, T., Garcia-Molina, P., Garcia-Canovas, F., Munoz-Munoz, J., & Saboury, A. A. (2023). Targeting tyrosinase in hyperpigmentation: Current status, limitations and future promises. Biochemical Pharmacology, 212, 115574.

Twins Skin là thương hiệu mỹ phẩm chuẩn khoa học đầu tiên của Việt Nam, tiên phong ứng dụng các công nghệ bọc tiên tiến, dựa trên nền tảng khoa học đã được nghiên cứu chứng nhận. Đội ngũ nghiên cứu của Twins Skin gồm: kỹ sư hoá sinh, kỹ sư hoá dược, sự tham vấn từ bác sĩ da liễu và bác sĩ da liễu thẩm mỹ.
Mỗi khách hàng đến với Twins Skin đều sẽ được thiết quy trình cá nhân hoá dựa vào lịch sử da và vấn đề da. Twins Skin cam kết đảm bảo quyền lợi của bạn với chính sách bảo hành/đổi trả miễn phí. Tìm hiểu và kết nối cùng Twins tại:


https://shorturl.fm/JcGt7