
Khoa Học Làn Da
Màng sinh học và câu chuyện kháng kháng sinh – Sự đáng sợ khi vi khuẩn biết “hiệp đồng”
Th1
Có gì trong bài viết này
Theo báo cáo Gánh nặng Bệnh tật Toàn cầu (GBD) năm 2019, ước tính có 14 triệu ca tử vong liên quan đến nhiễm trùng, biến nó trở thành nguyên nhân gây tử vong đứng thứ hai sau bệnh thiếu máu cơ tim. Trong đó, các tác nhân gây bệnh do vi khuẩn là nguyên nhân của 7,7 triệu ca tử vong và đến tận 1,3 triệu ca tử vong trong đó là do vi khuẩn kháng thuốc.
Theo một thống kê, với những chủng khuẩn thường gặp như Escherichia coli (hay gặp trong đường ruột) và Salmonella enterica (hay gặp trong các bệnh về đường ruột hay thịt ôi thiu), cứ mỗi 5 con vi khuẩn bất kì ở ngoài kia thì sẽ có ít nhất 1 con có thể kháng được một loại kháng sinh nào đó.
Còn ở trên phương diện da liễu, một nghiên cứu từ năm 1998 đã cho thấy thực trạng đáng lo ngại: Staphylococcus aureus (vi khuẩn tụ cầu vàng) đã phát triển khả năng kháng penicillin trên phạm vi toàn cầu, với hơn 90% các chủng sản xuất được enzyme β-lactamase – một cơ chế kháng penicillin. Kháng methicillin (MRSA) cũng là một vấn đề nghiêm trọng với tỷ lệ kháng vượt quá 50%. Đáng lo ngại hơn, các chủng MRSA thường kháng nhiều hơn một loại kháng sinh khác, bao gồm erythromycin và tetracycline. Hiện tượng kháng quinolone ở dòng khuẩn này cũng đang diễn ra nhanh chóng.
Mặc dù liên cầu khuẩn nhóm A – Streptococcus Group A (Group A Beta Hemolytic Streptococcus – GABHS) vẫn còn khá nhạy cảm với penicillin, nhưng tình trạng kháng erythromycin và tetracycline ở nhóm vi khuẩn này cũng đang được ghi nhận ngày càng nhiều.
Còn đối với Cutibacterium acnes (C. acnes, đặc biệt là chủng IA1 được cho chủng vi khuẩn gây mụn trứng cá), việc điều trị bằng cả kháng sinh toàn thân và kháng sinh đường uống thường dẫn đến tình trạng kháng thuốc ở hơn 50% trường hợp. Ước tính cho thấy cứ bốn bệnh nhân bị mụn trứng cá thì có một người mang các chủng C. acnes kháng đồng thời tetracycline, erythromycin và clindamycin.
Đấy là những thông tin đã được ghi nhận từ năm 1998. Còn bây giờ đã là năm 2025, tức là thêm gần 3 thập kỷ sử dụng kháng sinh trôi qua. Kháng kháng sinh – một cụm từ nghe có vẻ xa lạ vài thập kỷ trước, giờ đây đã trở thành một trong những thách thức lớn nhất đối với sức khỏe nhân loại toàn cầu. Từ những ca nhiễm khuẩn thông thường đến các bệnh lý nghiêm trọng, vi khuẩn kháng thuốc đang đẩy nền y học vào nguy cơ mất đi những “vũ khí” có tính nền tảng.
Đặc biệt, sự tồn tại của màng sinh học – một cấu trúc tự vệ phức tạp mới được phổ biến hoá trong đại chúng thời gian gần đây – không chỉ khiến vi khuẩn kháng thuốc mạnh hơn mà còn là nguyên nhân chính gây ra các bệnh nhiễm trùng mãn tính, từ nhiễm trùng vết thương đến các bệnh lý da liễu dai dẳng. Chúng được ví như “pháo đài bất khả xâm phạm” của vi khuẩn, khiến các phương pháp tiếp cận truyền thống ngày càng trở nên kém hiệu quả. Liệu có phải chính trong sức mạnh của màng sinh học, chúng ta sẽ tìm thấy chìa khóa để đối phó với kháng kháng sinh?
Vậy màng sinh học là gì? Nó có gì thú vị hay nguy hiểm không? Các Đồng Điệu hãy cùng chuẩn bị sổ bút để tham qua một vòng về màng sinh học với Twins ngheng.
1. Kháng kháng sinh: Khi vi khuẩn cũng học cách thích nghi và đáp trả
Vi khuẩn, những sinh vật tưởng chừng nhỏ bé, đang ngày càng trở nên “bất khả chiến bại” trước các loại thuốc kháng sinh. Vậy, bằng cách nào mà chúng có thể “lách luật” và vô hiệu hóa những vũ khí mạnh mẽ này? Trước tiên, hãy cùng Twins điểm qua các cơ chế kháng kháng sinh hiện đã được phát hiện và nghiên cứu ở vi khuẩn:
- Sản xuất enzyme phân hủy hoặc biến đổi kháng sinh: Vi khuẩn có thể sản xuất enzyme để phá hủy cấu trúc hoặc làm bất hoạt kháng sinh. VD: Enzyme β-lactamase, có khả năng phá vỡ vòng beta-lactam của penicillin và cephalosporin, khiến các thuốc này mất hiệu quả. Ngoài ra, các enzyme như aminoglycoside-modifying enzymes (AMEs) của vi khuẩn có thể gắn nhóm hóa học vào kháng sinh aminoglycoside, làm giảm khả năng gắn kết với ribosome (tổ chức quan trọng liên quan đến việc tạo protein) của vi khuẩn, giúp vi khuẩn bảo vệ được việc sản xuất protein, thành phần quan trọng làm nên sự sống của chúng.
- Thay đổi hoặc bảo vệ mục tiêu mà kháng sinh muốn tấn công: Một số vi khuẩn thay đổi cấu trúc đích của kháng sinh để kháng sinh không thể gắn kết hoặc tác động. VD: Liên cầu khuẩn kháng methicillin (MRSA) thay đổi protein liên kết penicillin (PBP2a) khiến các beta-lactam không thể ức chế tổng hợp thành tế bào. Một cơ chế khác là bảo vệ đích, như ở vi khuẩn kháng tetracycline, sử dụng protein TetM để bảo vệ ribosome khỏi tác động của thuốc.
- Bơm ngược kháng sinh ra ngoài (Efflux pumps): Vi khuẩn có thể sử dụng cách bơm ngược để đẩy kháng sinh ra khỏi tế bào trước khi kháng sinh đạt đến nồng độ hiệu quả. Các hệ thống bơm này, như AcrAB-TolC ở vi khuẩn Escherichia coli, hoạt động chống lại nhiều loại kháng sinh, bao gồm tetracycline, fluoroquinolone và macrolide, góp phần vào sự kháng đa thuốc.
- Giảm tính thấm màng tế bào: Vi khuẩn có thể làm giảm khả năng kháng sinh thâm nhập vào tế bào bằng cách thay đổi cấu trúc màng ngoài hoặc giảm số lượng porin (kênh protein) trên màng. Điều này thường thấy ở khuẩn Pseudomonas aeruginosa và các vi khuẩn Gram âm khác, giúp chúng kháng lại carbapenem và nhiều loại thuốc kháng sinh khác.
- Kháng thuốc bằng cơ chế thay thế chuyển hóa: Vi khuẩn có thể thay đổi hoặc tạo con đường chuyển hóa mới để vượt qua tác động của thuốc. VD: Vi khuẩn kháng sulfonamide tạo ra một enzyme dihydropteroate synthase (DHPS) có ái lực thấp với thuốc hoặc sử dụng nguồn folate từ môi trường thay vì tổng hợp nội bào.
- Tăng sản xuất đích tác động: Vi khuẩn tạo ra một lượng lớn enzyme hoặc protein mà kháng sinh nhắm tới, làm “làm loãng” hiệu quả của thuốc. VD: Với kháng sinh trimethoprim nhắm vào enzyme dihydrofolate reductase (DHFR) trong con đường tổng hợp folic acid, vi khuẩn phản ứng bằng cách tăng cường sản xuất DHFR, đảm bảo đủ enzyme hoạt động dù một phần đã bị kháng sinh ức chế.
- Thu nhận và chia sẻ gen kháng thuốc: Vi khuẩn có thể thu nhận gen kháng kháng sinh thông qua quá trình chuyển gen ngang (horizontal gene transfer), bao gồm tiếp hợp (conjugation), biến nạp (transformation) hoặc tải nạp (transduction). Các gen này thường nằm trên plasmid (cấu trúc DNA dạng vòng tồn tại độc lập với bộ gen của vi khuẩn), dễ dàng lan truyền trong cộng đồng vi khuẩn.
+ Tiếp hợp: Là quá trình vi khuẩn truyền vật liệu di truyền từ tế bào này sang tế bào khác qua tiếp xúc trực tiếp bằng cầu nối protein gọi là pili – hơi tương tự như giao phối ở động vật bậc cao, hai cá thể vi khuẩn tham gia tiếp hợp đôi khi còn có thể được chia thành “đực” và “cái”.
+ Biến nạp: Là quá trình vi khuẩn chủ động “nuốt” lấy các mảnh DNA tự do, trôi nổi từ môi trường xung quanh và tích hợp vào bộ gen của mình.
+ Tải nạp: Là quá trình vi khuẩn nhận DNA từ một vi khuẩn khác qua các vector vận chuyển trung gian là thực khuẩn thể (bacteriophage). - Tăng cường cơ chế sửa chữa tổn thương DNA: Kháng sinh fluoroquinolone tấn công DNA của vi khuẩn bằng cách ức chế enzyme gyrase – loại enzyme giúp duy trì cấu trúc của DNA vi khuẩn. Tuy nhiên, vi khuẩn có thể tăng cường các cơ chế sửa chữa DNA, như hệ thống SOS, để giảm tác dụng gây chết của kháng sinh này.
Bạn thấy đấy, vi khuẩn có thể tiến hoá ra hằng hà sa số cách để kháng kháng sinh, nhưng bằng mắt thường thì sao con người có thể phân biệt được nhỉ? Vậy những biểu hiện hay dấu hiệu nào có thể dùng để nhận biết da bạn có thể đang bị viêm nhiễm do khuẩn kháng sinh?
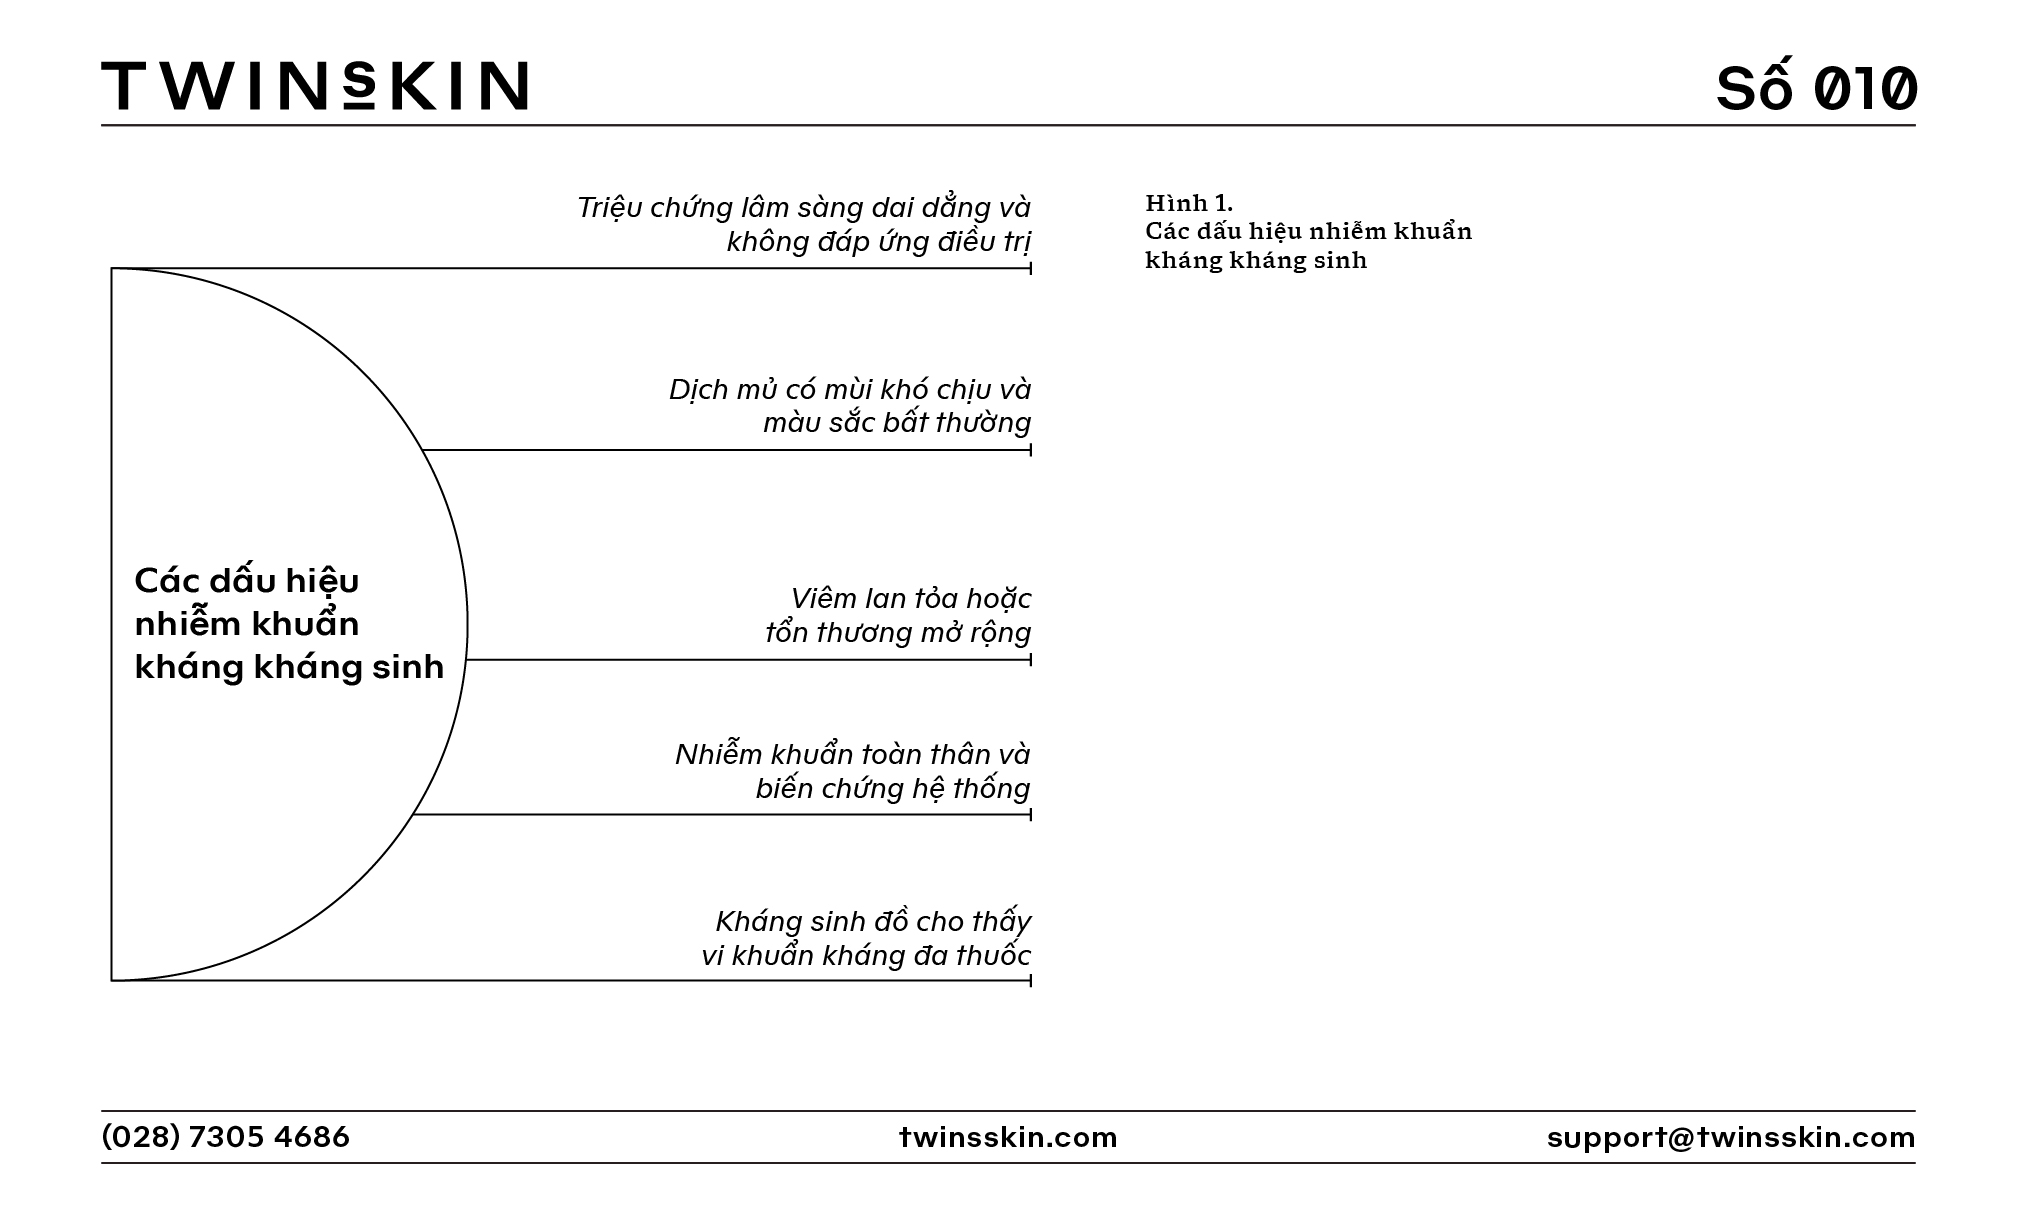
- Triệu chứng lâm sàng dai dẳng và không đáp ứng điều trị: Một trong những dấu hiệu đầu tiên cho thấy da bị nhiễm khuẩn kháng kháng sinh là các triệu chứng lâm sàng không thuyên giảm dù đã điều trị đúng phác đồ. Thông thường, nhiễm khuẩn da sẽ cải thiện sau 48 – 72 giờ điều trị bằng kháng sinh phù hợp. Tuy nhiên, trong trường hợp nhiễm khuẩn kháng thuốc, các triệu chứng như sưng, đỏ, đau và chảy dịch vẫn tiếp tục tồn tại hoặc thậm chí nặng hơn.
- Dịch mủ có mùi khó chịu và màu sắc bất thường: Nhiễm khuẩn kháng kháng sinh trên da thường đi kèm với sự xuất hiện của dịch mủ có mùi khó chịu, báo hiệu sự phân hủy mô do vi khuẩn. Màu sắc của dịch mủ có thể thay đổi từ vàng, xanh đến nâu sẫm tùy thuộc vào loại vi khuẩn. Pseudomonas aeruginosa, một vi khuẩn Gram âm kháng nhiều loại kháng sinh, thường sản xuất dịch mủ màu xanh lục do sự hiện diện của pyocyanin, một độc tố đặc trưng. Sự tiết mủ bất thường này là biểu hiện của một nhiễm khuẩn phức tạp, khó kiểm soát.
- Viêm lan tỏa hoặc tổn thương mở rộng: Nhiễm khuẩn kháng kháng sinh không chỉ giới hạn ở vùng tổn thương ban đầu mà còn có thể lan tỏa đến các khu vực lân cận hoặc mô sâu. Các dấu hiệu như viêm đỏ lan rộng, tăng nhiệt độ tại chỗ hoặc xuất hiện đường đỏ chạy dọc từ vết thương cho thấy vi khuẩn đang tiếp tục phát triển mạnh mẽ bất chấp điều trị.
- Nhiễm khuẩn toàn thân và biến chứng hệ thống: Trong các trường hợp nghiêm trọng, nhiễm khuẩn kháng kháng sinh trên da có thể dẫn đến các biến chứng toàn thân, như sốt cao, hạ huyết áp và suy đa cơ quan. Điều này thường xảy ra khi vi khuẩn kháng thuốc lan vào máu (nhiễm trùng huyết), đặc biệt ở các bệnh nhân suy giảm miễn dịch hoặc có bệnh lý nền. VD: Acinetobacter baumannii và Klebsiella pneumoniae là hai loại vi khuẩn Gram âm kháng nhiều thuốc, thường gây nhiễm trùng da lan rộng và nhiễm khuẩn huyết khó kiểm soát, dẫn đến tỷ lệ tử vong cao nếu không được điều trị kịp thời.
- Kháng sinh đồ cho thấy vi khuẩn kháng đa thuốc: Một dấu hiệu xác định rõ nhất nhưng thường cần đến xét nghiệm bổ sung là kháng sinh đồ (antibiogram). Khi da bị nhiễm khuẩn, mẫu dịch từ vết thương được nuôi cấy để xác định vi khuẩn và mức độ nhạy cảm với kháng sinh. Trong các trường hợp kháng thuốc, vi khuẩn có thể kháng lại nhiều nhóm kháng sinh, chỉ để lại rất ít lựa chọn điều trị. VD: Pseudomonas aeruginosa kháng carbapenem hoặc Klebsiella pneumoniae kháng colistin là những trường hợp nghiêm trọng thường gặp trong thực tế lâm sàng.
2. Màng sinh học trong sinh bệnh học – Cơ chế gây kháng kháng sinh tối cơ bản có lẽ đã bị lãng quên
Bạn có biết: Màng sinh học (biofilm) cũng là một cơ chế của vi khuẩn để chống lại kháng sinh.
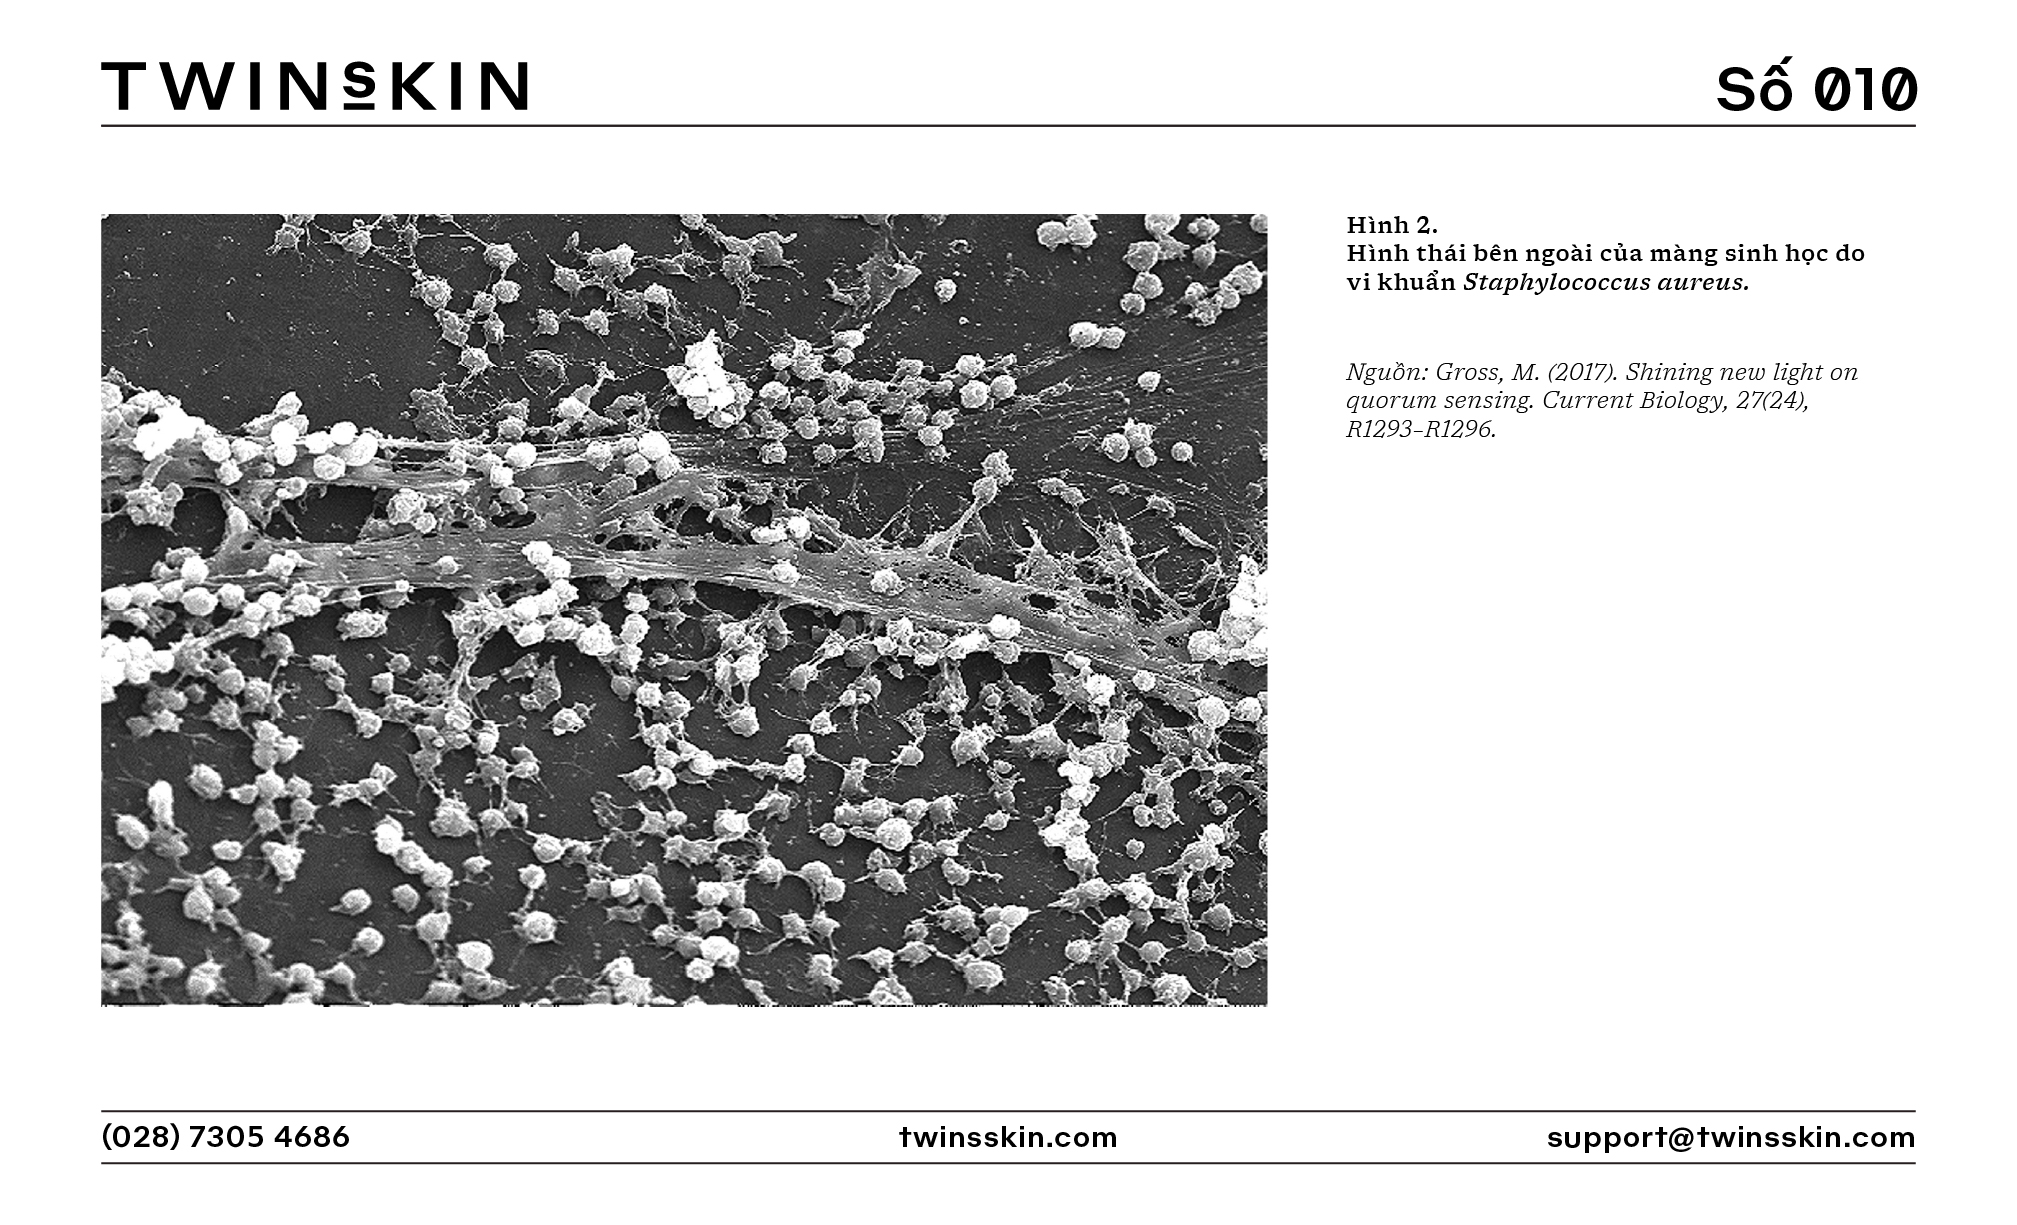
Tuy nhiên trước đây, vai trò của màng sinh học trong sinh bệnh học, đặc biệt là các bệnh da liễu, có lẽ vẫn chưa nhận được sự chú ý xứng đáng. Từ các nhiễm trùng mãn tính như viêm nang lông mãn tính, viêm mô da mãn tính, chàm bội nhiễm, đến các tổn thương da phức tạp ở bệnh nhân đái tháo đường hoặc bỏng, màng sinh học không chỉ là nơi trú ẩn của vi khuẩn mà còn là “pháo đài” kháng thuốc tinh vi. Tình trạng này đặt ra câu hỏi quan trọng:
Phải chăng chúng ta đã bỏ quên một cơ chế gây kháng kháng sinh tối quan trọng và cơ bản nhất trong cuộc chiến chống lại vi khuẩn?
Cơ chế kháng kháng sinh bằng màng sinh học của vi khuẩn khó nhận biết và phát hiện hơn các cơ chế khác vì màng sinh học là một cấu trúc bảo vệ tập thể, chứ không phải chỉ dựa vào các đặc tính hay sự biến đổi của từng cá thể vi khuẩn, dẫn đến không thể dễ dàng xét nghiệm là ra được liền. Có những vi khuẩn nếu tách riêng rẽ ra thì chẳng kháng thuốc mấy, nhưng lại được tìm thấy trong màng nhầy (sau này mới được xác định rõ ràng là màng sinh học) ở những ca bệnh không đáp ứng kháng sinh.
Điều này, thời gian đầu, có thể gây nhầm lẫn rằng những vi khuẩn đó chỉ do vô tình dính vào lớp màng nhầy hay chỉ đơn giản là “sống tạm” trên lớp màng nhầy đó mà thôi.
Kèm với các biểu hiện kháng kháng sinh khác, vùng tổn thương có màng sinh học thường chậm lành, với bề mặt vết thương có thể bị phủ bởi một lớp màng nhầy hoặc váng trong suốt. Đây là sản phẩm của vi khuẩn trong màng sinh học, giúp chúng chống lại tác động của kháng sinh và hệ miễn dịch. VD: Trong các vết loét chân do tiểu đường hay xuất hiện màng sinh học từ Staphylococcus aureus hoặc Enterococcus, gây viêm mạn tính và kéo dài quá trình hồi phục.
Khả năng kháng thuốc của vi khuẩn khi tập hợp trong màng sinh học là tổ hợp của nhiều yếu tố và thành phần. Vi khuẩn trong màng sinh học, như một “xã hội thu nhỏ”, không còn sống một cách riêng lẻ, mà bắt đầu “hội họp” và “phân công lao động”. Một số đảm nhận vai trò bảo vệ, số khác tập trung khai thác tài nguyên và một nhóm nhỏ sẵn sàng chuẩn bị cho những cuộc “phiêu lưu” tìm kiếm môi trường mới.
Sự hợp tác này là lý do màng sinh học trở nên khó bị phá hủy bởi kháng sinh hay hệ miễn dịch của vật chủ. Sự phân công này có thể được phân thành các nhóm “nhân công” cụ thể như sau:
- Nhóm kiến trúc sư – Xây dựng và củng cố lớp chất nền EPS: Ngay từ khi vi khuẩn quyết định định cư trên một bề mặt, một nhóm vi khuẩn bắt đầu tiết ra các chất nền ngoại bào (extracellular polymeric substances – EPS), gồm các loại đường đa, protein, lipid và DNA ngoại bào (eDNA). EPS đóng vai trò như “vữa xây dựng”, kết dính tất cả các vi khuẩn lại với nhau và tạo nên “tường thành” bảo vệ màng sinh học khỏi tác động bên ngoài. Những vi khuẩn này giống như các kiến trúc sư và thợ xây, kiên nhẫn xây dựng và duy trì cấu trúc bền vững cho “thành phố” của chúng.
- Nhóm lính canh – Bảo vệ cộng đồng: Lớp ngoài cùng của màng sinh học là nơi các “lính canh” – những vi khuẩn đầu tiên tiếp xúc với môi trường – hoạt động. Chúng không chỉ chịu trách nhiệm nhận diện các mối đe dọa từ kháng sinh, peptide kháng khuẩn hay đại thực bào, mà còn sản xuất các enzyme bảo vệ như beta-lactamase để phá hủy kháng sinh trước khi nó xâm nhập sâu vào màng sinh học. Ngoài ra, “lính canh” còn tham gia vào việc sửa đổi cấu trúc lipid A (đóng vai trò quan trọng trong việc bảo vệ vi khuẩn khỏi các tác động của môi trường, đồng thời là một yếu tố độc lực mạnh, góp phần gây ra phản ứng viêm trong cơ thể vật chủ) trong lipopolysaccharide (LPS), làm giảm khả năng hệ miễn dịch nhận diện chúng.
- Nhóm công nhân – Khai thác tài nguyên và vận chuyển: Bên trong màng sinh học, một nhóm vi khuẩn đảm nhận vai trò “công nhân”, chịu trách nhiệm khai thác và phân phối dinh dưỡng. Các kênh dẫn nước trong màng sinh học giống như những con đường giao thông, nơi các “công nhân” giúp duy trì sự lưu thông chất dinh dưỡng và loại bỏ chất thải. Nếu nguồn dinh dưỡng bị thiếu hụt, những vi khuẩn này còn kích hoạt các con đường chuyển hóa thay thế, như lên men kỵ khí, để đảm bảo năng lượng cho cộng đồng.
- Nhóm nhà khoa học – Giao tiếp và điều phối: Một số vi khuẩn hoạt động như các “nhà khoa học” và “nhà lãnh đạo”, tạo ra các tín hiệu hóa học (như quorum sensing molecules) để điều phối toàn bộ hoạt động của cộng đồng. Các tín hiệu này giống như “tin nhắn” giúp vi khuẩn biết khi nào cần tăng cường xây dựng EPS, kích hoạt bơm đẩy kháng sinh hoặc chuẩn bị cho sự phân tán.
- Nhóm thám hiểm – Chuẩn bị cho sự phân tán: Ở giai đoạn trưởng thành của màng sinh học, một số vi khuẩn biệt hóa thành những “nhà thám hiểm”, chuẩn bị cho việc rời khỏi cộng đồng để tìm kiếm môi trường mới. Những vi khuẩn này phát triển roi (flagella) để di chuyển, phá vỡ lớp EPS bằng enzyme như DNase và alginate lyase và kích hoạt các gen giúp tăng khả năng sống sót trong môi trường khắc nghiệt. Hành trình của chúng giống như việc khai phá vùng đất mới, mang theo “kinh nghiệm” di truyền từ màng sinh học cũ để khởi đầu chu kỳ mới.
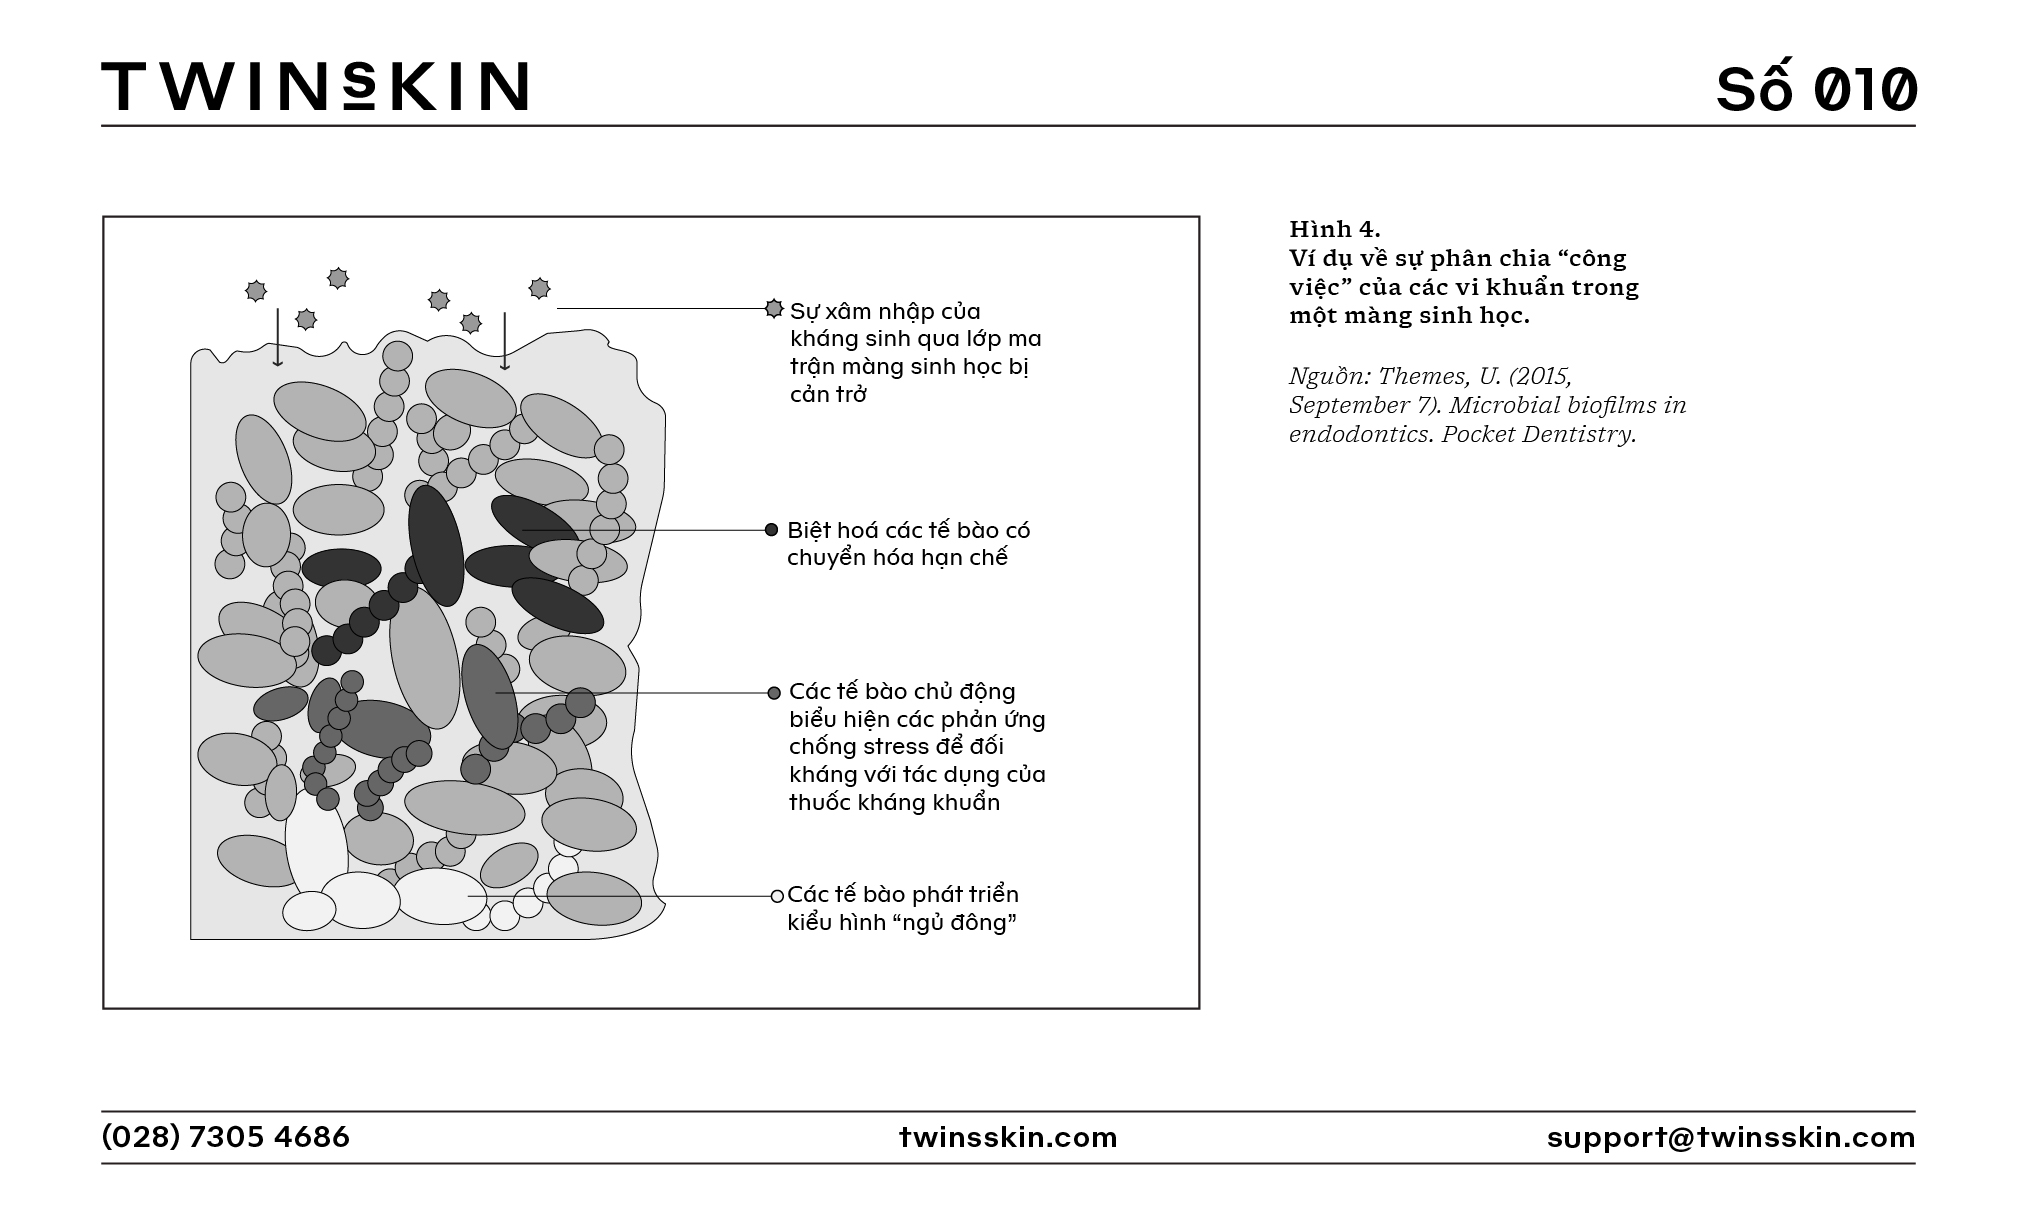
→ Tất cả các nhiệm vụ này được thực hiện một cách chặt chẽ và phối hợp, đảm bảo rằng mỗi cá thể trong cộng đồng đều đóng góp vào sự tồn tại chung. Nếu một nhóm thất bại – VD: Lớp “lính canh” không thể chống lại kháng sinh – cả “thành phố” sẽ bị đe dọa. Chính nhờ sự phân chia công việc và phối hợp này, màng sinh học trở thành một cộng đồng vi sinh vật mạnh mẽ, giúp vi khuẩn sống sót trong những điều kiện khắc nghiệt nhất.
Màng sinh học còn sở hữu một khả năng khá thú vị, cũng đóng góp một phần quan trọng cho khả năng kháng kháng sinh của màng – đó là khả năng tạo “nhà trú ẩn” cho các “tế bào ngủ đông”, hay còn gọi là “nhóm dự bị”.
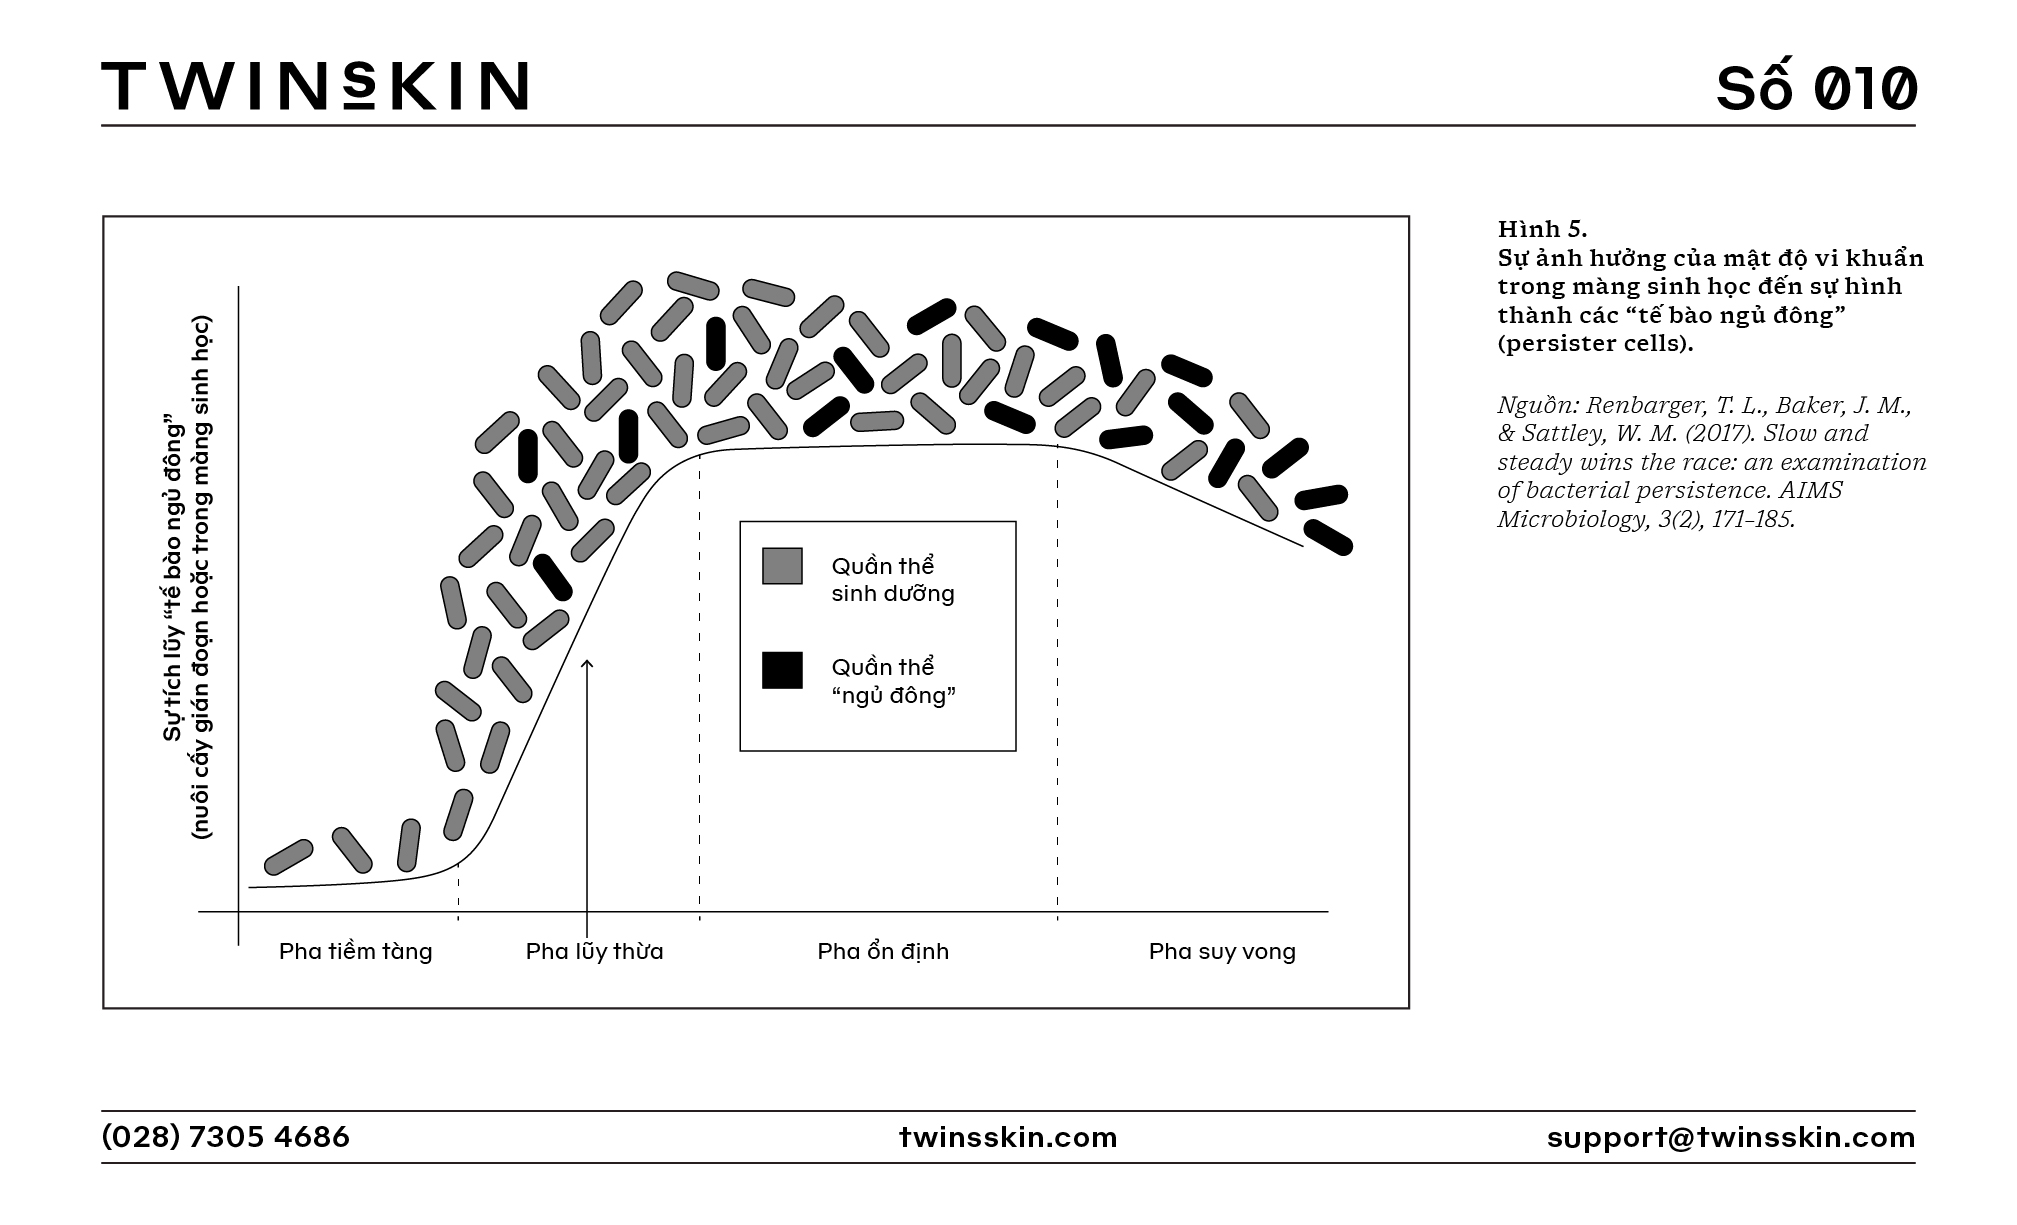
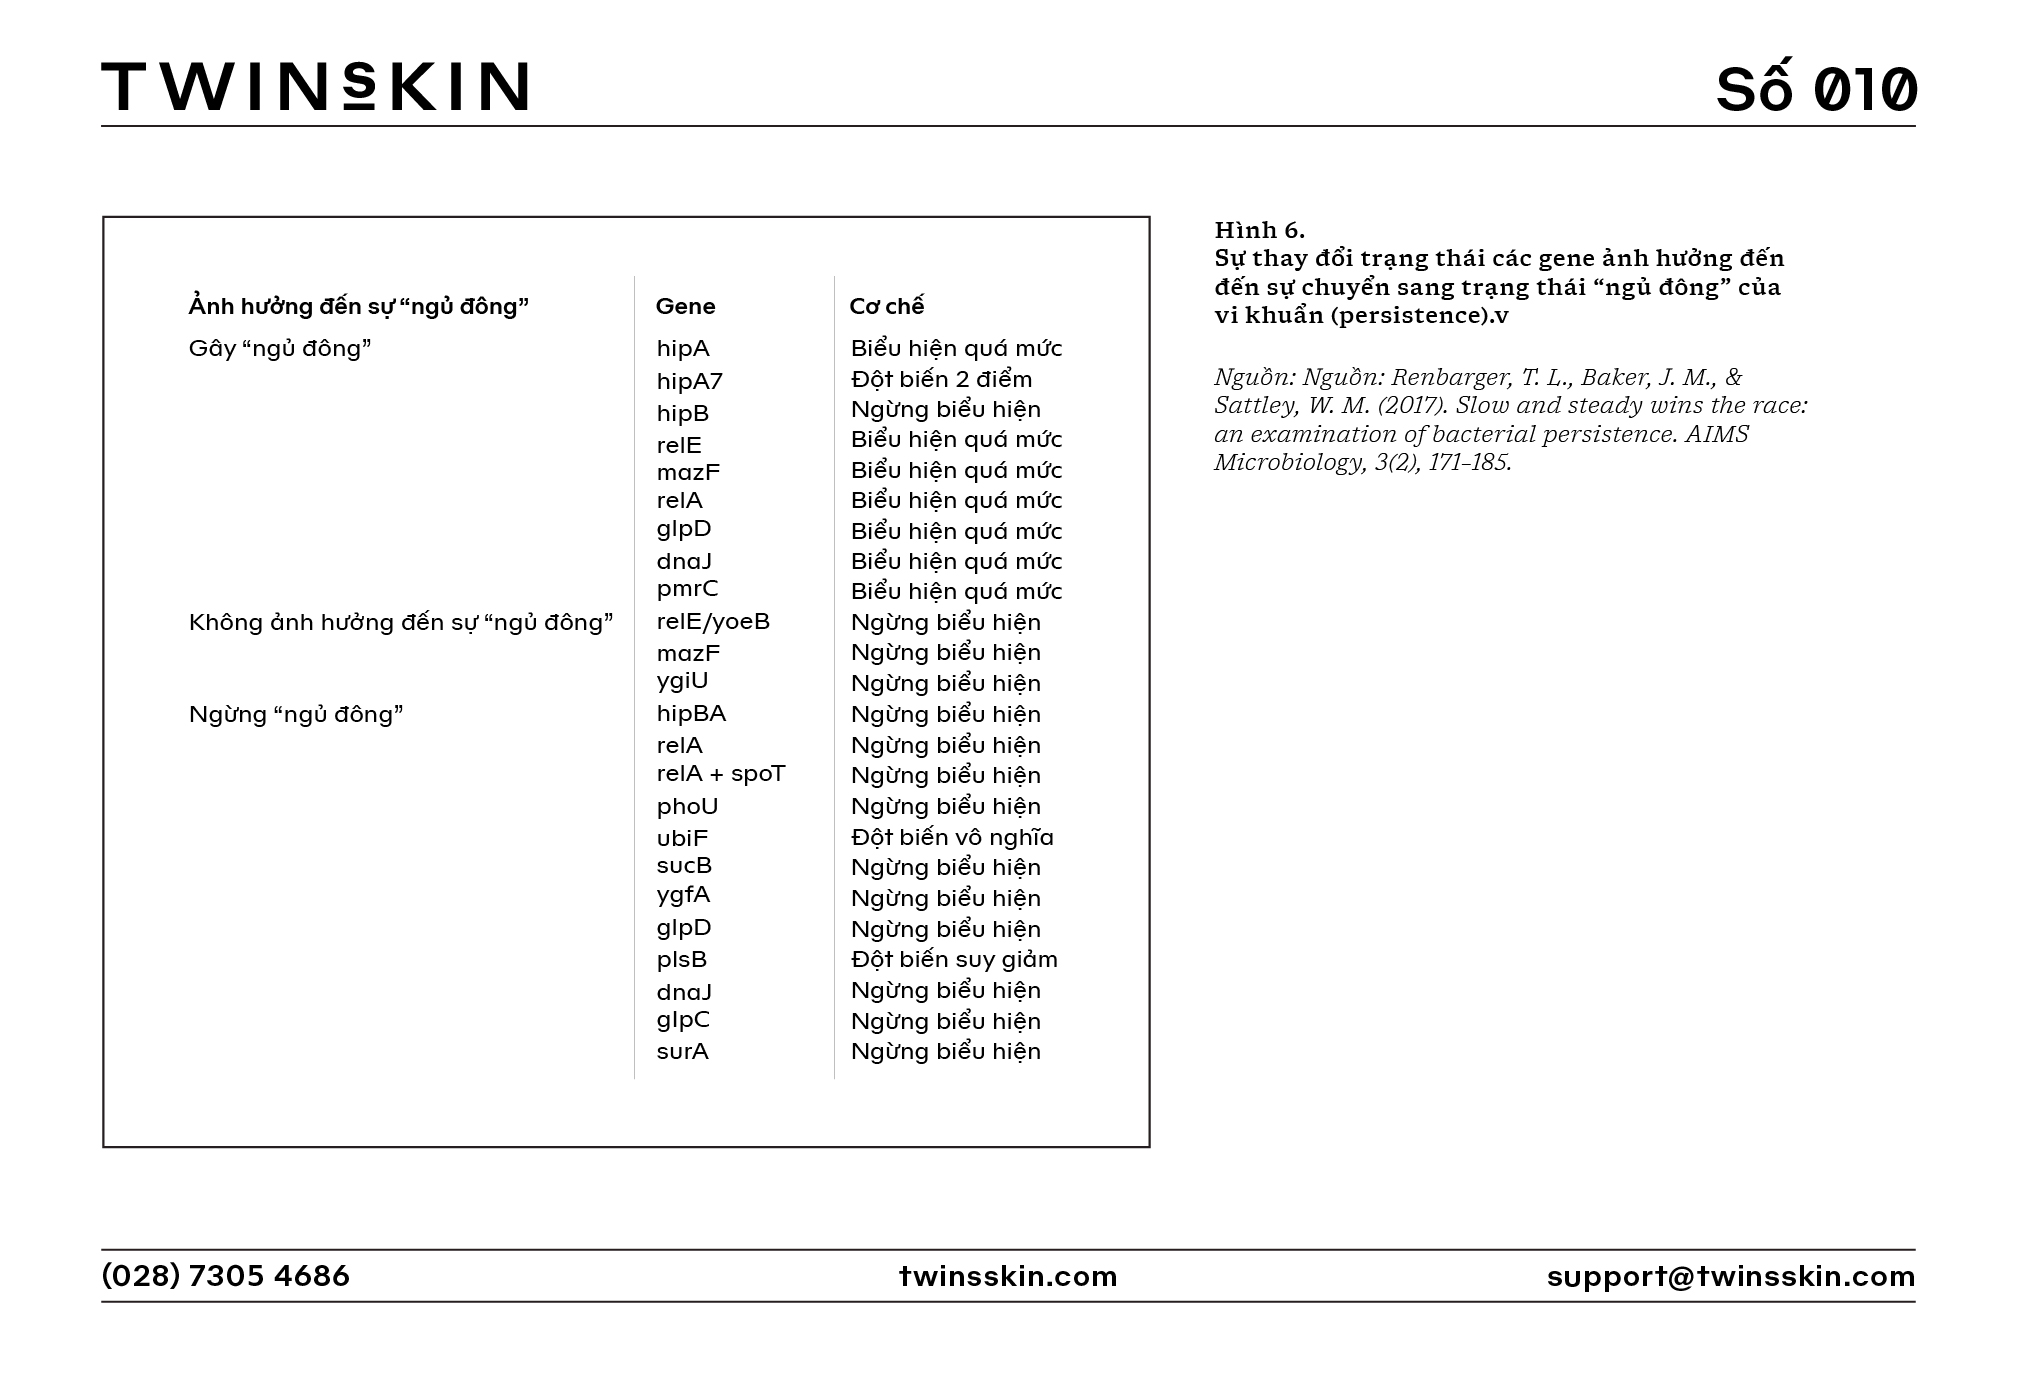
Sự tồn tại của các “tế bào ngủ đông” (persister cells – một số tài liệu không có tên tiếng Việt chính thức cho loại tế bào này) – những “kẻ ẩn náu” trong cộng đồng vi khuẩn, thông qua việc giảm chuyển hóa và hạn chế hoạt động tổng hợp protein, trở nên “vô hình” với hầu hết các loại kháng sinh, đặc biệt là kháng sinh phụ thuộc vào tốc độ sinh trưởng của vi khuẩn như aminoglycosides.
- Giảm chuyển hóa năng lượng: Ở trạng thái này, các tế bào giảm hô hấp tế bào, giảm tạo năng lượng nhờ sự kìm hãm hoạt động của chu trình Krebs (chu trình citric acid) và giảm tổng hợp ATP. Điều này làm suy yếu các con đường chuyển hoá mà kháng sinh thường nhắm đến, chẳng hạn như sự hấp thụ của aminoglycosides, loại kháng sinh phụ thuộc vào sự chuyển hóa năng lượng để xâm nhập vào tế bào vi khuẩn.
- Hạn chế tổng hợp protein: “Tế bào ngủ đông” ức chế biểu hiện của các gene mã hóa ribosome và các protein liên quan đến sinh trưởng. Điều này làm giảm hiệu quả của các kháng sinh như macrolide hoặc tetracycline, vốn nhắm đến quá trình tổng hợp protein.
Một số hệ thống điều hòa gene như toxin-antitoxin (TA) module đóng vai trò quan trọng trong việc duy trì trạng thái này. Các protein độc tố (toxin) như RelE hoặc HipA làm ngưng hoạt động ribosome, trong khi antitoxin bảo vệ tế bào khỏi tự hủy. Chính sự cân bằng này tạo ra trạng thái tạm thời của các “tế bào ngủ đông”, khiến chúng không bị tiêu diệt nhưng cũng không phát triển. Điều này còn có nghĩa rằng việc “dập” kháng sinh liên tục chỉ có thể đảm bảo tiêu diệt những cá thể đang sống, chứ không mấy tác dụng với thể “ngủ đông”.
Hơn nữa, tuy chiếm thiểu số, các “tế bào ngủ đông” thường tập trung ở các lớp sâu của màng sinh học, nơi nồng độ kháng sinh thấp hơn do sự khuếch tán hạn chế qua lớp chất nền EPS. Chính sự tồn tại “ngầm” và bền bỉ này là lời giải thích thỏa đáng cho hiện tượng tái phát thường xuyên của các bệnh nhiễm trùng da mãn tính. VD: Các “tế bào ngủ đông” trong màng sinh học của tụ cầu vàng kháng methicillin (MRSA) có khả năng sống sót cao trước vancomycin hoặc daptomycin, hai loại kháng sinh thường được sử dụng để điều trị nhiễm trùng da.
Điều này cũng là nguyên nhân sâu xa khiến các sản phẩm kháng khuẩn, diệt khuẩn trên thị trường chỉ dám cam kết tiêu diệt được 99% hay 99.9% vi khuẩn. Nói cách khác, con số 0.1% – 1% vi khuẩn còn sót lại đó, tuy nhỏ bé, nhưng hoàn toàn có thể ẩn náu trong các màng sinh học, trở thành nguồn “tái sinh” cho các đợt bùng phát nhiễm trùng sau này.
3. Cấu tạo của màng sinh học: Một thế giới vi mô với cấu tạo phức tạp
Màng sinh học thoạt nghe qua thì tưởng rằng chỉ một tấm màng vô tri vô giác, nhưng thật ra lại chính là một tập hợp sống đúng nghĩa. Chữ “sinh học” ở trong tên gọi “màng sinh học” vừa có nghĩa rằng “có nguồn gốc từ cơ thể sống”, vừa có nghĩa rằng “có chứa cơ thể sống” nữa.
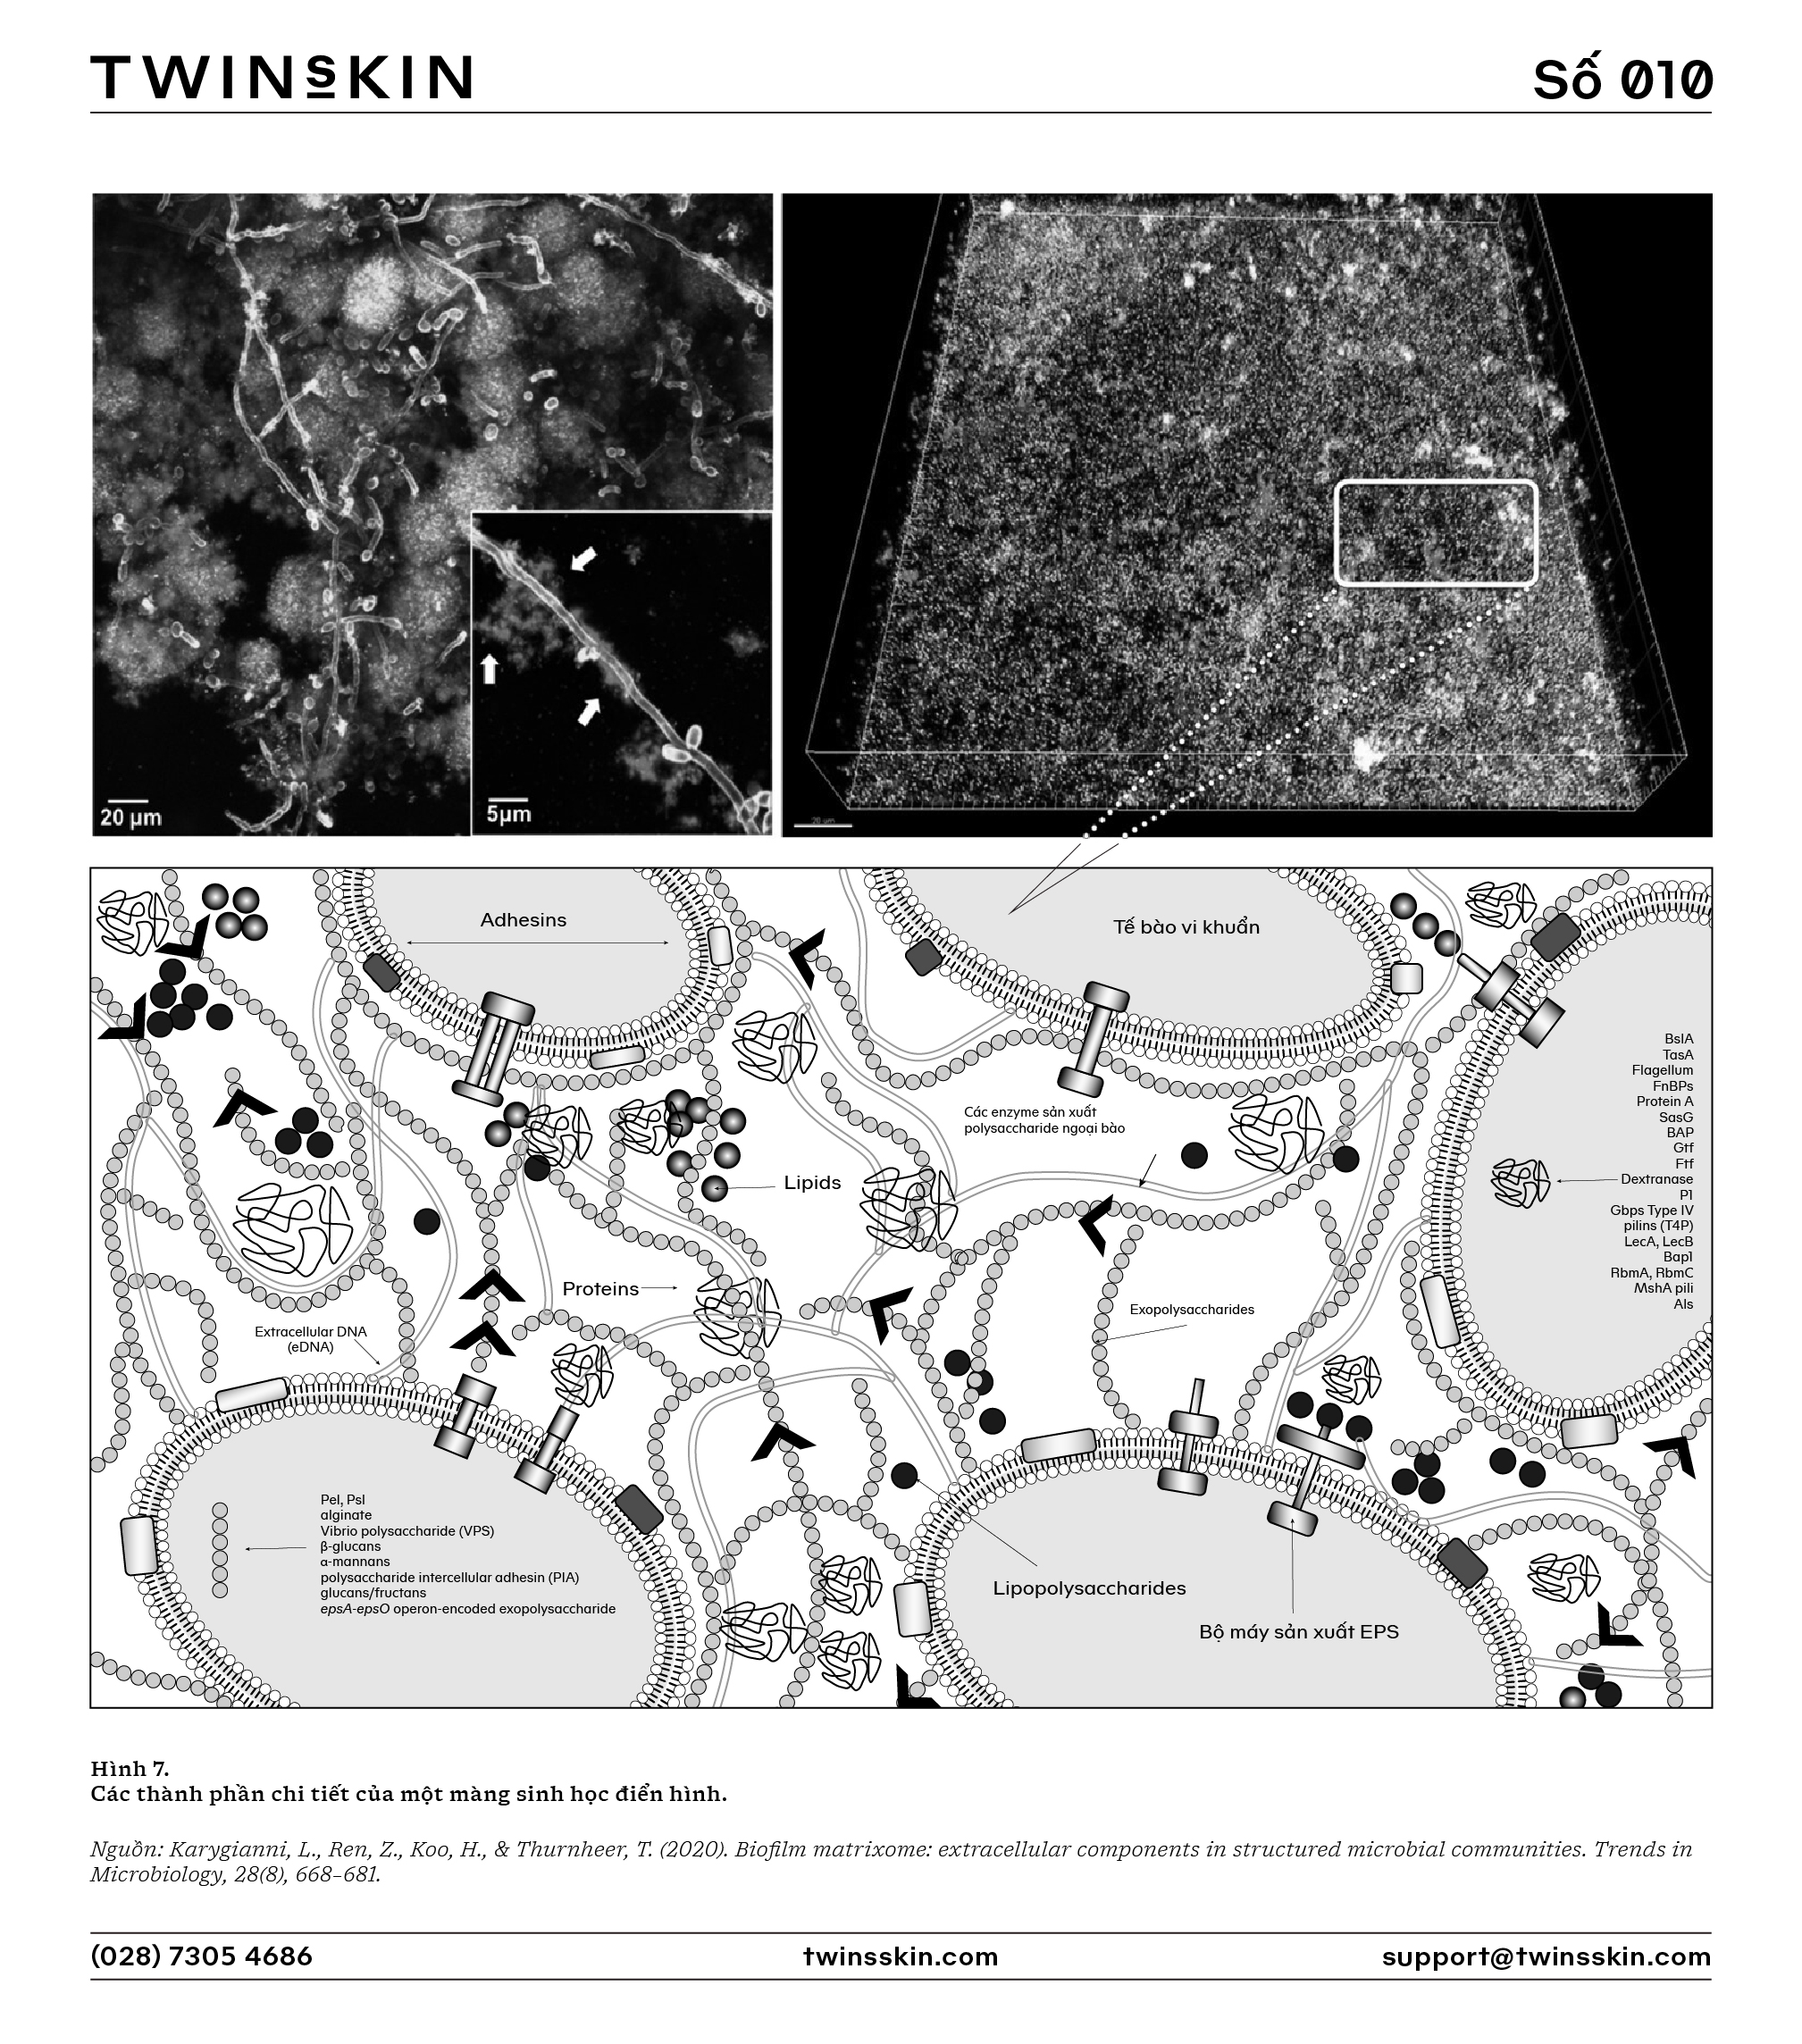
Các thành phần của một màng sinh học điển hình gồm có:
a. Lớp chất nền ngoại bào (extracellular polymeric substances, EPS) – Thành phần nền tảng
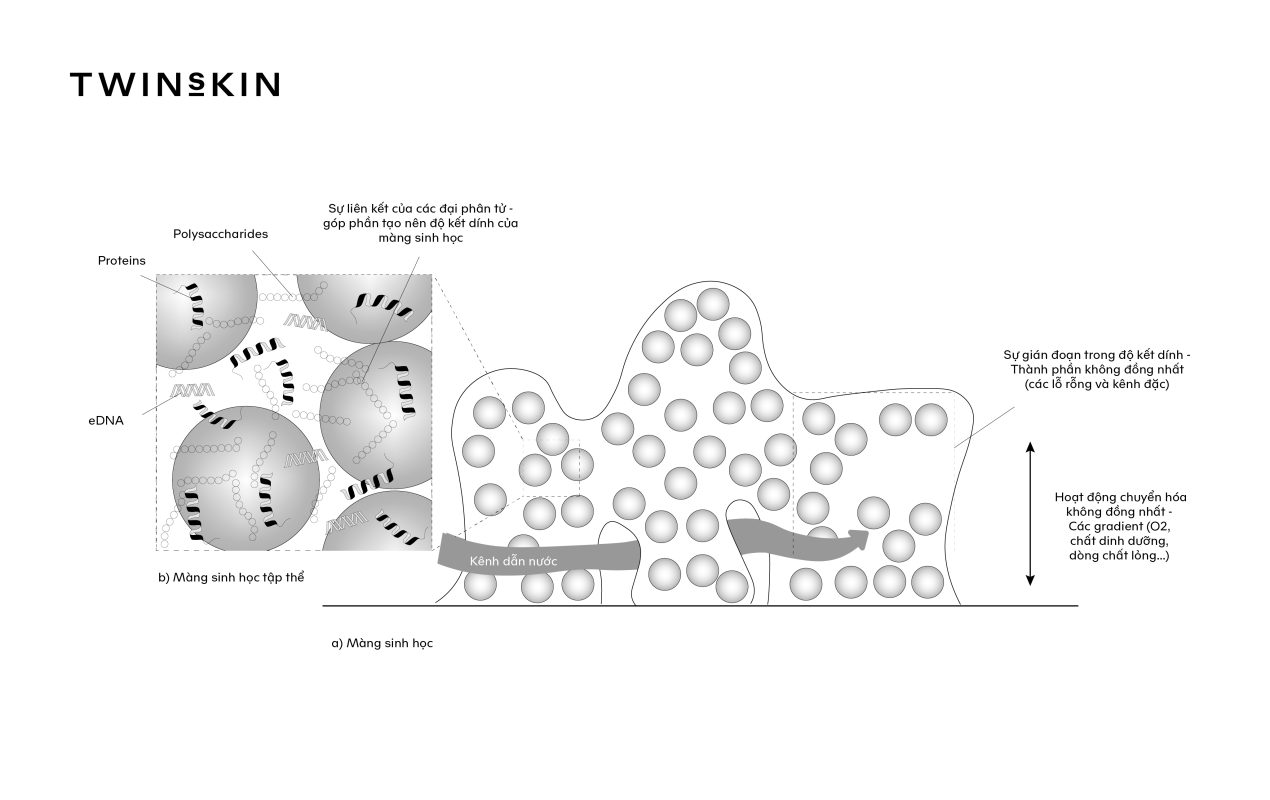
Đây là yếu tố trung tâm giúp định hình cấu trúc và chức năng của màng sinh học. EPS gồm hỗn hợp nhiều loại đại phân tử, nổi bật nhất với các loại đường đa ngoại bào ở dạng các sợi dài và có cấu trúc phức tạp, tiêu biểu như alginate (từ khuẩn Pseudomonas aeruginosa), pellicle polysaccharide (từ khuẩn Bacillus subtilis) và β-1,6-N-acetyl-D-glucosamine (từ khuẩn Staphylococcus epidermidis và Staphylococcus aureus).
Những loại đường đa này tạo ra một mạng lưới phức tạp để cố định vi khuẩn vào bề mặt và duy trì tính toàn vẹn của màng sinh học, đồng thời ngăn chặn sự xâm nhập của các chất ngoại lai, bao gồm cả kháng sinh, các chất khử trùng và các phân tử miễn dịch (như interferon hay kháng thể). Trong các bệnh da liễu như viêm da do tụ cầu vàng, EPS có thể làm giảm hiệu quả của kháng sinh β-lactam thông qua việc hạn chế tiếp cận của kháng sinh đến vi khuẩn mục tiêu.
Thành phần, cấu trúc và mật độ của EPS quyết định các tính chất vật lý của màng sinh học như độ nhớt, độ đàn hồi, độ xốp và khả năng giữ nước. Những tính chất này ảnh hưởng trực tiếp đến sự vận chuyển chất dinh dưỡng, oxy và các phân tử tín hiệu trong màng sinh học, từ đó ảnh hưởng đến hoạt động trao đổi chất và giao tiếp giữa các tế bào vi khuẩn. Thành phần và cấu trúc của EPS rất đa dạng và phụ thuộc vào loài vi khuẩn, điều kiện môi trường và giai đoạn phát triển của màng sinh học.
Một chức năng quan trọng khác của EPS chính tạo ra các vi môi trường khác nhau trong màng sinh học, với sự chênh lệch về nồng độ oxy, chất dinh dưỡng và pH. Điều này thúc đẩy sự đa dạng về mặt trao đổi chất và sự phân hóa chức năng của các nhóm vi sinh trong màng sinh học, như thể đang tạo nên một “thể sống” lớn hơn và thống nhất hơn.
b. Các phân tử DNA ngoại bào
Một thành phần quan trọng khác của màng sinh học chính là các DNA ngoại bào (extracellular DNA, eDNA), có nguồn gốc từ quá trình tự hủy của một phần vi khuẩn trong màng. eDNA không chỉ cung cấp sự ổn định cấu trúc mà còn đóng vai trò như một “bộ nhớ di truyền cộng đồng,” cho phép trao đổi vật liệu di truyền qua cơ chế chuyển gen ngang (horizontal gene transfer, HGT – tức là vi khuẩn này “hấp thụ” gen của vi khuẩn khác mà không cần thông qua di truyền hay giao phối).
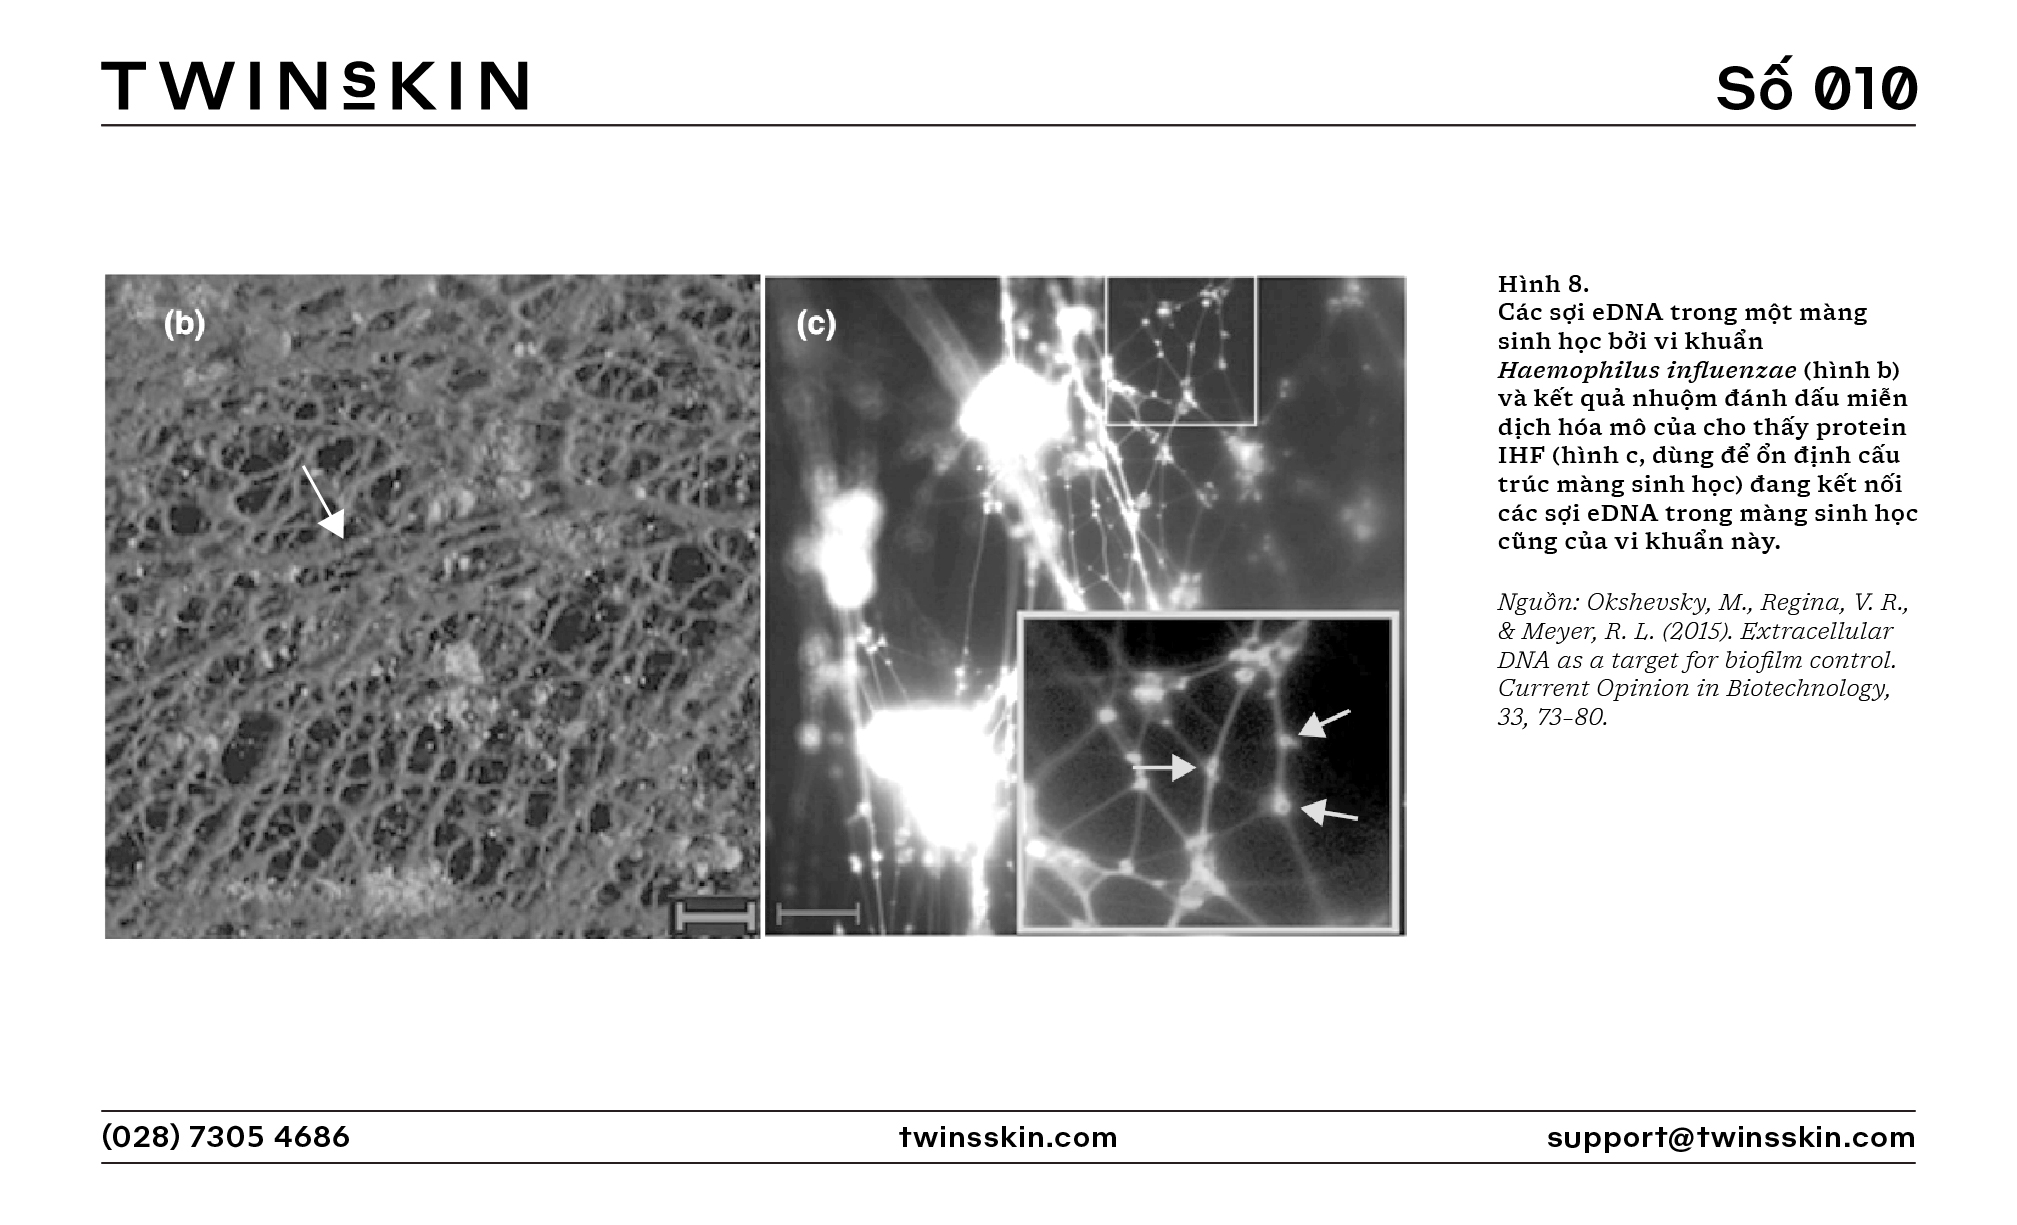
Ngoài chức năng liên quan đến gen và di truyền, eDNA cũng là một thành phần khá thú vị và đáng để bàn tới trong câu chuyện về màng sinh học. Sự hiện diện của eDNA giúp vi khuẩn chống lại áp lực oxy hóa và tạo điều kiện để hình thành các khu vực thiếu oxy (hypoxic) trong màng.
Các khu vực thiếu oxy này tạo điều kiện thuận lợi cho sự phát triển của các vi khuẩn kỵ khí (anaerobic) hoặc vi khuẩn hiếu khí tùy nghi (facultative anaerobic), là những vi khuẩn có thể tồn tại và phát triển trong điều kiện thiếu oxy. Điều này góp phần tạo nên sự đa dạng vi sinh trong màng sinh học.
Các loại khuẩn kỵ khí có thể gặp trên da là Finegoldia magna, Peptoniphilus asaccharolyticus, Anaerococcus prevotii, Clostridium perfringens, Bacteroides fragilis, Actinomyces israelii… và đặc biệt là Cutibacterium acnes – loại vi khuẩn kị khí điển hình gây mụn trứng cá.
eDNA có thể “bắt” oxy thông qua các cơ chế thú vị như:
- eDNA hoạt động như một “tấm khiên”: eDNA có khả năng bị oxy hoá và trung hoà với các gốc tự do (là những phân tử không ổn định gây hại cho tế bào thông qua quá trình oxy hóa). Bằng cách đứng ra “làm bia đỡ đạn”, sự phân bố của các eDNA bên ngoài màng sinh học giúp bảo vệ vi khuẩn bên trong khỏi các gốc tự do trong môi trường và tác hại của áp lực oxy hóa.
- eDNA tương tác tĩnh điện và liên kết hidro với oxy: Tuy bề ngoài trung tính, hai nguyên tử trong phân tử oxy lại không hoàn toàn cân bằng trong việc chia sẻ điện tích. Điều này tạo ra một lưỡng cực điện nhẹ, như thể một đầu phân tử hơi mang tính âm và đầu kia có chút tính dương hơn.
Khi oxy gặp eDNA, một phân tử giàu điện tích âm rõ rệt, dường như một mối liên kết vô hình lập tức xuất hiện. Lực hút tĩnh điện giữa điện tích âm của eDNA và đầu điện tích dương của oxy giống như nam châm trái dấu. Thế là, nó bị “giữ chân” ngay trên bề mặt của eDNA.
Chưa hết, eDNA còn có thêm một “mẹo” để níu giữ oxy. Trong cấu trúc của mình, eDNA sở hữu các nhóm hydroxyl (-OH) nằm trên khung đường (chính là “xương sống” của phân tử eDNA), những nhóm này sẵn sàng vươn ra để tạo nên những liên kết hydro yếu với oxy. Những liên kết nhỏ bé nhưng đủ mạnh để giữ oxy lại lâu hơn, giống như những cái nắm tay thân thiện trong thế giới phân tử. Thế là, oxy, dù thích tự do bay nhảy, cũng khó mà rời xa sức hấp dẫn từ eDNA.
- Cấu trúc bậc cao của eDNA tăng “bắt” oxy: Trong màng sinh học, eDNA không chỉ tồn tại dưới dạng chuỗi đơn hoặc chuỗi đôi đơn giản. Nó có thể tự lắp ráp thành các cấu trúc bậc cao phức tạp hơn như lưới, sợi hoặc các cấu trúc ba chiều khác. Các cấu trúc phức tạp này có thể tạo ra các khe hở, các “hốc” hoặc các “bẫy” có kích thước và hình dạng phù hợp, diện tích bề mặt lớn hơn để giữ các phân tử oxy hòa tan.
- eDNA có thể liên kết với các ion kim loại: eDNA có khả năng liên kết với các ion kim loại hóa trị hai (như Mg2+, Ca2+, Fe2+…) thường hiện diện trong môi trường và trong màng sinh học. Các ion kim loại này có thể hoạt động như những “cầu nối” giữa eDNA và oxy, cũng như có thể tham gia vào các phản ứng oxy hóa khử, tiêu thụ oxy hòa tan trong môi trường.
c. Các phân tử tín hiệu
Giống như một hợp tác xã của con người, nơi các hộ gia đình phối hợp nhịp nhàng, phân chia công việc, sản phẩm và lợi ích, vi khuẩn trong “thành phố” biofilm cũng tương tác và cộng sinh lẫn nhau. Nếu như sự vận hành của hợp tác xã dựa vào mạng lưới thông tin từ trưởng ban, trưởng thôn, người đưa tin đến hệ thống điện đài, thì sự hình thành, phát triển và duy trì của màng sinh học lại phụ thuộc vào một hệ thống liên lạc tinh vi hơn nhiều: Đó là các tín hiệu phân tử.
Những tín hiệu này, bao gồm tín hiệu nội bào (bên trong tế bào), tín hiệu liên bào (giữa các tế bào) và tín hiệu từ môi trường, được điều chỉnh cực kỳ chính xác ở cấp độ vi tế. Chúng hoạt động như những “mệnh lệnh” vô hình, giúp vi khuẩn phối hợp hành động một cách đồng bộ, thích nghi linh hoạt với môi trường xung quanh và đảm bảo sự tồn tại bền vững của cả cộng đồng biofilm.
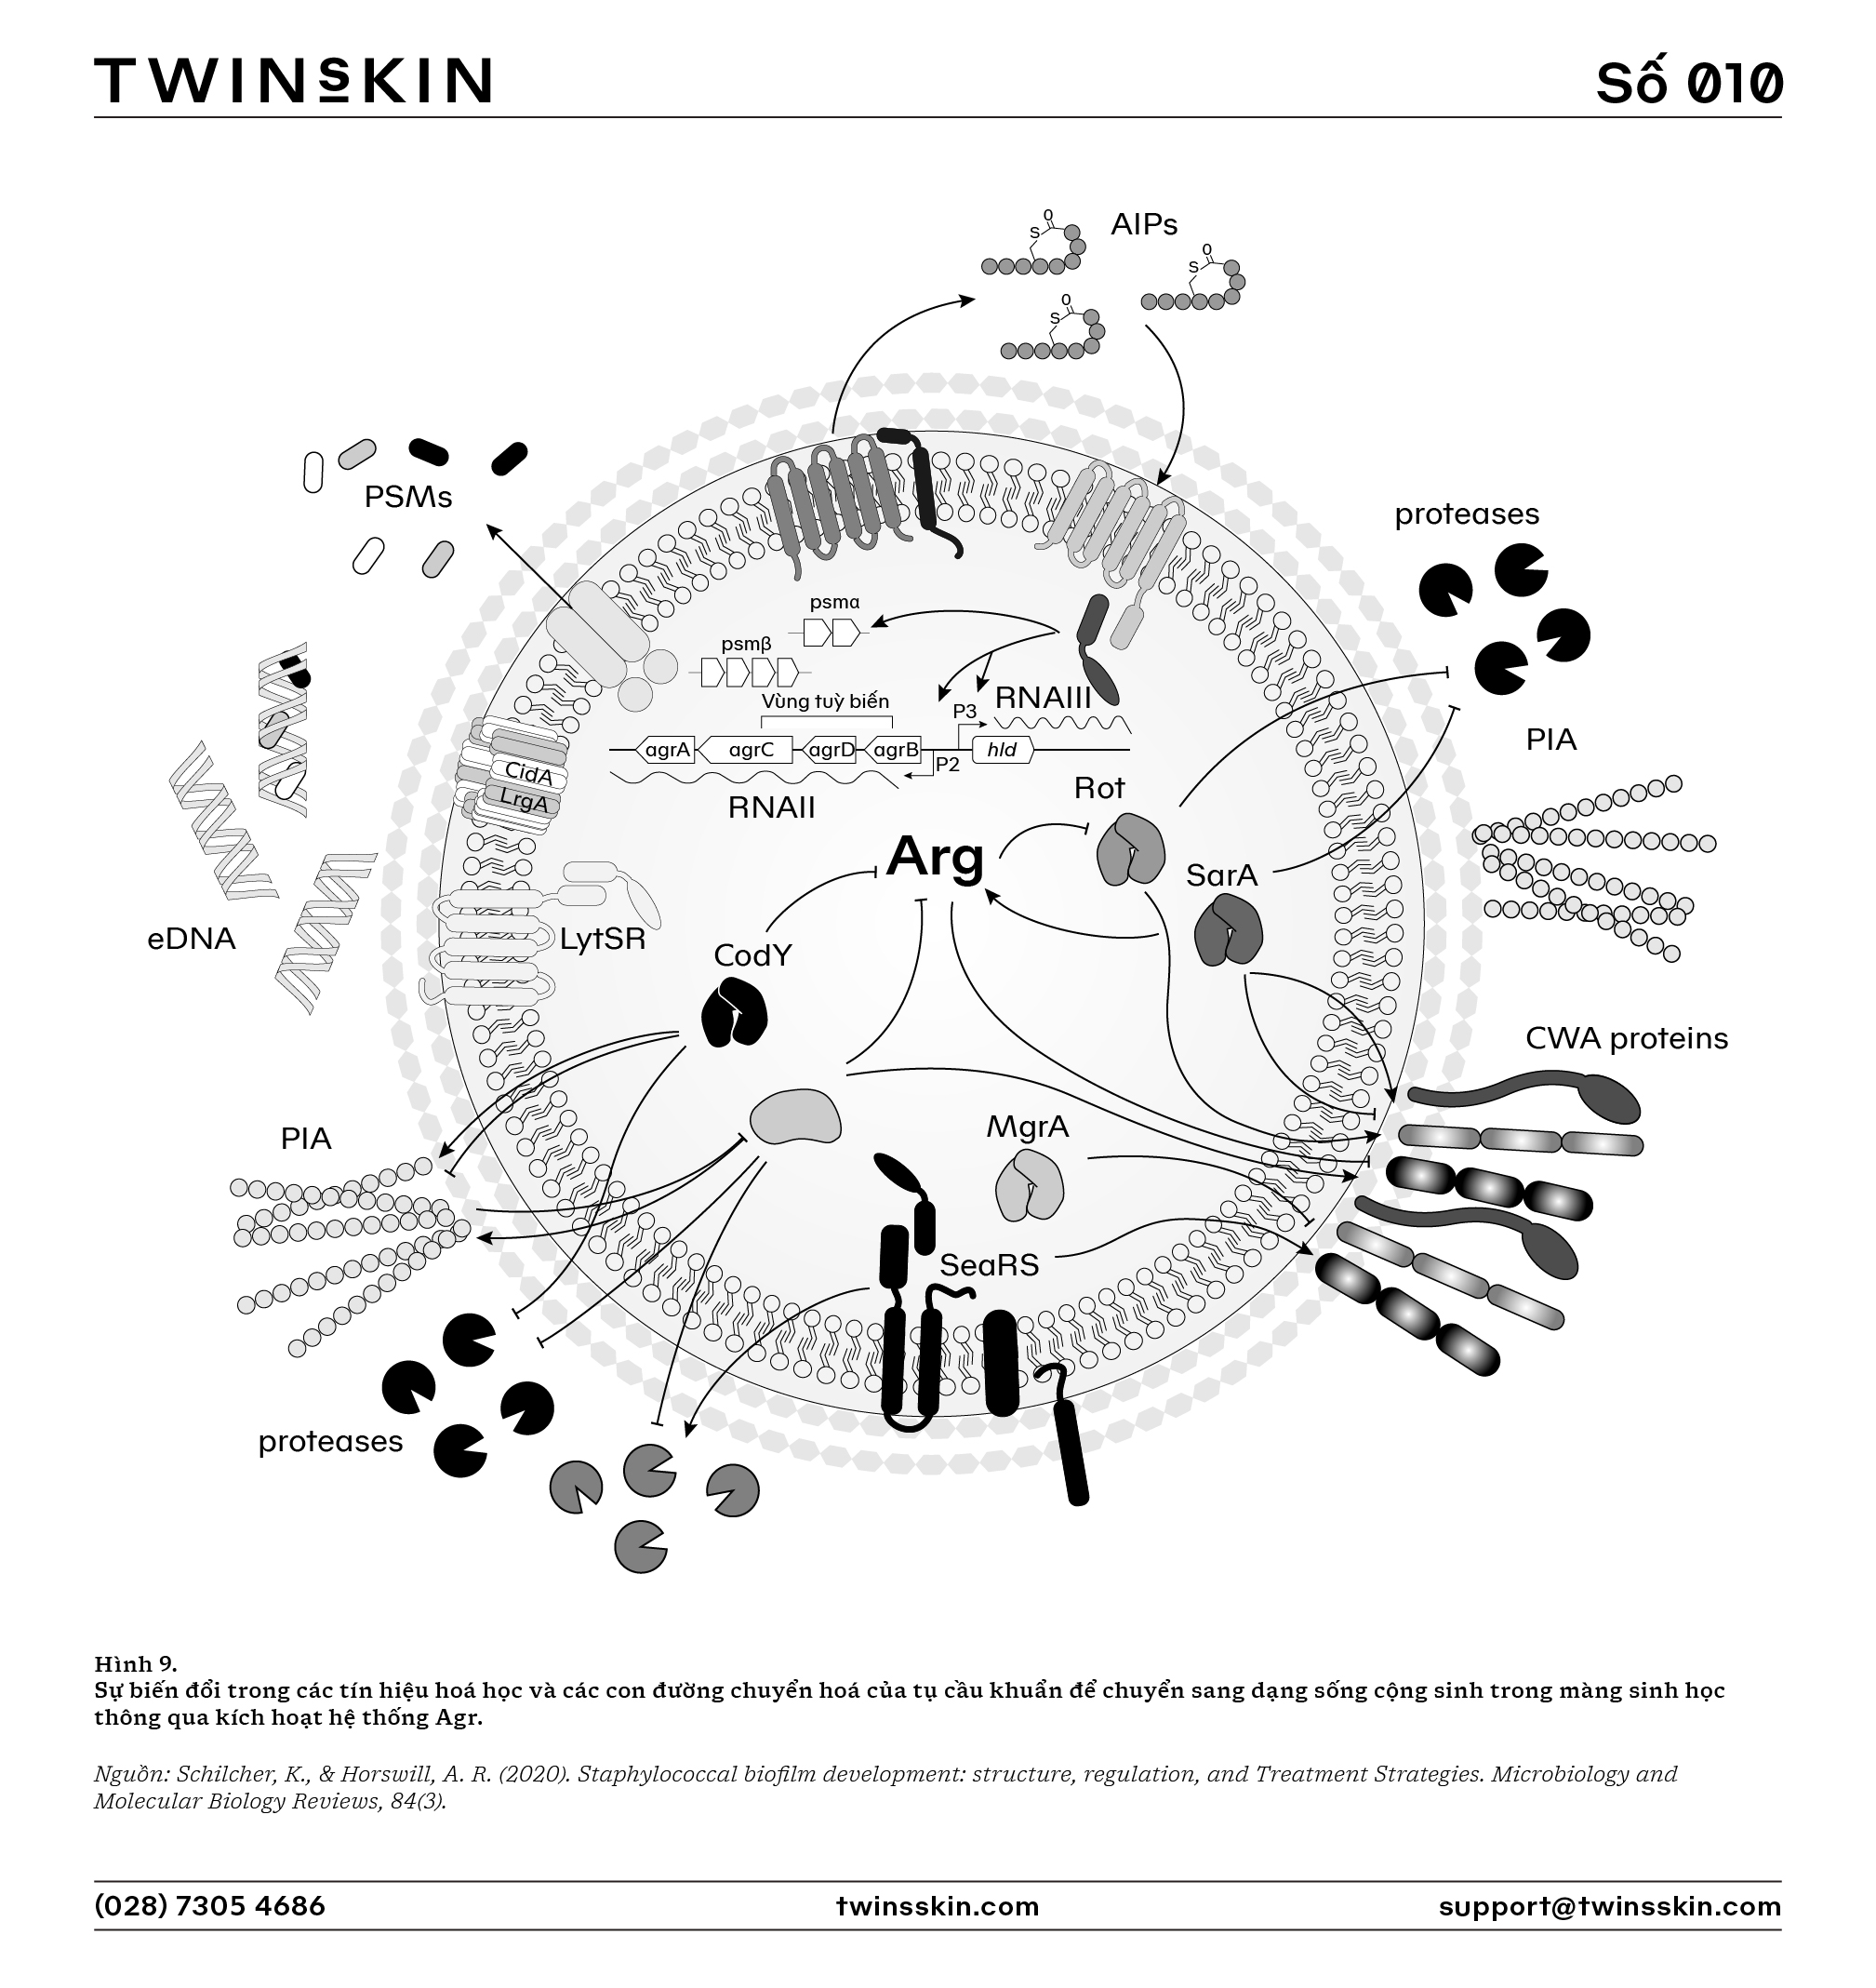
Nói cách khác, chính sự giao tiếp phân tử tinh vi này là nền tảng cho sự vận hành trơn tru của “thành phố vi khuẩn” và tạo nên sức mạnh vượt trội của màng sinh học so với các tế bào vi khuẩn sống đơn lẻ.
- Tín hiệu môi trường (Environmental Signaling): Vi khuẩn thường thích sống đơn độc, tự do, tự tại, không phải giành giật thức ăn với ai hết. Các tín hiệu môi trường chính là một trong những yếu tố giúp vi khuẩn xác định xem môi trường có gì bất ổn quá hay không, khi nào thì cần “liên minh” lại.
+ Tín hiệu oxy và stress oxy hóa (như sự chênh lệch nồng độ oxy, hệ thống FNR và SoxRS, OxyR).
+ Tín hiệu về dinh dưỡng và pH (nhờ các hệ thống cảm biến như two-component systems (TCS). VD: Hệ thống PhoP/PhoQ).
+ Sự xuất hiện của các ion kim loại (như Fe2+, Zn2+ thông qua điều hòa hệ thống iron-sensing (Fur protein) hoặc phân tử có khả năng tạo phức với kim loại như siderophores). - Tín hiệu nội bào (Intracellular Signaling): Các tín hiệu nội bào đóng vai trò “công tắc”, giúp “gạt” trạng thái sống của vi khuẩn từ đơn độc sang cộng sinh trong màng sinh học. VD: c-di-GMP (cyclic di-GMP), cAMP (cyclic AMP), các nucleotide thứ cấp (ppGpp, pppGpp).
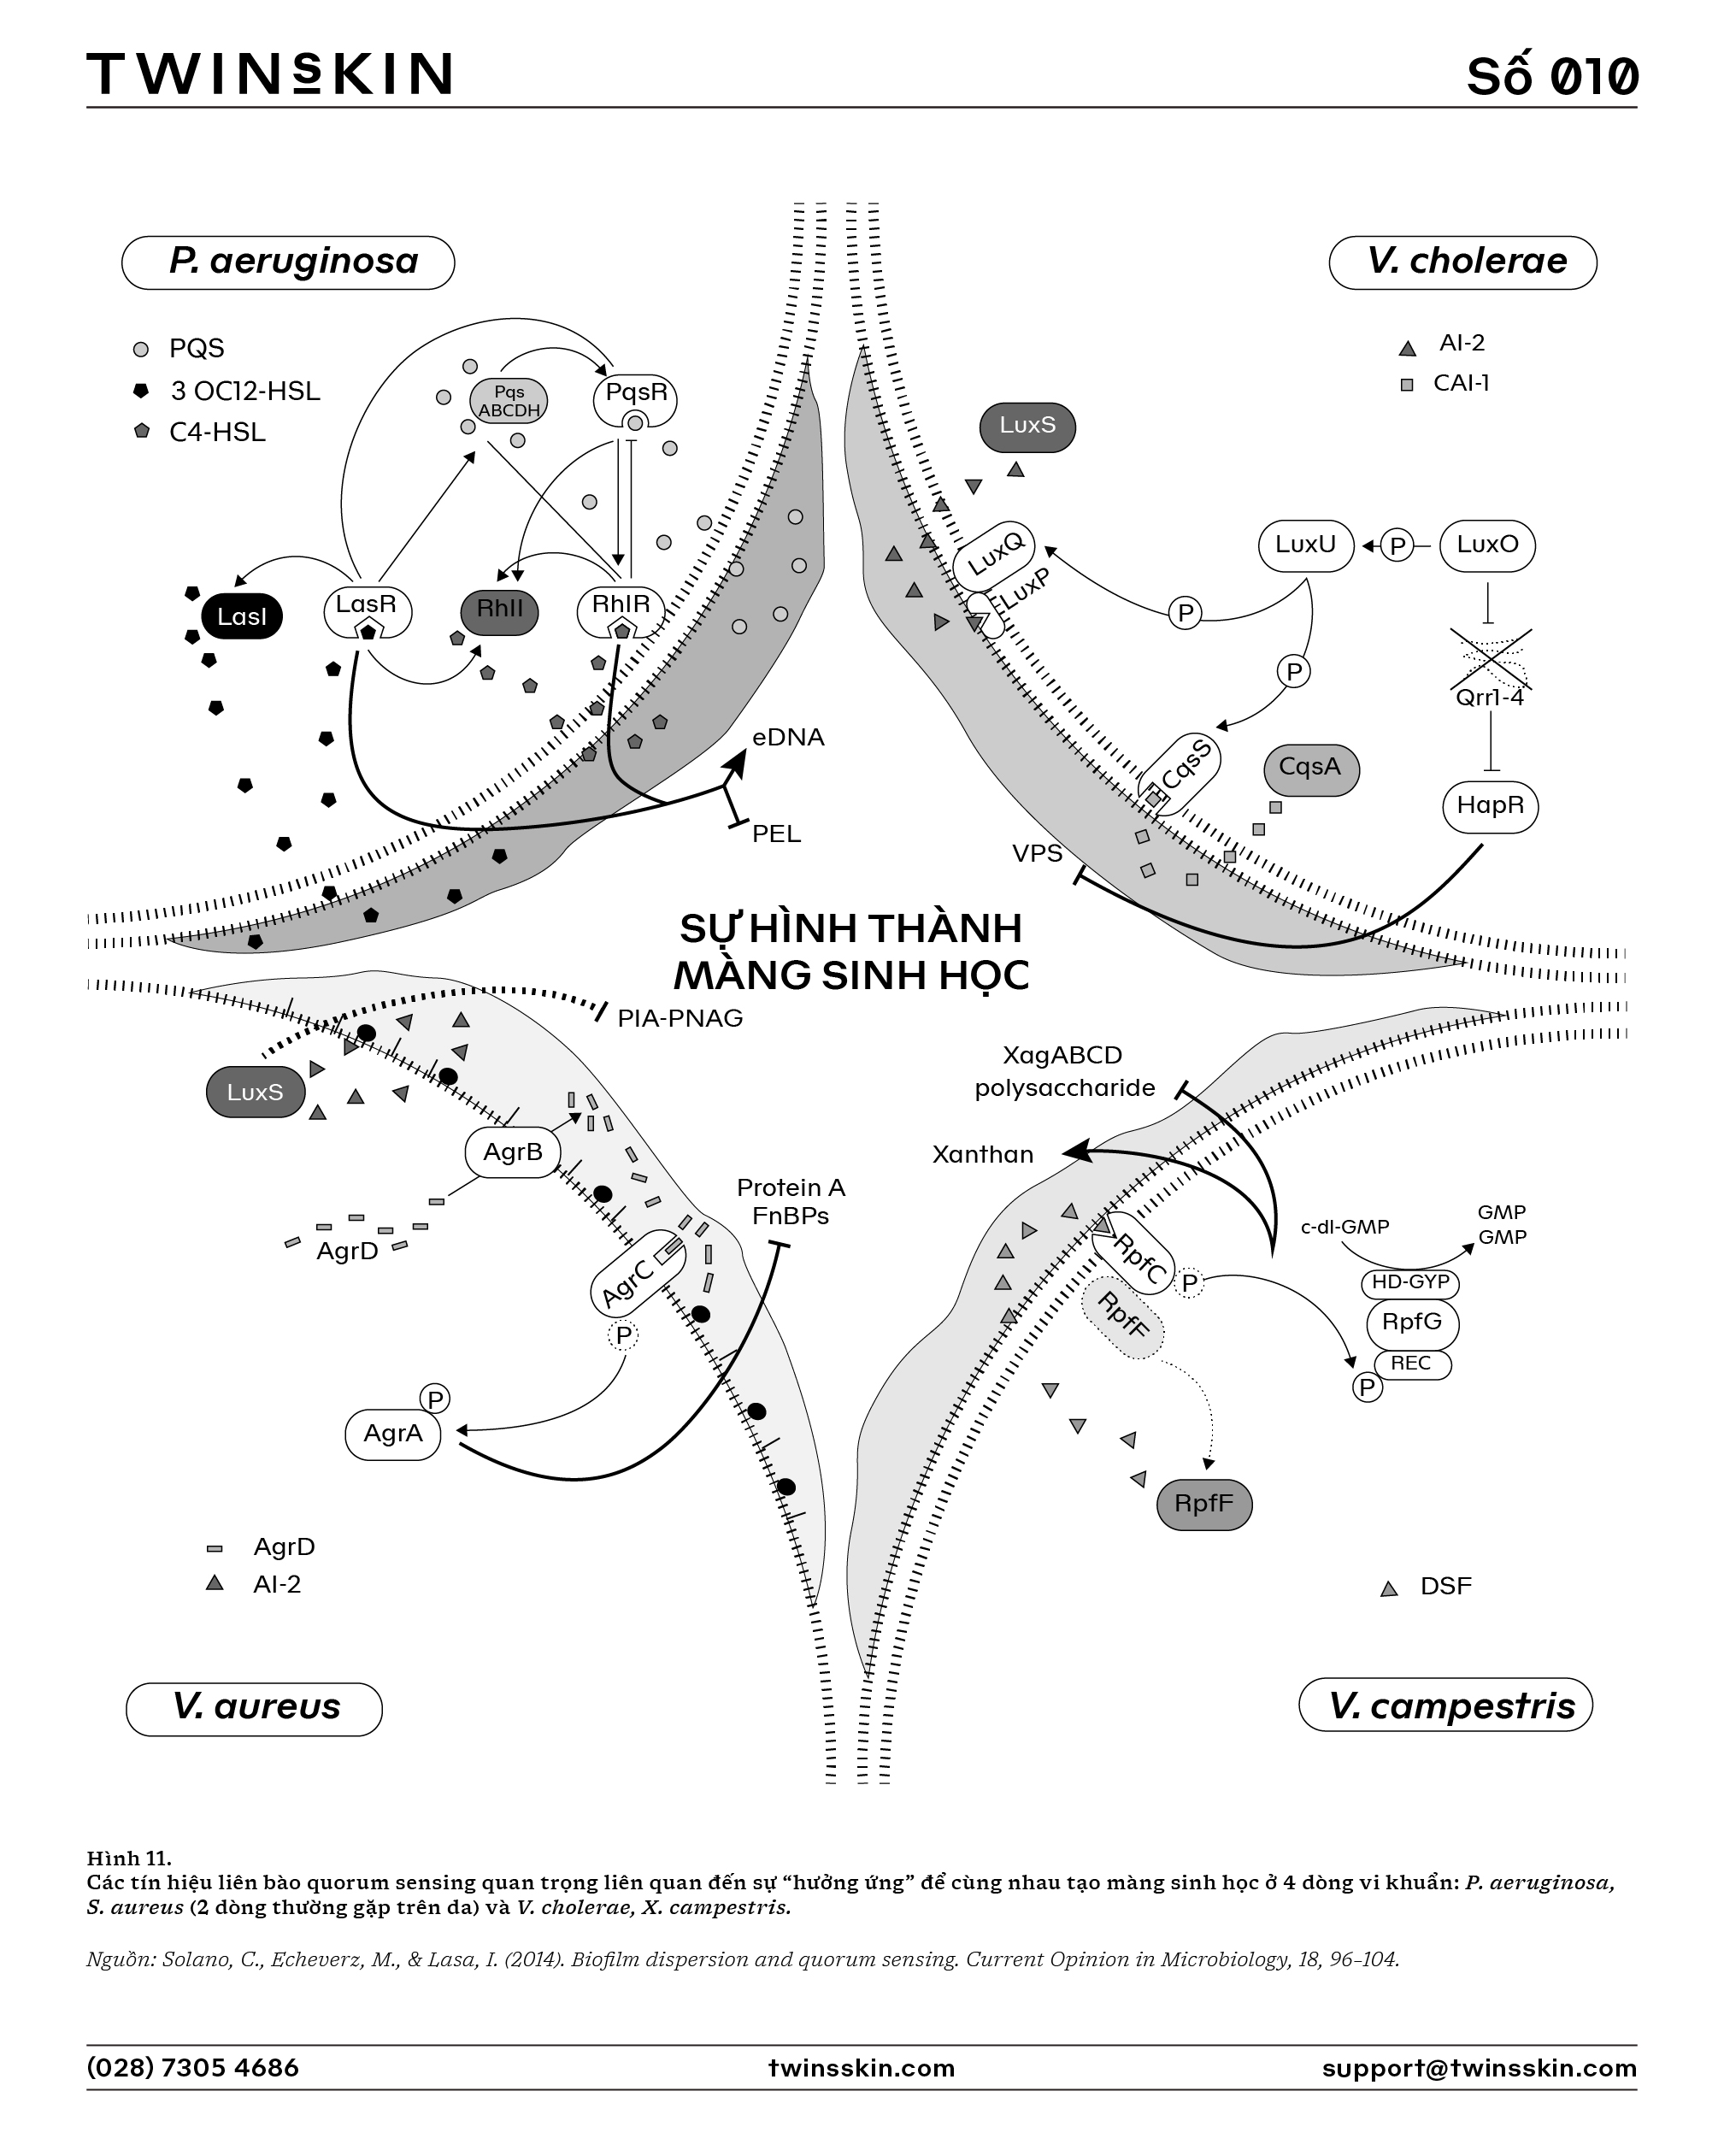
- Tín hiệu liên bào (Intercellular Signaling): Quorum Sensing (QS) là một nhóm cơ chế lớn và quan trọng trong việc điều hòa cộng đồng vi khuẩn trong màng sinh học. QS sử dụng các phân tử tín hiệu nhỏ (autoinducers – AIs) để cảm nhận mật độ tế bào và điều chỉnh biểu hiện gen (như các tín hiệu N-acyl homoserine lactones (AHLs), oligopeptide, autoinducer-2 (AI-2) hay DSF (Diffusible Signal Factor). VD: Trong nhiễm trùng da do Pseudomonas aeruginosa, QS không chỉ kích hoạt sản xuất EPS mà còn điều hòa gene mã hóa enzyme phân hủy kháng sinh như beta-lactamase, tạo ra môi trường kháng thuốc mạnh mẽ.
- Tín hiệu phá vỡ và phân tán (Dispersal Signaling): Hợp rồi cũng sẽ đến lúc phải tan, các tín hiệu phá vỡ và phân tán sẽ giúp giảm độ bền của màng sinh học và kích hoạt sự phân tán của các cá thể vi khuẩn trong màng. Các tín hiệu này cũng đóng vai trò quan trọng của sự “lây lan” màng sinh học, khi màng và khuẩn trên màng bị tách ra một phần để đi “đóng chiếm” các địa điểm khác.
+ Sự gia tăng các enzyme phá hủy EPS (như DNase, protease, và alginate lyase).
+ Giảm nồng độ c-di-GMP gây giảm tạo màng mới.
+ Sự xuất hiện của các tín hiệu phân tán nội bào (như nitric oxide – NO).
Vai trò cụ thể ở từng giai đoạn trong quá trình hình thành màng sinh học của các tín hiệu phân tử kể trên sẽ được Twins thảo luận thêm ở ngay dưới đây.
4. Lời kêu gọi từ “vùng đất hứa” – Cơ chế kích hoạt hình thành và phát triển của màng sinh học
Sự tồn tại của màng sinh học không phải là hiện tượng mới mẻ trong sinh học phân tử và vi sinh. Tuy nhiên, với tốc độ gia tăng kháng kháng sinh trong các bệnh lý da liễu, đã đến lúc phải phân tích sâu hơn về cách mà màng sinh học không chỉ bảo vệ vi khuẩn mà còn làm suy yếu hiệu quả của các phương pháp điều trị.
Câu chuyện bắt đầu từ những tế bào vi khuẩn lang thang, trôi nổi trong môi trường, như những kẻ du mục đơn độc tìm kiếm “vùng đất hứa” để định cư. Sự hình thành màng sinh học được khởi xướng bởi một loạt các “tín hiệu” phân tử tinh vi, hoạt động như những lời kêu gọi hấp dẫn, thúc đẩy vi khuẩn thay đổi hành vi. Những tín hiệu này có thể xuất phát từ:
- Môi trường: Các yếu tố môi trường như sự hiện diện của bề mặt bám dính, nồng độ chất dinh dưỡng, nhiệt độ, pH, áp suất thẩm thấu đóng vai trò như những “biển chỉ đường” đầu tiên.
– Khi nồng độ chất dinh dưỡng trở nên khan hiếm, một số vi khuẩn sẽ nhận được tín hiệu “cảnh báo” thông qua các phân tử như cAMP (cyclic AMP). cAMP liên quan đến hệ thống tín hiệu cAMP-CRP, giúp điều hòa các hoạt động trao đổi chất và thích nghi của vi khuẩn trong điều kiện thiếu dinh dưỡng, đồng thời tác động đến sự hình thành màng sinh học.
– Bên cạnh đó, các nucleotide thứ cấp (ppGpp, pppGpp) tham gia vào phản ứng tiết kiệm (stringent response), điều chỉnh khả năng sinh tồn của vi khuẩn trong điều kiện căng thẳng như thiếu dinh dưỡng hoặc kháng sinh, cũng góp phần thúc đẩy quá trình chuyển đổi sang lối sống màng sinh học. - Nội tại tế bào: Bên trong mỗi tế bào vi khuẩn là một bộ máy di truyền phức tạp. Khi gặp các điều kiện thích hợp, các gen liên quan đến sự hình thành màng sinh học sẽ được kích hoạt. Điều này thường liên quan đến các hệ thống điều hòa phiên mã phức tạp.
– Nổi bật trong số đó là c-di-GMP (cyclic di-GMP) – một tín hiệu vòng nội bào chủ đạo trong vi khuẩn Gram âm. Nồng độ c-di-GMP cao thúc đẩy quá trình chuyển đổi từ trạng thái sống tự do (planktonic) sang trạng thái sống cộng sinh, cố định (sessile) trong màng sinh học.
c-di-GMP điều hòa biểu hiện các gene liên quan đến polysaccharide ngoại bào, gây dày thêm lớp màng sinh học bên ngoài (VD: gene psl, pel trong khuẩn Pseudomonas aeruginosa), protein bám dính bề mặt và enzyme tham gia vào quá trình tạo màng sinh học. - Quorum Sensing (QS) – các tín hiệu liên bào: Đây là một cơ chế giao tiếp tinh vi giữa các vi khuẩn, cho phép chúng “cảm nhận” được mật độ quần thể của mình. Vi khuẩn tiết ra các phân tử tín hiệu nhỏ. Khi mật độ vi khuẩn đạt đến một ngưỡng nhất định, nồng độ các tín hiệu này tích tụ đủ cao để kích hoạt các thụ thể tương ứng trên bề mặt tế bào, dẫn đến sự thay đổi biểu hiện gen hàng loạt để đáp ứng với đời sống cộng sinh trong màng sinh học. Các phân tử tín hiệu QS quan trọng bao gồm:
– N-acyl homoserine lactones (AHLs): Điều hòa nhiều chức năng sinh lý, bao gồm cả sự hình thành màng sinh học, sử dụng trong các hệ thống như LuxI/LuxR, LasI/LasR ở vi khuẩn Gram âm.
– Oligopeptide: Đóng vai trò quan trọng trong việc điều hòa mật độ và hình thành màng sinh học, sử dụng trong hệ thống Agr (một cơ chế để cảm biến mật độ “hàng xóm” xung quanh, chỉ cần đủ đông thì sẽ bắt đầu tạo màng) ở vi khuẩn Gram dương.
– Autoinducer-2 (AI-2): Giúp điều hòa sự hợp tác giữa các loài vi khuẩn khác nhau trong màng sinh học, đặc biệt quan trọng trong việc hình thành các màng sinh học hỗn hợp giữa nhiều loại khuẩn khác nhau bền vững hơn. Được tổng hợp bởi enzyme LuxS, AI-2 là một phân tử tín hiệu phổ quát, có mặt ở cả vi khuẩn Gram âm và Gram dương.
– DSF (Diffusible Signal Factor): Nhóm tín hiệu lipid nhỏ, ví dụ như cis-11-methyl-2-dodecenoic acid, tham gia điều chỉnh sự phân tán của màng sinh học, giúp vi khuẩn quay lại trạng thái sống tự do khi điều kiện môi trường thay đổi. - Các yếu tố khác:
– Tín hiệu oxy và stress oxy hóa: Màng sinh học có sự phân tầng oxy rõ rệt, tạo ra các vùng hiếu khí, hiếu khí tùy nghi (tức là lúc hiếu khí, lúc thì không) và kỵ khí. Vi khuẩn sử dụng các hệ thống cảm biến oxy như:
+ FNR (Fumarate and Nitrate Reduction regulator) để điều chỉnh chuyển hóa kỵ khí, cho phép vi khuẩn thích nghi với môi trường thiếu oxy, tạo lợi thế sinh tồn trong các điều kiện như ruột người hay trong nang lông bị bít tắc, nơi oxy rất hạn chế.
+ SoxRS, OxyR để điều chỉnh phản ứng chống oxy hóa, bảo vệ vi khuẩn khỏi stress oxy hóa trong các lớp sâu hơn của màng sinh học.
– Cảm biến dinh dưỡng và pH: Sự thay đổi nồng độ dinh dưỡng và pH được vi khuẩn cảm nhận thông qua các hệ thống cảm biến như two-component systems (TCS), bao gồm các cảm biến kinase (HisK) và protein điều hòa (RR). VD: Hệ thống PhoP/PhoQ giúp cảm nhận sự thiếu hụt của ion Ca2+/ Mg2+ để điều chỉnh biểu hiện gene trong môi trường thiếu dinh dưỡng, gây tăng tạo màng sinh học.
– Kim loại nặng và ion: Ion kim loại như Fe2+, Zn2+ ảnh hưởng đến cấu trúc màng sinh học thông qua điều hòa hệ thống iron-sensing (Fur protein) hoặc các phân tử có khả năng tạo phức với kim loại như siderophores. Siderophores giúp vi khuẩn thu nhận thêm sắt trong môi trường thiếu sắt, có vai trò quan trọng trong sự phát triển và phân hoá chức năng của vi khuẩn trong màng sinh học.
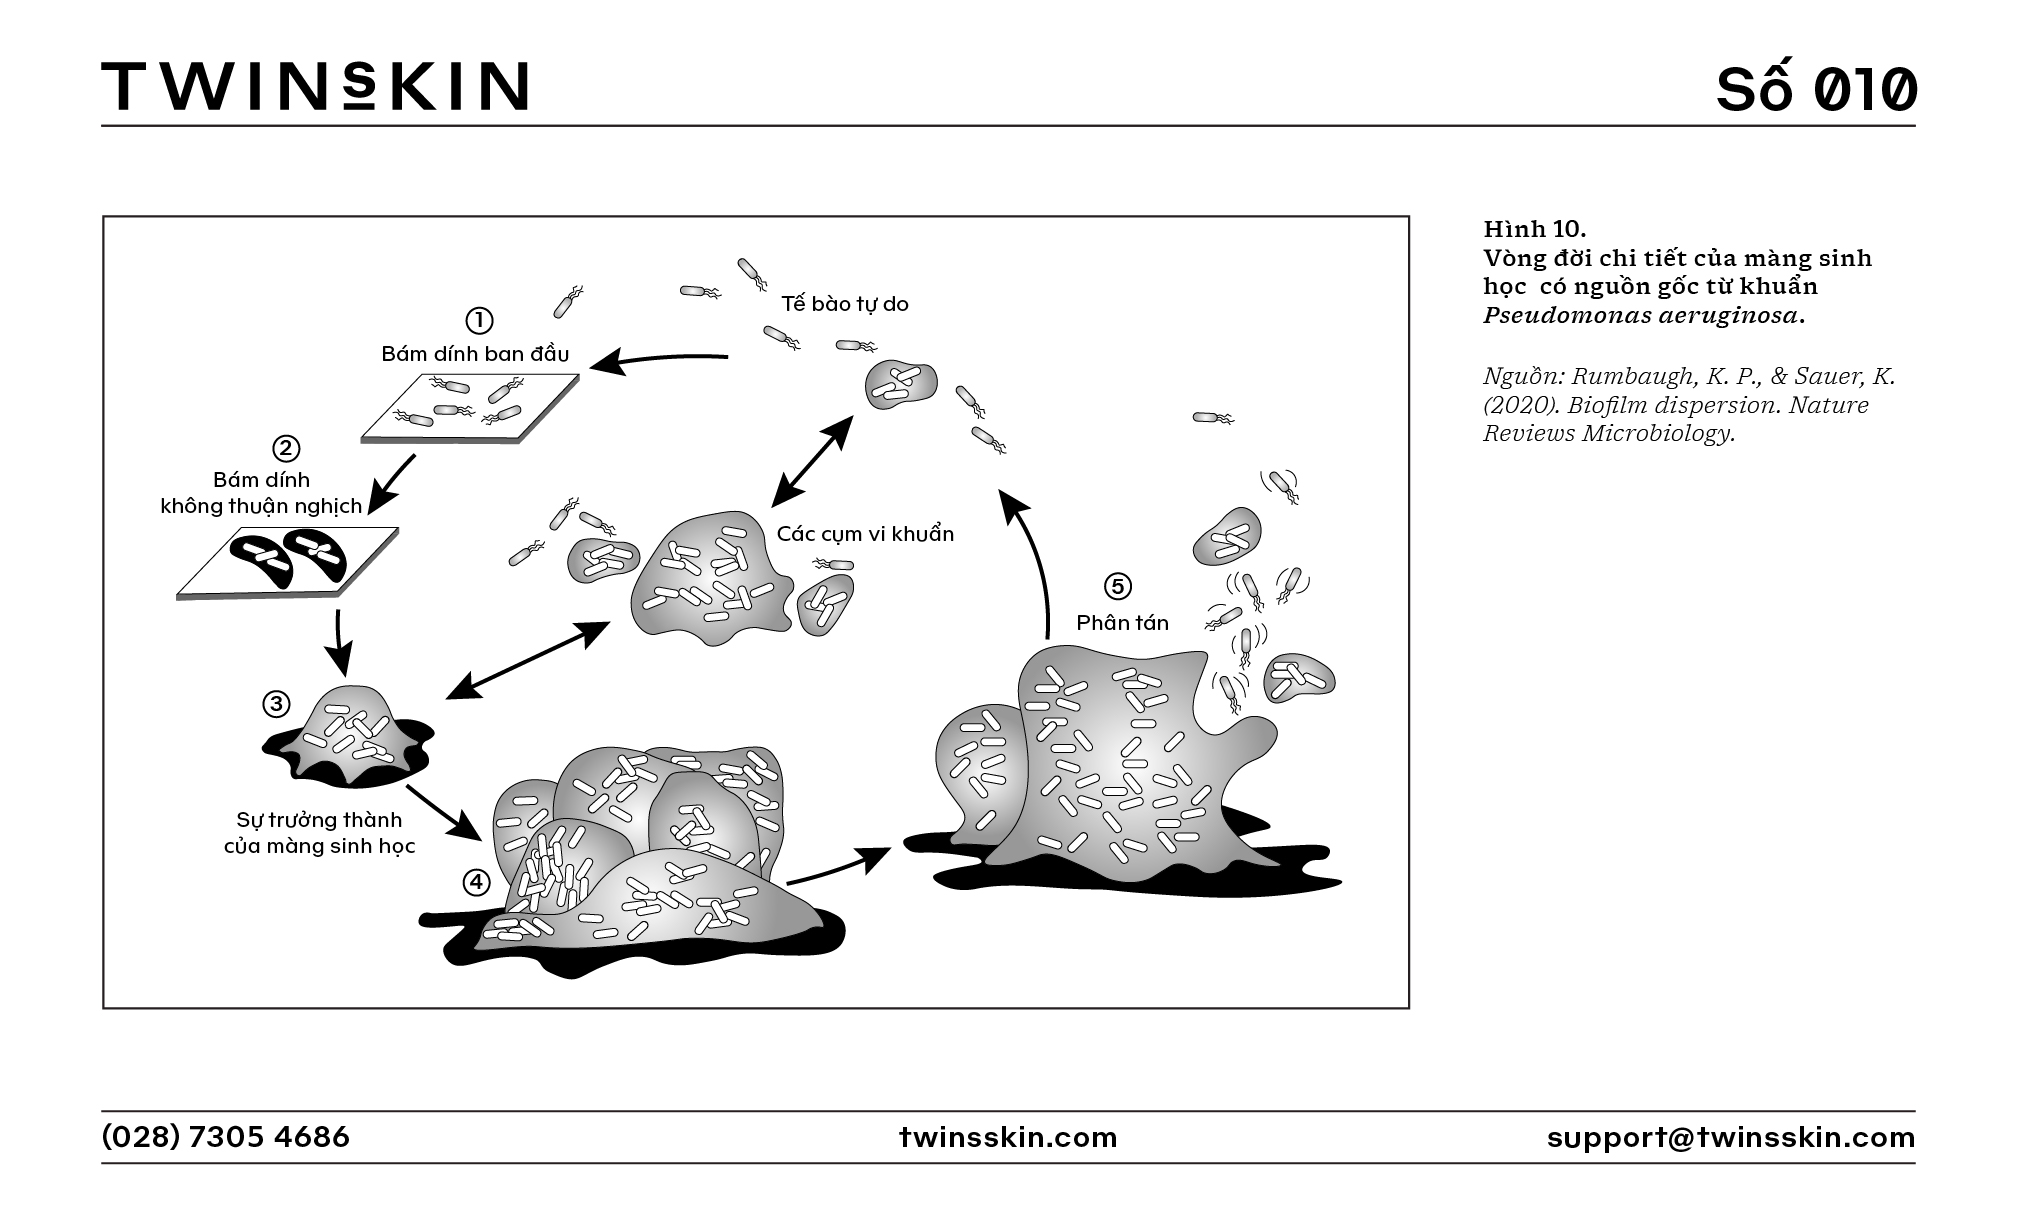
Chương 1: Khởi đầu nan – Giai đoạn bám dính ban đầu
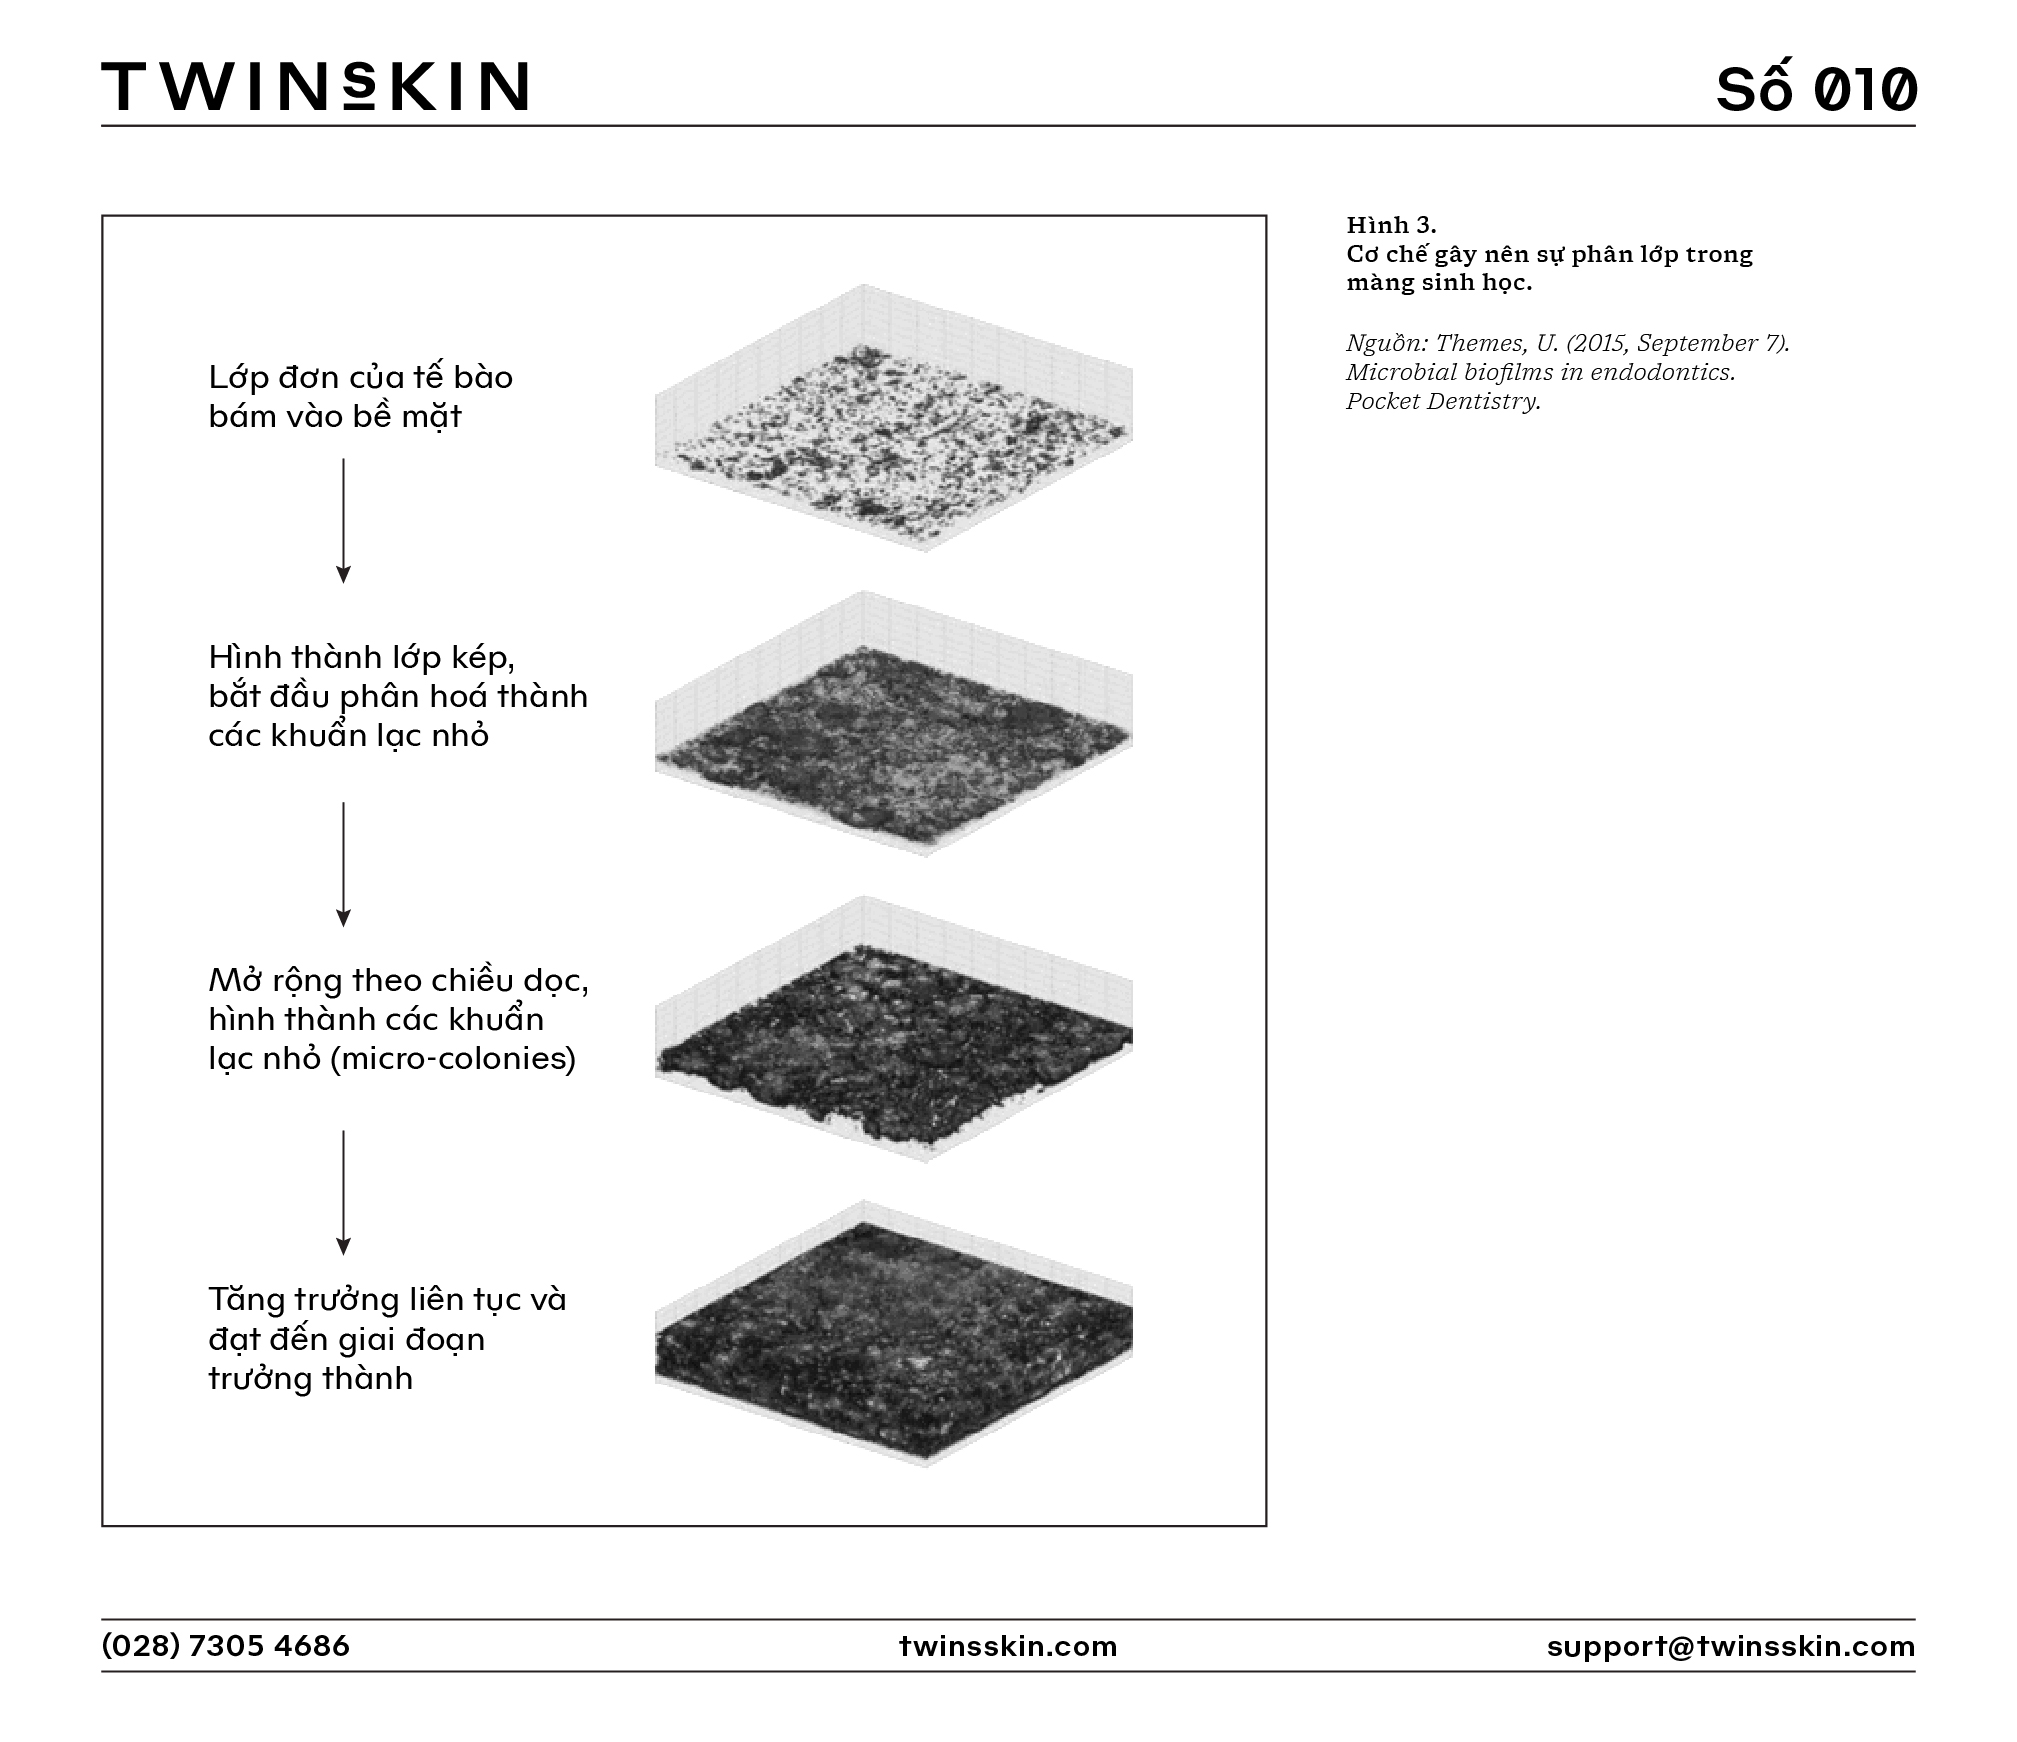
Nhận được tín hiệu, những vi khuẩn tiên phong bắt đầu cuộc hành trình bám dính vào bề mặt gần đó, như trong lòng ống dẫn nước, thành ruột già, niêm mạc hầu họng hay cả những chỗ lồi ra lõm vào trên da của chúng ta. Giai đoạn đầu tiên này, giống như việc đặt những viên gạch nền móng, diễn ra qua hai bước nhỏ:
- Bám dính thuận nghịch: Bám dính thuận nghịch giống như một người thử nắm tay vào cửa sổ kính trơn: ban đầu chỉ là chạm nhẹ để xem có giữ được không, nếu thấy đủ vững, họ mới bám chắc hơn. Vi khuẩn cũng vậy, khi bám vào bề mặt, chúng tạo các liên kết yếu (như van der Waals, tương tác kỵ nước hoặc tương tác tĩnh điện) để “thăm dò”, nếu môi trường thuận lợi, chúng sẽ chuyển sang giai đoạn bám dính chắc chắn hơn. Các cấu trúc bề mặt tế bào như pili, fimbriae và protein bám dính đóng vai trò như những “móc neo” tạm thời. Giai đoạn này giống như việc vi khuẩn “thăm dò” bề mặt, nếu điều kiện không thuận lợi, chúng có thể dễ dàng rời đi.
- Bám dính không thuận nghịch: Nếu điều kiện thích hợp, vi khuẩn sẽ chuyển sang giai đoạn bám dính không thuận nghịch, tức là bắt đầu trét “keo siêu dính” và neo bám lâu dài trên bề mặt đã chọn. Lúc này, các liên kết mạnh hơn được hình thành, chủ yếu thông qua các protein bám dính đặc hiệu (adhesin) trên bề mặt tế bào vi khuẩn và các thụ thể tương ứng trên bề mặt bám.
Quá trình này cũng liên quan đến sự biểu hiện của các gen mã hóa cho lớp chất nền ngoại bào để tạo nên màng sinh học – EPS, tạo ra lớp “keo sinh học” giúp vi khuẩn gắn chặt hơn.
Chương 2: Dựng xây tổ ấm – Giai đoạn phát triển và trưởng thành của màng sinh học
Một khi đã bám dính chắc chắn, vi khuẩn bắt đầu sinh sôi nảy nở, đồng thời tăng cường sản xuất EPS – “vật liệu xây dựng” chính của màng sinh học. EPS, với thành phần chủ yếu là polysaccharide, tạo thành một mạng lưới ngoại bào bao bọc lấy các tế bào vi khuẩn. Giai đoạn này diễn ra như sau:
- Hình thành các khuẩn lạc (microcolonies): Vi khuẩn tiếp tục phân chia và tập hợp lại thành các khuẩn lạc tức là những cụm tế bào nhỏ được bao bọc trong chất nền EPS.
- Trưởng thành: Các vi khuẩn lạc phát triển, hợp nhất và tạo thành cấu trúc màng sinh học ba chiều phức tạp với dạng khối có cả chiều dài, chiều rộng và chiều cao, chứ không chỉ còn là một lớp màng mỏng nữa, với các kênh dẫn nước (water channels) cho phép lưu thông chất dinh dưỡng và chất thải. Cấu trúc này giống như một “thành phố” thu nhỏ với các “tòa nhà” (các cụm khuẩn lạc) và “đường sá” (kênh dẫn nước). Trong giai đoạn này, sự biệt hóa tế bào cũng diễn ra, tạo nên các nhóm tế bào có chức năng chuyên biệt trong màng sinh học, như một “xã hội thu nhỏ” được tổ chức có trật tự. Các vi khuẩn không còn hoạt động như những cá thể riêng lẻ mà phân chia công việc, hình thành các nhóm với chức năng chuyên biệt để tối ưu hóa sự sống còn và thích nghi.
VD: Màng sinh học của Pseudomonas aeruginosa – một vi khuẩn gây bệnh cơ hội phổ biến trong các bệnh nhiễm trùng mãn tính, chẳng hạn ở bệnh nhân bị xơ nang (cystic fibrosis).
Trong màng sinh học, các tế bào vi khuẩn biệt hóa thành các nhóm chức năng chuyên biệt: tế bào sản xuất EPS để củng cố cấu trúc, tế bào không hoạt động sâu bên trong để bảo tồn năng lượng, tế bào sản xuất enzyme bảo vệ khỏi kháng sinh và hệ miễn dịch, cùng tế bào phát tán để lan rộng đến môi trường mới. Cấu trúc này giúp vi khuẩn thích nghi và tồn tại trong điều kiện khắc nghiệt, nhưng cũng làm tăng khó khăn trong điều trị.
Chương 3: Biến động và Thích nghi – Giai đoạn phân tán
Màng sinh học không phải là một cấu trúc tĩnh. Khi môi trường thay đổi, ví dụ như cạn kiệt chất dinh dưỡng, hoặc khi màng sinh học đạt đến độ dày nhất định, một số vi khuẩn sẽ rời khỏi “thành phố” để tìm kiếm “vùng đất mới”. Quá trình này được gọi là phân tán, giống như sự di cư trong xã hội loài người.
- Tín hiệu phân tán: Sự phân tán được kích hoạt bởi các tín hiệu nội bào và môi trường, chẳng hạn như sự thay đổi nồng độ c-di-GMP. Nồng độ c-di-GMP cao thúc đẩy sự hình thành màng sinh học, trong khi nồng độ thấp (do hoạt động của các enzyme phosphodiesterase phân hủy c-di-GMP) kích hoạt sự phân tán. Sự xuất hiện của các tín hiệu phân tán DSF cũng góp phần điều hoá quá trình phân tán của các vi khuẩn.
- Giải phóng tế bào: Là bước quan trọng giúp vi khuẩn chuyển từ trạng thái cố định trong cộng đồng sang dạng tự do di chuyển, nhằm tìm kiếm môi trường sống mới hoặc đối phó với điều kiện bất lợi. Quá trình này được điều hòa bởi sự phối hợp của nhiều yếu tố:
+ Các enzyme phân hủy EPS như DNase, protease và alginate lyase được sản xuất, phá vỡ cấu trúc màng sinh học.
+ Các gen điều khiển tính di động của vi khuẩn (như gene flagella – quy định sự phát triển các tiên mao của vi khuẩn để di chuyển) sẽ được kích hoạt (do nồng độ c-di-GMP thấp) dẫn đến sự phân tán của vi khuẩn.
+ Hợp chất nitric oxide (NO) được tạo ra trong điều kiện thiếu oxy cũng góp phần làm giảm độ bền của màng sinh học và kích hoạt sự phân tán.
Những yếu tố này phối hợp với nhau để giúp vi khuẩn thoát khỏi màng sinh học, tăng khả năng thích nghi và lan truyền.
- Khởi đầu chu kỳ mới: Những vi khuẩn “từng trải” được giải phóng khỏi màng sinh học cũ không hề “tay trắng”. Chúng mang theo “hành trang kinh nghiệm” quý báu, sẵn sàng tái lập những “cộng đồng” màng sinh học mới ở những vị trí khác. Điều này giống như việc những người dân di cư từ một thành phố cũ đến một vùng đất mới, mang theo kiến thức và kỹ năng để xây dựng một cuộc sống mới. Chính vì vậy, việc sử dụng kháng sinh một cách chủ quan là vô cùng nguy hiểm, nhất là ở dạng thức chấm mụn.
Việc bạn chỉ bôi kháng sinh lên một vài nốt mụn không đồng nghĩa với việc tình trạng kháng kháng sinh chỉ giới hạn ở vùng da đó. Hãy nhớ rằng, màng sinh học không phải là một cấu trúc tĩnh lặng. Các vi khuẩn trong màng liên tục trao đổi vật chất di truyền, bao gồm cả những gen kháng kháng sinh. Quá trình này giống như việc những người dân trong một thành phố trao đổi thông tin và công nghệ với nhau, giúp cả cộng đồng cùng phát triển.
Do đó, sự lây lan của màng sinh học và sự trao đổi gen giữa các vi khuẩn trong màng có thể khuếch tán tình trạng kháng kháng sinh một cách nhanh chóng. Trước mắt, nó có thể lan rộng ra toàn bộ khuôn mặt, và về lâu dài, thậm chí có thể ảnh hưởng đến toàn bộ cơ thể. Điều này giống như việc một căn bệnh lây lan từ một khu vực nhỏ trong thành phố, nếu không được kiểm soát kịp thời, có thể bùng phát thành dịch bệnh trên diện rộng.
5. Màng sinh học và màng sinh chất của vi khuẩn – Làm rõ, hiểu sâu, biết rộng
Hai khái niệm này có tên gọi hơi tựa nhau, tuy nhiên lại hoàn toàn khác nhau. Các Đồng Điệu hãy lưu ý thêm trong quá trình tìm đọc tài liệu nghen.
- Màng sinh chất là cấu trúc vi mô, thuộc về từng tế bào vi khuẩn, được tổ chức theo dạng phospholipid kép và chịu sự kiểm soát chặt chẽ bởi các gen của tế bào.
- Màng sinh học là cấu trúc vĩ mô, đại diện cho cộng đồng vi khuẩn, bao gồm nhiều tế bào hợp tác với nhau và được bao bọc bởi một môi trường ngoại bào tự tạo.
→ Màng sinh chất là ranh giới giữa nội bào và ngoại bào, còn màng sinh học là một hệ thống tương tác giữa vi khuẩn và bề mặt mà chúng bám dính.
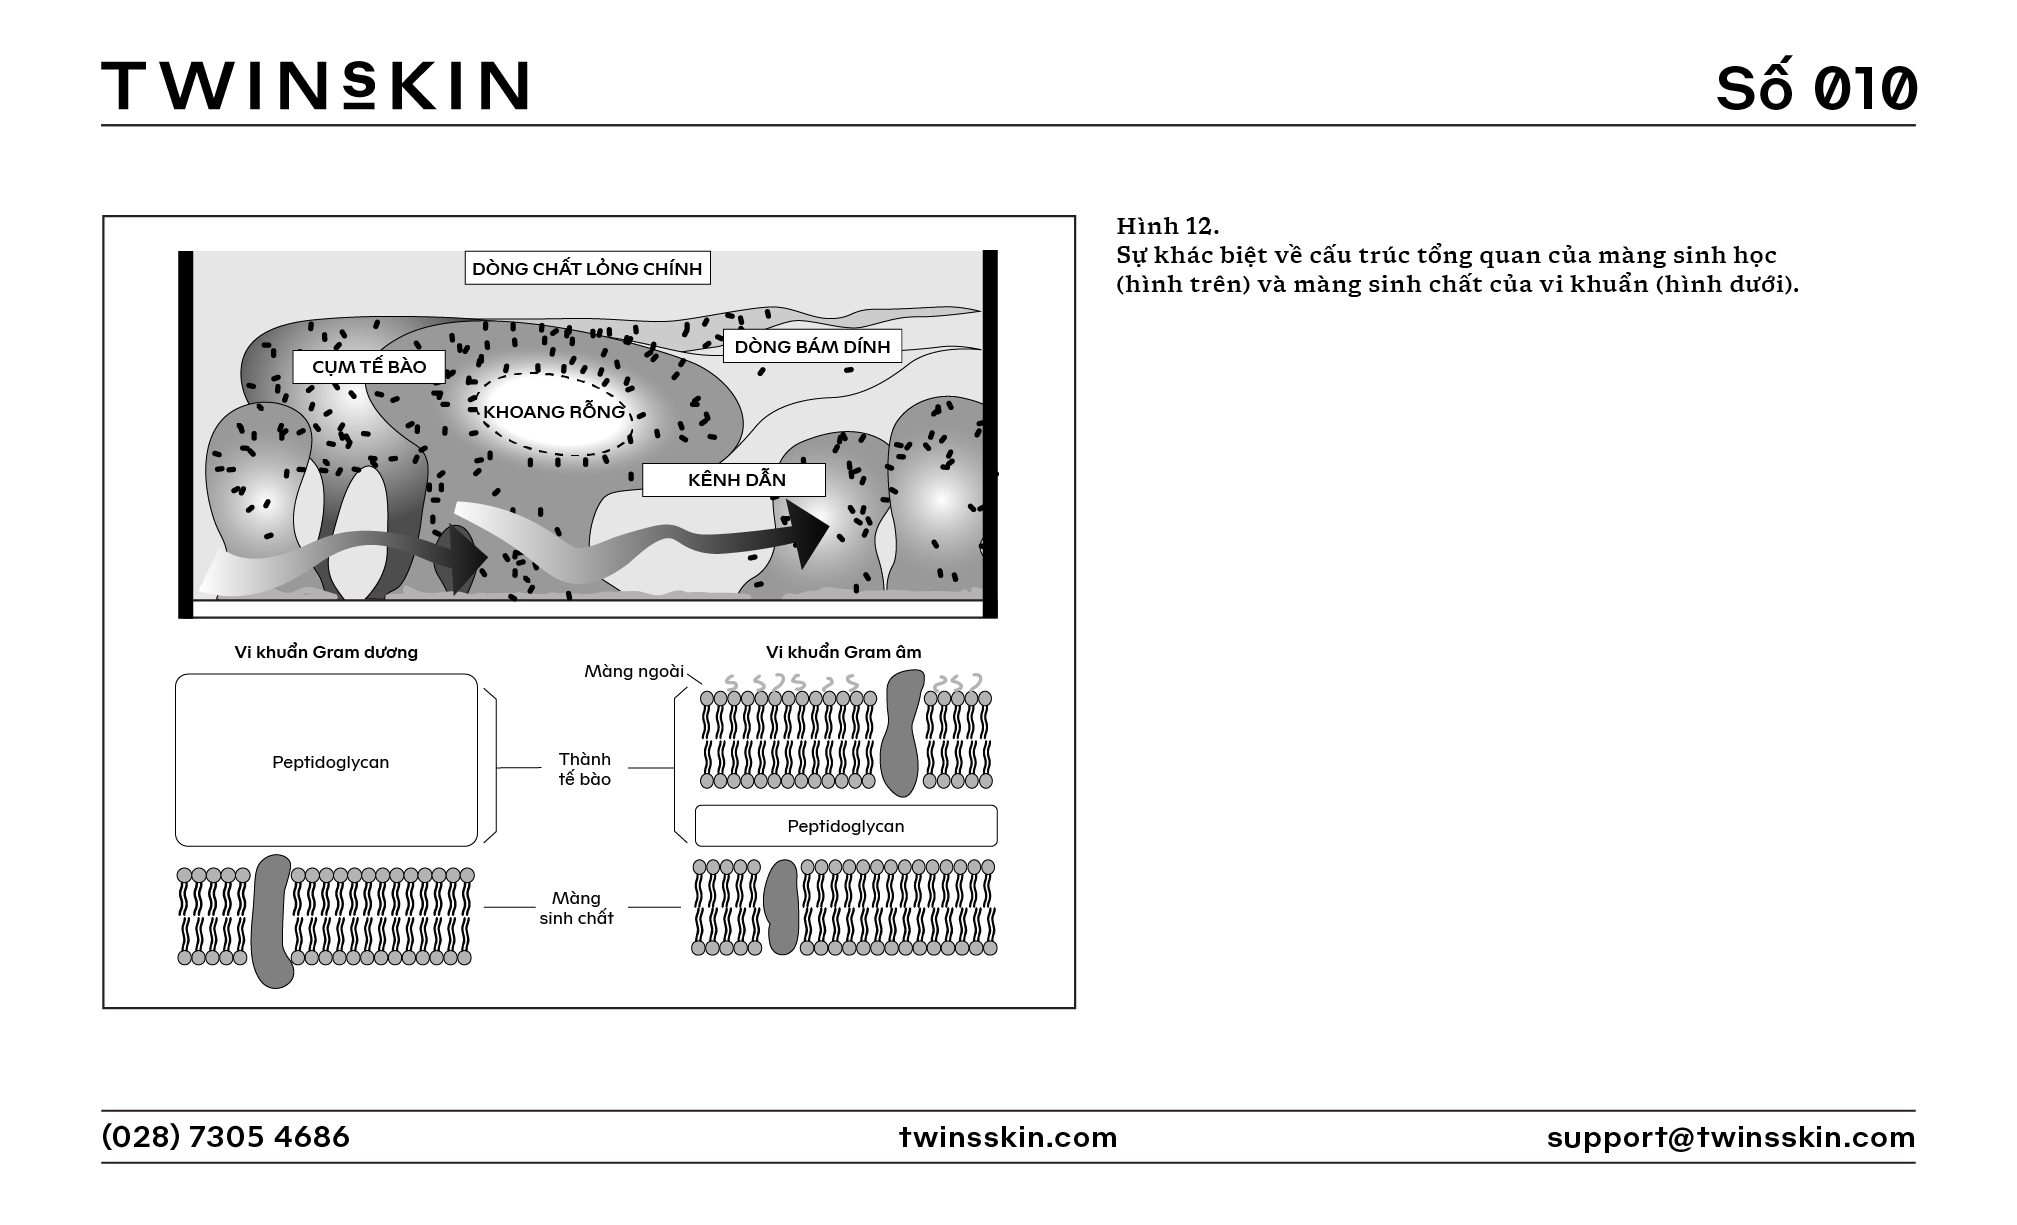
Về mặt vai trò, ta có thể tóm tắt ngắn gọn như sau: Màng sinh chất đóng vai trò sống còn ở mức độ tế bào đơn lẻ, như:
- Vận chuyển chất: Kiểm soát sự di chuyển của chất dinh dưỡng và ion.
- Nơi diễn ra quá trình hô hấp: Là nơi chứa các enzyme trong chuỗi vận chuyển electron.
- Bảo vệ: Ngăn ngừa sự mất cân bằng ion và bảo vệ tế bào khỏi các tác nhân môi trường.
Ngược lại, màng sinh học là công cụ sống còn ở mức độ cộng đồng, với các chức năng có thể kể đến như:
- Bảo vệ cộng đồng vi khuẩn: Chống lại tác động của kháng sinh, hóa chất và hệ miễn dịch.
- Lưu trữ dinh dưỡng: Lớp EPS trong màng sinh học có thể giữ lại dinh dưỡng cho vi khuẩn trong điều kiện bất lợi.
- Giao tiếp giữa các tế bào: Các tín hiệu hóa học như quorum sensing điều chỉnh hoạt động của toàn bộ cộng đồng.
→ Sự nhầm lẫn giữa màng sinh học và màng sinh chất có thể dẫn đến việc hiểu sai các cơ chế sinh học của vi khuẩn, đặc biệt trong điều trị nhiễm trùng. Màng sinh chất là mục tiêu của nhiều loại kháng sinh như polymyxin, hoạt động bằng cách phá hủy cấu trúc phospholipid kép, làm vỡ tế bào vi khuẩn. Trong khi đó, màng sinh học là nguyên nhân chính gây nhiễm trùng mãn tính và làm giảm hiệu quả của kháng sinh, do vi khuẩn bên trong được bảo vệ bởi lớp chất nền EPS và có thể chuyển sang trạng thái không hoạt động (persister cells).
6. Hướng tiếp cận mới trong câu chuyện phòng và diệt khuẩn kháng thuốc bằng các liệu pháp kháng sinh mới hoặc phi kháng sinh
Sự gia tăng nhanh chóng của các chủng vi khuẩn kháng thuốc, chẳng hạn như vi khuẩn Gram âm kháng carbapenem hay MRSA, không chỉ làm giảm hiệu quả của các liệu pháp truyền thống mà còn đẩy các bác sĩ vào tình thế khó khăn khi lựa chọn phương án điều trị. Trong bối cảnh này, nhiều giải pháp tiên tiến đã được nghiên cứu và áp dụng nhằm đối phó với vấn đề kháng kháng sinh. Các phương pháp có thể bao gồm:
- Điều trị vi khuẩn kháng kháng sinh bằng kháng sinh dự trữ và thế hệ mới;
- Liệu pháp kết hợp kháng sinh để tăng hiệu quả điều trị;
- Liệu pháp thực khuẩn thể phage – Virus tiêu diệt vi khuẩn kháng thuốc;
- Sử dụng kháng thể đơn dòng và peptide kháng khuẩn;
- Phòng ngừa bằng quản lý kháng sinh hợp lý;
- Tiêm chủng và dự phòng;
- Phát triển các liệu pháp thay thế như probiotic (lợi khuẩn sống), bacteriocins (protein kháng khuẩn tự nhiên) và quang trị liệu (photodynamic therapy);
- Phá vỡ màng sinh học để tăng khả năng tiếp cận kháng sinh.
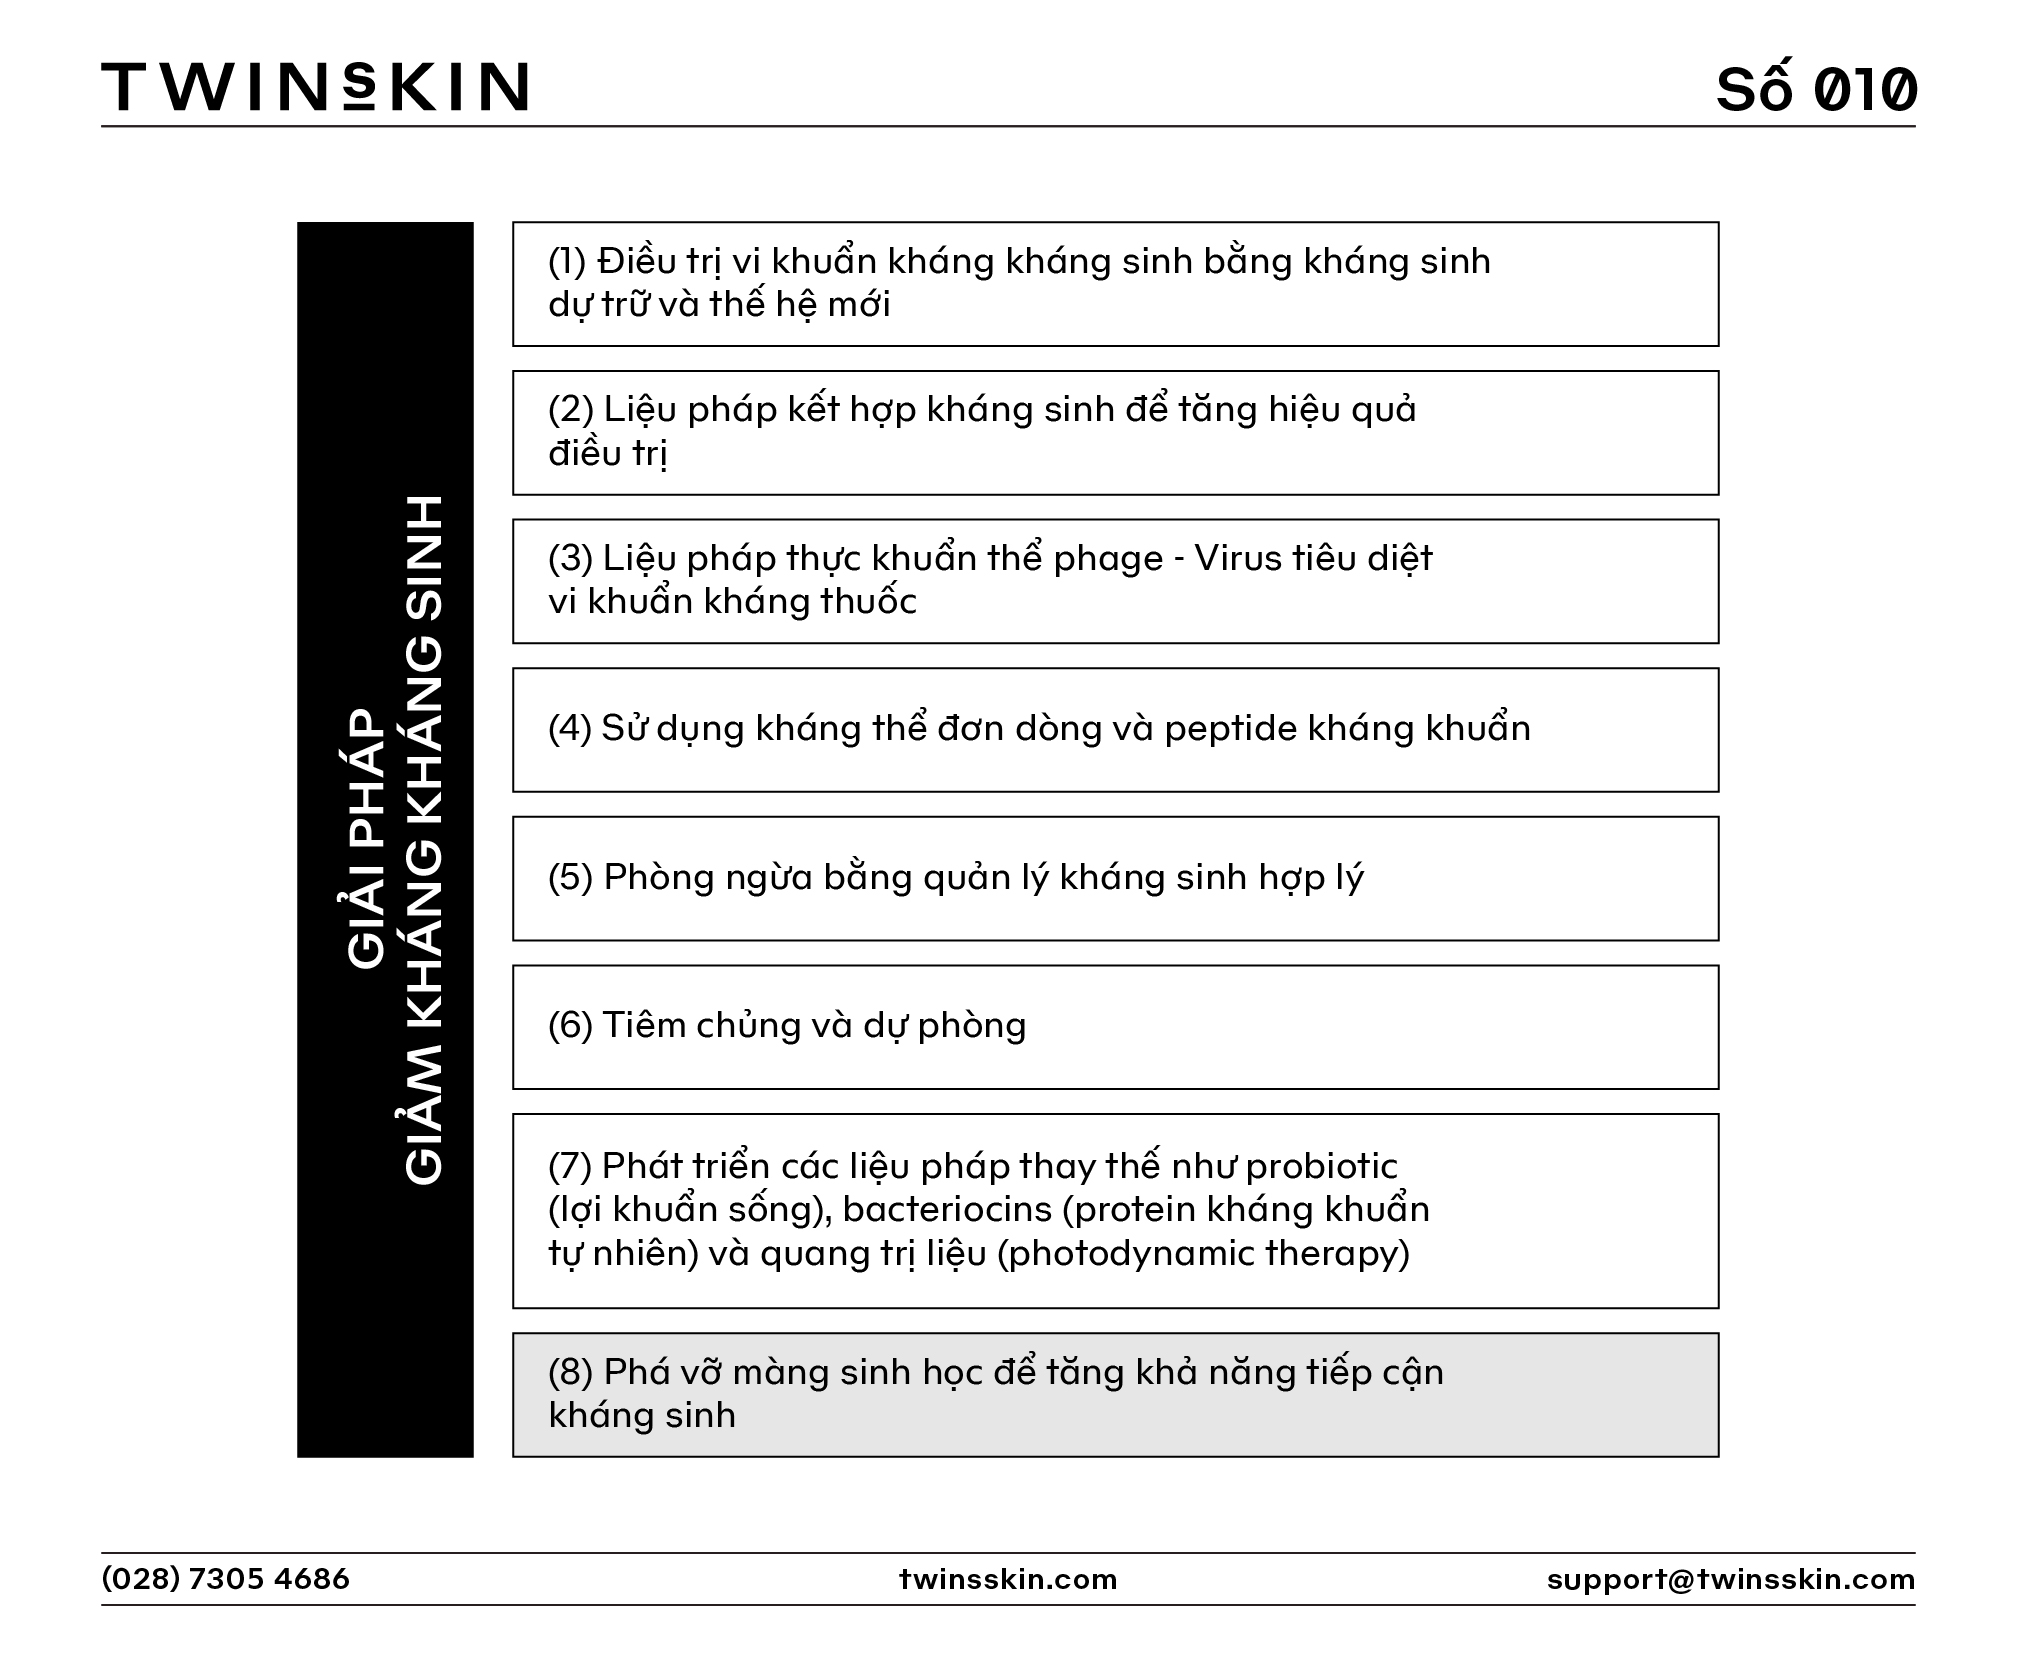
Sự kết hợp đa phương pháp có thể tạo nên một liệu pháp đa tầng (multimodal therapy), tăng khả năng điều trị các bệnh nhiễm trùng mãn tính có liên quan đến kháng kháng sinh. Trong đó, tác động đến màng sinh học đã và đang là một trong những giải pháp dễ tiếp cận và vẫn mang lại hiệu quả tốt.
Màng sinh học là một trong những cơ chế bảo vệ mạnh mẽ nhất của vi khuẩn kháng kháng sinh. Sử dụng enzyme như DNase hoặc alginate lyase giúp phá hủy lớp EPS (chất nền ngoại bào), mở đường cho kháng sinh thâm nhập sâu hơn. Ví dụ, trong điều trị nhiễm trùng phổi mãn tính do Pseudomonas aeruginosa ở bệnh nhân xơ nang, việc sử dụng alginate lyase kết hợp kháng sinh đã cải thiện rõ rệt hiệu quả điều trị. Ngoài ra, nghiên cứu về các hợp chất phá vỡ màng sinh học, như dispersin B, cũng mở ra triển vọng lớn trong việc kiểm soát nhiễm trùng mãn tính.
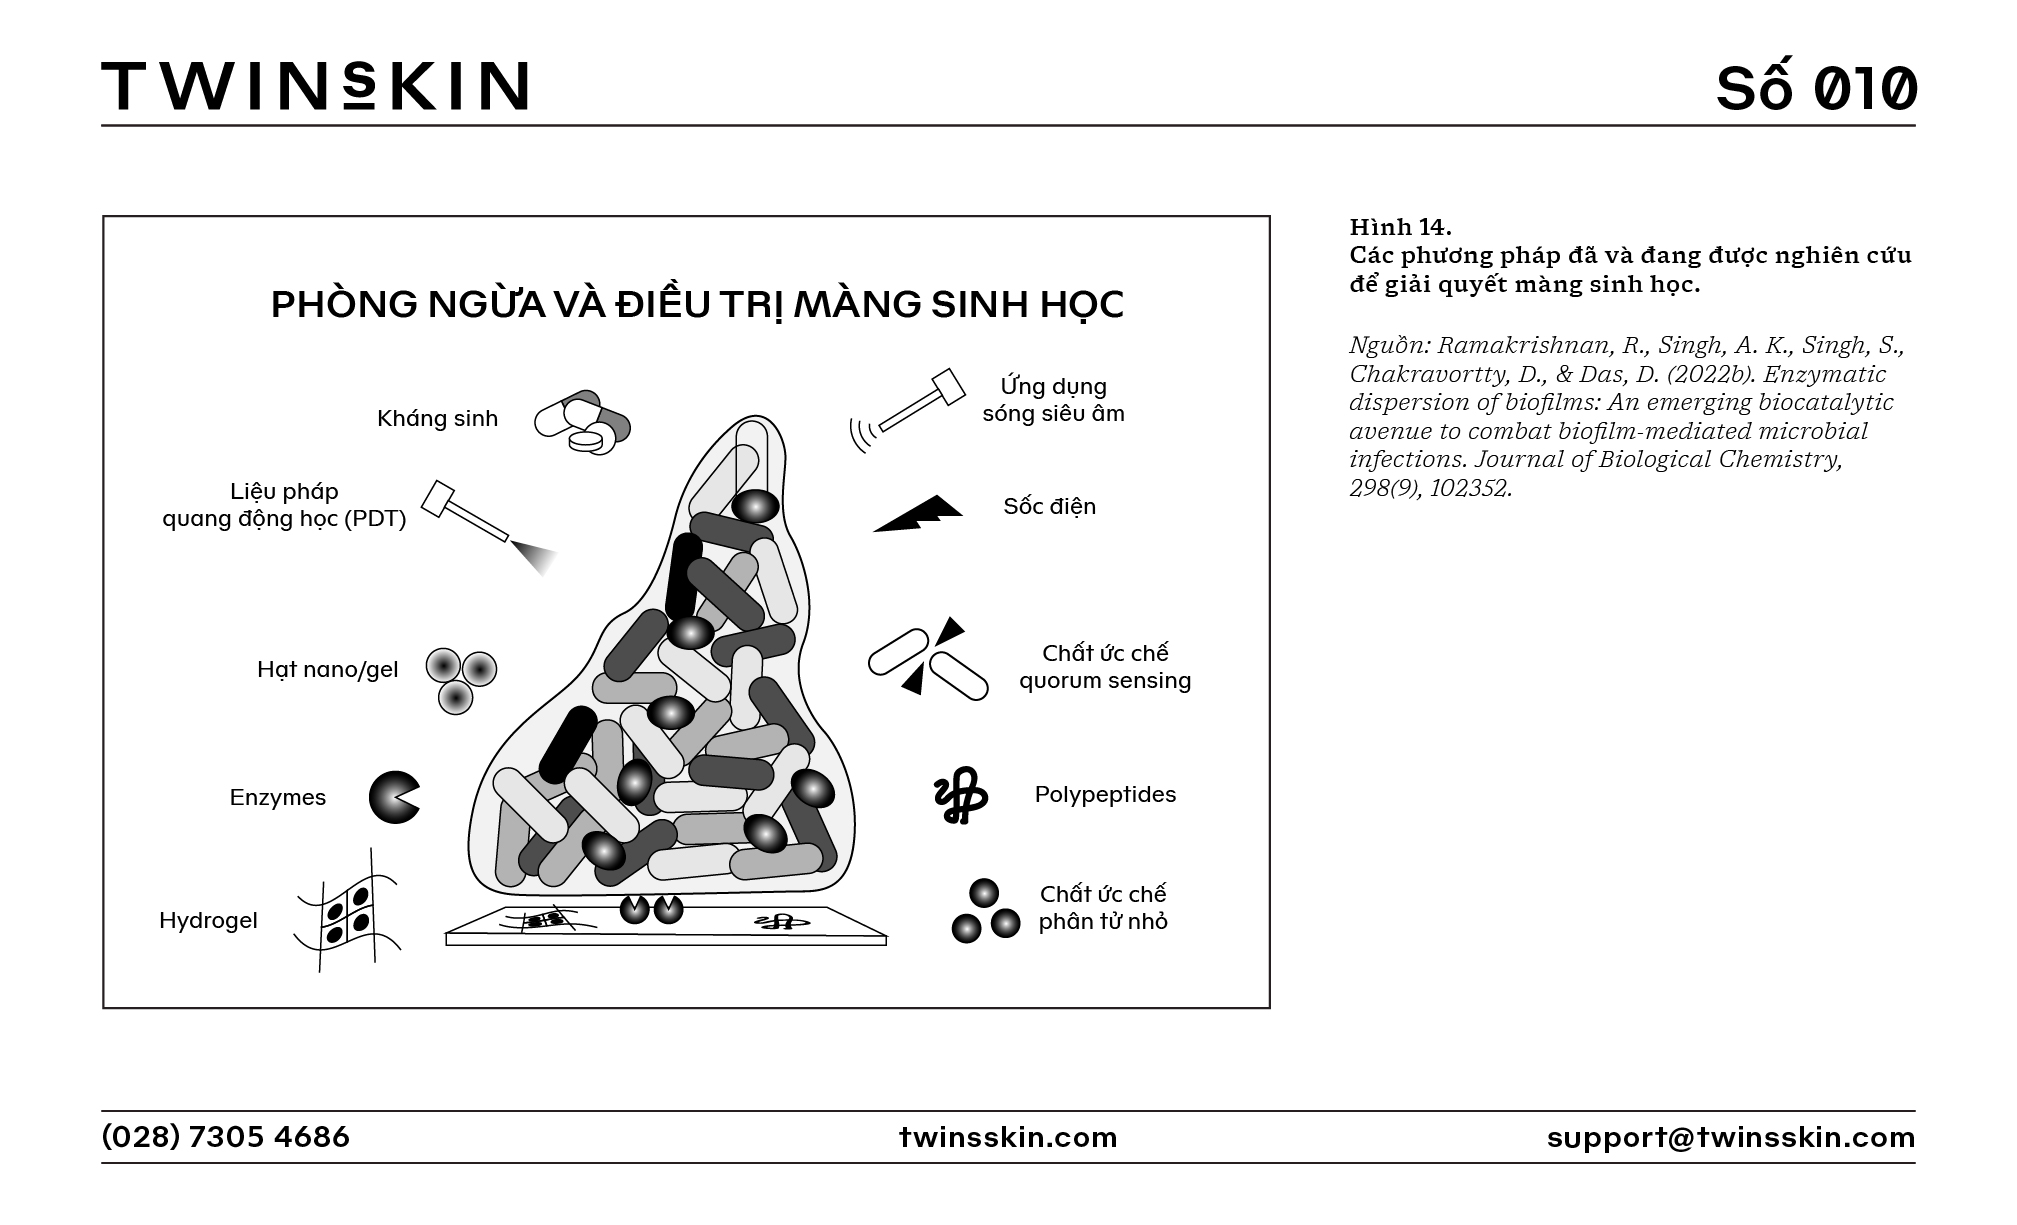
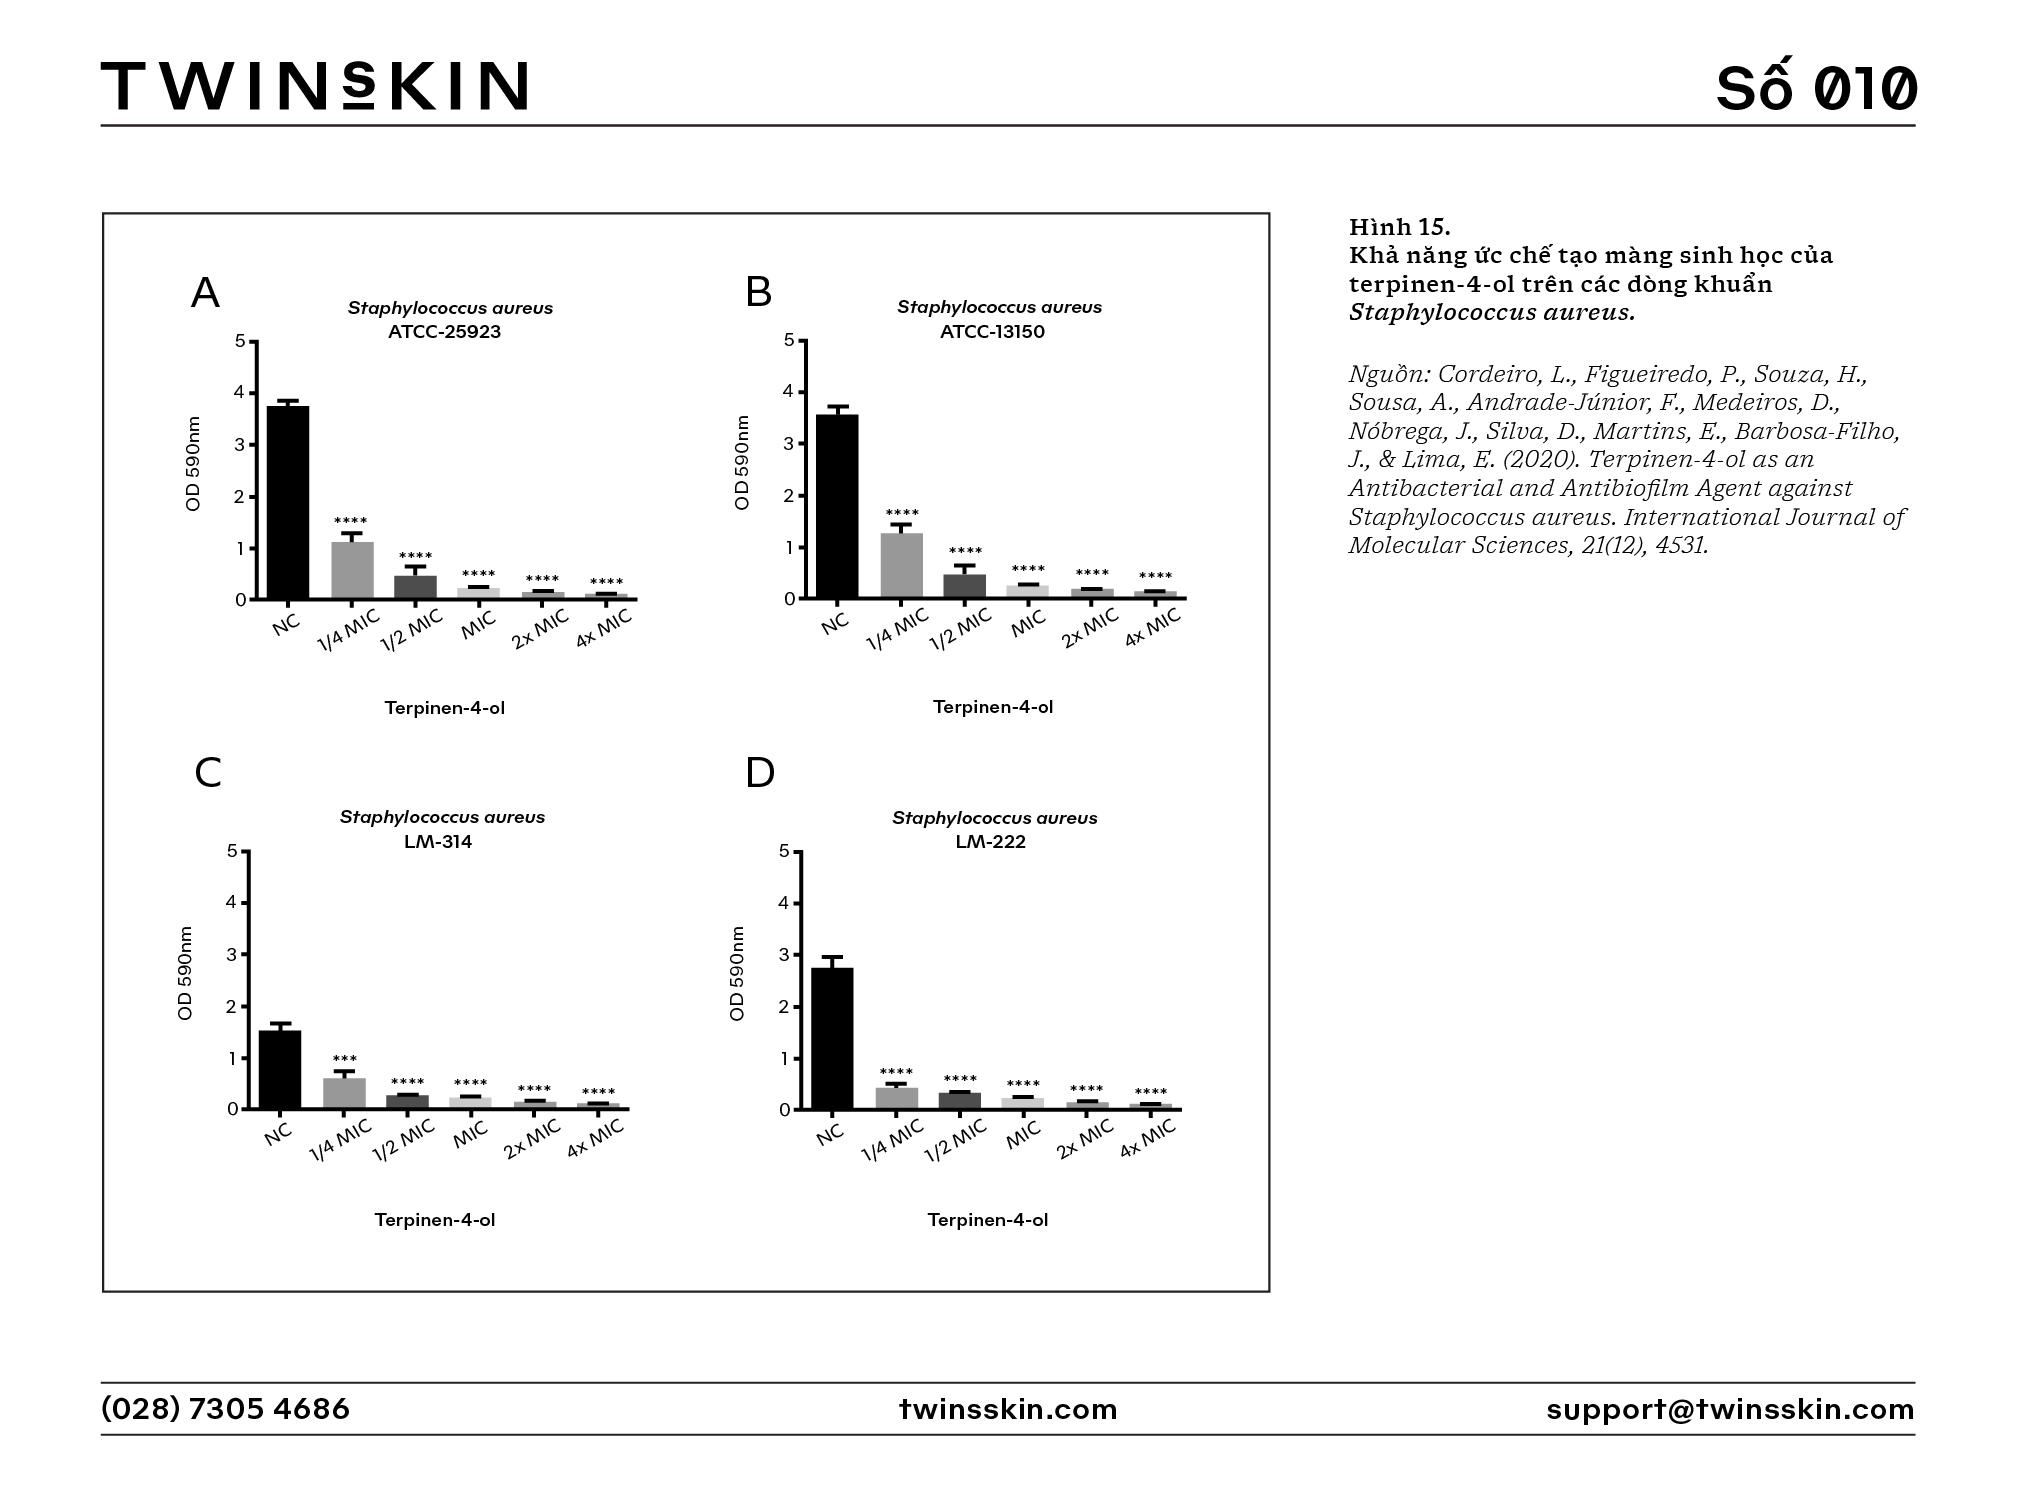
Sự kết hợp với các hợp chất tự nhiên đã được chứng minh hiệu quả giảm khuẩn (như terpinen-4-ol từ tinh dầu tràm trà) mang đến triển vọng đột phá. Terpinen-4-ol, thành phần chính của tinh dầu tràm trà, đã được chứng minh có khả năng phá vỡ các thành phần trong chất nền ngoại bào EPS, làm giảm độ bền cơ học của màng sinh học, đặc biệt ở các vi khuẩn Gram dương như Staphylococcus aureus. Ngoài ra, hợp chất này còn ức chế hoạt động của hệ thống liên lạc quorum sensing, làm gián đoạn giao tiếp giữa các vi khuẩn, hạn chế sự hình thành của màng sinh học.
Hơn nữa, terpinen-4-ol cũng có thể liên kết với protein gắn penicillin (PBP2a), một enzyme tổng hợp thành tế bào quan trọng của dòng khuẩn kháng thuốc MRSA. Liên kết này làm PBP2a nhạy cảm trở lại với kháng sinh và ngăn tổng hợp thành tế bào, gây chết vi khuẩn.
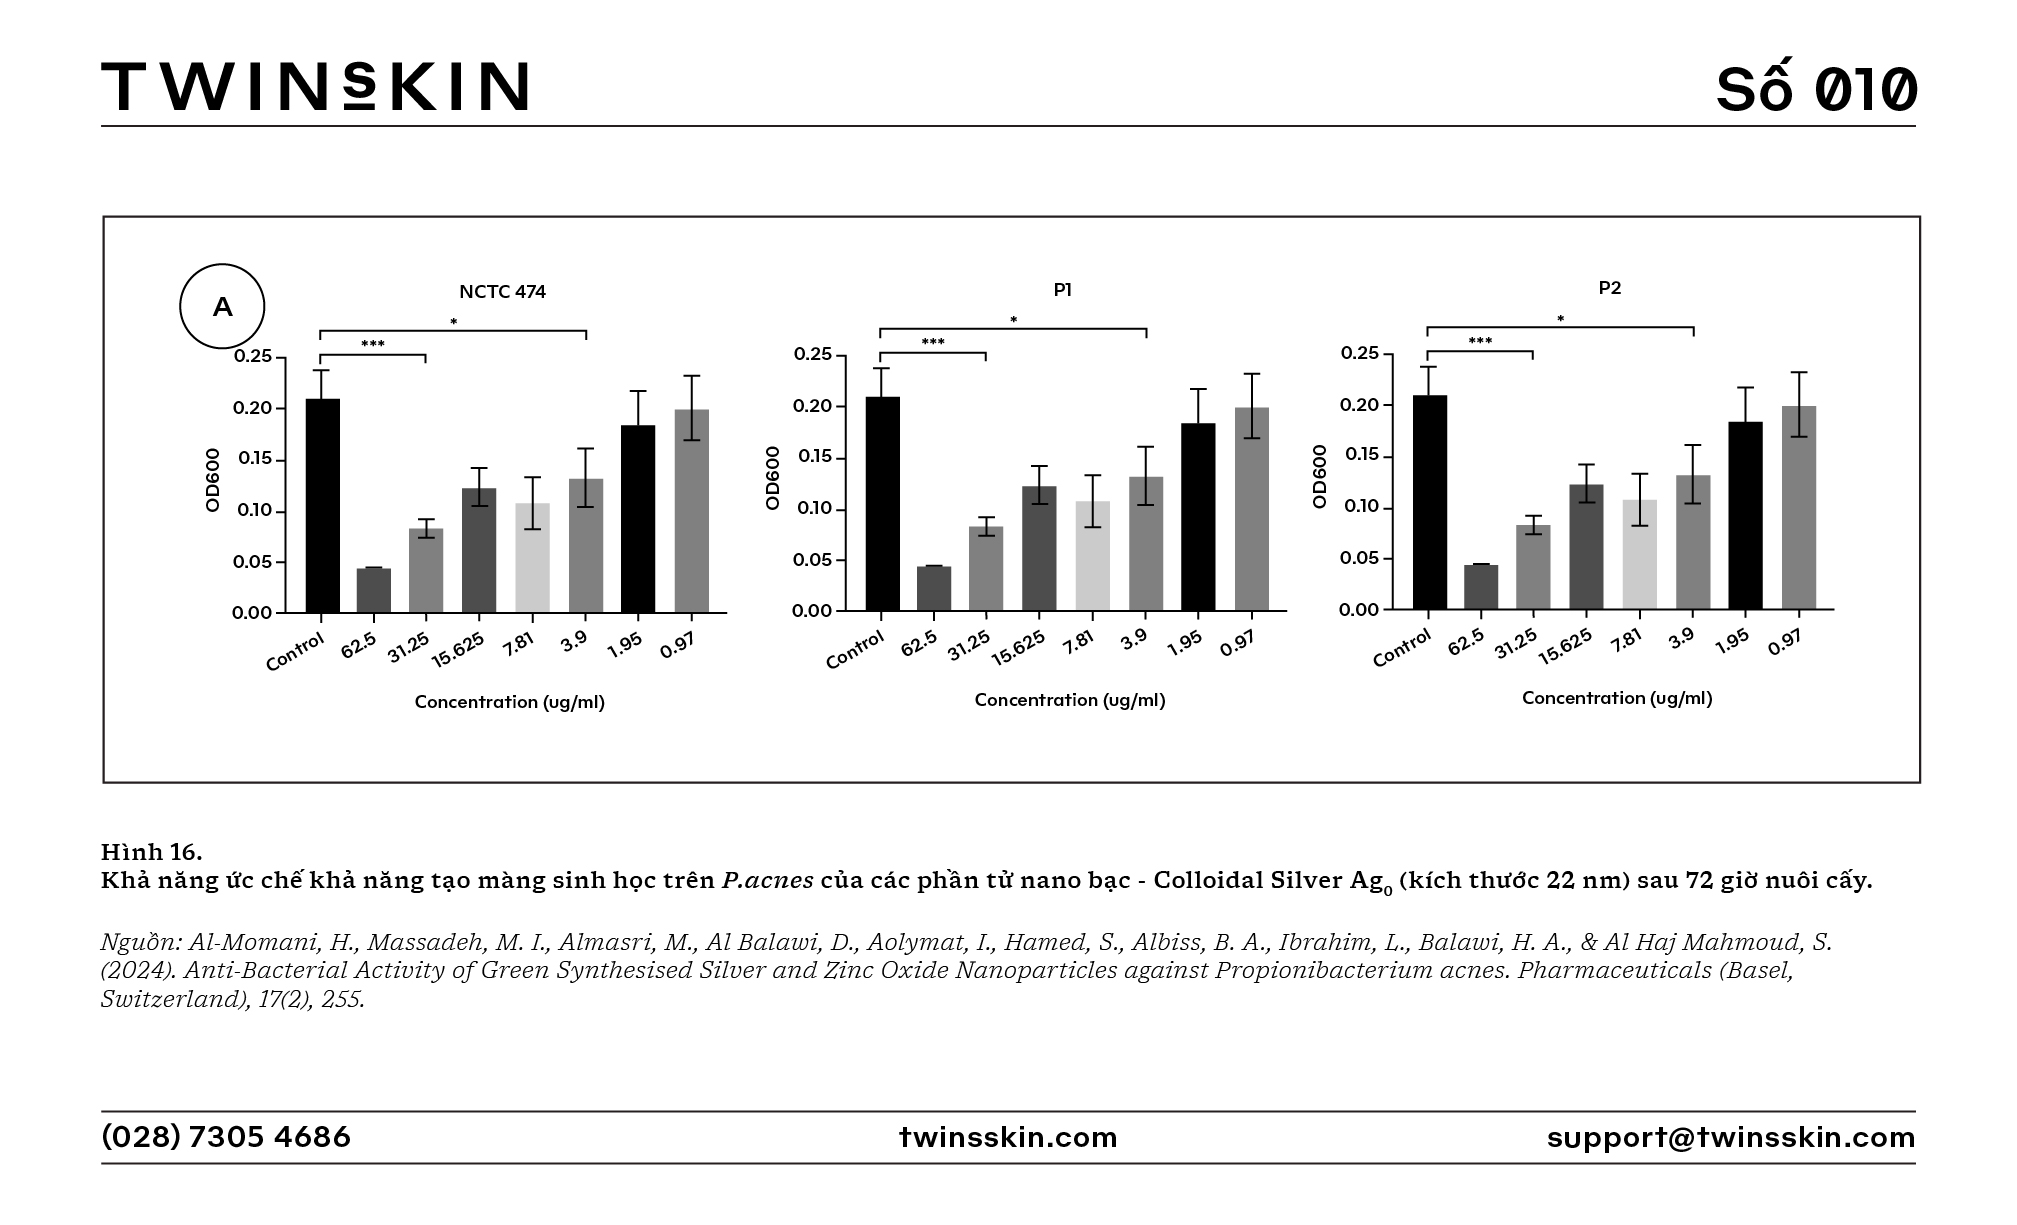
Một thành phần khác đã và đang được “viral” trở lại trong thời gian gần đây, chính là nano bạc. Nano bạc, với kích thước nhỏ hơn đáng kể so với phân tử kháng sinh phức tạp, cồng kềnh, có khả năng xâm nhập vào lớp EPS và tiêu diệt vi khuẩn ở sâu bên trong màng sinh học, nơi kháng sinh thường khó tiếp cận. Ngoài ra, các hạt nano bạc cũng làm giảm hoạt động của quorum sensing bằng cách ức chế các phân tử truyền tin liên bào, làm suy yếu sự phối hợp giữa các vi khuẩn.
7. Kết lại
Kháng kháng sinh không chỉ là thách thức của ngày hôm nay mà còn là bài toán sống còn cho y học tương lai. Việc phá vỡ “pháo đài” màng sinh học – nơi vi khuẩn trú ẩn và kháng thuốc – đòi hỏi những chiến lược sáng tạo, vượt khỏi lối mòn của kháng sinh truyền thống. Các hướng tiếp cận tấn công trực tiếp vào màng sinh học không chỉ mở ra hy vọng giải quyết các bệnh lý nhiễm trùng mãn tính mà còn đặt nền móng cho một kỷ nguyên y học bền vững hơn.
Đây không chỉ là câu chuyện của công nghệ hay nghiên cứu khoa học, mà còn là lời nhắc nhở mạnh mẽ về trách nhiệm chung trong bảo vệ sức khỏe toàn cầu. Hành trình đầy thử thách này, với sự đồng hành của tri thức và đổi mới, đang từng bước giúp chúng ta tiến gần hơn đến một thế giới nơi những mối đe dọa vi khuẩn không còn là nỗi ám ảnh vượt tầm kiểm soát.
Hy vọng bài viết này đã giúp các Đồng Điệu hiểu thêm về màng sinh học và mối liên hệ đến câu chuyện kháng kháng sinh, cũng như đưa ra hướng giải quyết mới cho “vấn nạn” này ở các bệnh lý về da liễu. Chúc các bạn mãi xinh.
SẢN PHẨM THAM KHẢO CHỨA NANO BẠC & TERPINEN-4-OL
Được phát triển trên cơ sở hiệp đồng phối hợp chặt chẽ các hoạt chất, tác động đến 4 tác nhân chính gây mụn, giúp se nhân mụn nhanh chóng, hỗ trợ quá trình phục hồi tổn thương, hạn chế để lại thâm, sẹo.
Đặc hiệu cho các tình trạng mụn viêm dai dẳng do loạn khuẩn và viêm da do vi nấm mà không gây kháng kháng sinh. Đồng thời tạo một lớp màng bảo vệ như miếng dán tàng hình cho nốt mụn, giúp tạo sự tiện lợi, thoải mái trong quá trình giải quyết mụn.
Bảng thành phần có chứa 50ppm Colloidal Silver (với các phân tử bạc Ag0 kích thước 1-100nm, an toàn cho con người cũng như các sinh vật đa bào khác) và 2% Trikenol™ Plus (chứa Terpinen-4-ol tinh khiết được phân lập từ tràm trà), cùng với các thành phần hỗ trợ khác giúp vừa giảm khuẩn, giảm nấm, vừa ức chế sự hình thành của màng sinh học.
TÀI LIỆU THAM KHẢO
- Boudarel, H., Mathias, J., Blaysat, B., & Grédiac, M. (2018). Towards standardized mechanical characterization of microbial biofilms: analysis and critical review. Npj Biofilms and Microbiomes, 4(1).
- Mingeot-Leclercq, M., Glupczynski, Y., & Tulkens, P. M. (1999). Aminoglycosides: activity and resistance. Antimicrobial Agents and Chemotherapy, 43(4), 727–737.
- Murphy, J. T., & Walshe, R. (2010). Modeling antibiotic resistance in bacterial colonies using Agent-Based approach. In Springer eBooks (pp. 131–154).
- Murakami, S. (2008). Multidrug efflux transporter, AcrB—the pumping mechanism. Current Opinion in Structural Biology, 18(4), 459–465.
- Bello-López, J. M., Cabrero-Martínez, O. A., Ibáñez-Cervantes, G., Hernández-Cortez, C., Pelcastre-Rodríguez, L. I., Gonzalez-Avila, L. U., & Castro-Escarpulli, G. (2019). Horizontal Gene Transfer and Its Association with Antibiotic Resistance in the Genus Aeromonas spp. Microorganisms, 7(9), 363.
- Hostetler, Z. M. (2018). A genetically encoded fluorescent amino acid reveals protein dynamics regulating the bacterial DNA damage response (Doctoral dissertation, University of Pennsylvania). Publicly Accessible Penn Dissertations, 3129. University of Pennsylvania.
- Truong, W.R., Hidayat, L.K., Bolaris, M.A., Nguyen, L., & Yamaki, J. (2021). The antibiogram: key considerations for its development and utilization. JAC-Antimicrobial Resistance, 3.
- Gross, M. (2017). Shining new light on quorum sensing. Current Biology, 27(24), R1293–R1296.
- Themes, U. (2015, September 7). Microbial biofilms in endodontics. Pocket Dentistry.
- Renbarger, T. L., Baker, J. M., & Sattley, W. M. (2017). Slow and steady wins the race: an examination of bacterial persistence. AIMS Microbiology, 3(2), 171–185.
- Karygianni, L., Ren, Z., Koo, H., & Thurnheer, T. (2020). Biofilm matrixome: extracellular components in structured microbial communities. Trends in Microbiology, 28(8), 668–681.
- Ramakrishnan, R., Singh, A. K., Singh, S., Chakravortty, D., & Das, D. (2022). Enzymatic dispersion of biofilms: An emerging biocatalytic avenue to combat biofilm-mediated microbial infections. Journal of Biological Chemistry, 298(9), 102352.
- Flemming, H., & Wingender, J. (2010). The biofilm matrix. Nature Reviews Microbiology, 8(9), 623–633.
- Okshevsky, M., Regina, V. R., & Meyer, R. L. (2015). Extracellular DNA as a target for biofilm control. Current Opinion in Biotechnology, 33, 73–80.
- Schilcher, K., & Horswill, A. R. (2020). Staphylococcal biofilm development: structure, regulation, and Treatment Strategies. Microbiology and Molecular Biology Reviews, 84(3).
- Rumbaugh, K. P., & Sauer, K. (2020). Biofilm dispersion. Nature Reviews Microbiology.
- Liu, C., Sun, D., Liu, J., Chen, Y., Zhou, X., Ru, Y., Zhu, J., & Liu, W. (2022). cAMP and c-di-GMP synergistically support biofilm maintenance through the direct interaction of their effectors. Nature Communications, 13(1).
- Solano, C., Echeverz, M., & Lasa, I. (2014). Biofilm dispersion and quorum sensing. Current Opinion in Microbiology, 18, 96–104.
- Véscovi, E. G., Soncini, F. C., & Groisman, E. A. (1996). Mg2+ as an extracellular signal: environmental regulation of Salmonella virulence. Cell, 84(1), 165-174.
- Ramakrishnan, R., Singh, A. K., Singh, S., Chakravortty, D., & Das, D. (2022b). Enzymatic dispersion of biofilms: An emerging biocatalytic avenue to combat biofilm-mediated microbial infections. Journal of Biological Chemistry, 298(9), 102352.
- Cordeiro, L., Figueiredo, P., Souza, H., Sousa, A., Andrade-Júnior, F., Medeiros, D., Nóbrega, J., Silva, D., Martins, E., Barbosa-Filho, J., & Lima, E. (2020). Terpinen-4-ol as an Antibacterial and Antibiofilm Agent against Staphylococcus aureus. International Journal of Molecular Sciences, 21(12), 4531.
- Al-Momani, H., Massadeh, M. I., Almasri, M., Al Balawi, D., Aolymat, I., Hamed, S., Albiss, B. A., Ibrahim, L., Balawi, H. A., & Al Haj Mahmoud, S. (2024). Anti-Bacterial Activity of Green Synthesised Silver and Zinc Oxide Nanoparticles against Propionibacterium acnes. Pharmaceuticals (Basel, Switzerland), 17(2), 255.
- Huang, F., An, Z., Moran, M. J., & Liu, F. (2020). Recognition of typical antibiotic residues in environmental media related to groundwater in China (2009−2019). Journal of Hazardous Materials, 399, 122813..
- Binh, V. N., Dang, N., Anh, N. T. K., Ky, L. X., & Thai, P. K. (2018). Antibiotics in the aquatic environment of Vietnam: Sources, concentrations, risk and control strategy. Chemosphere, 197, 438–450.
- Kim, D. P., Degand, G., Douny, C., Pierret, G., Delahaut, P., Vu, D. T., Granier, B., & Scippo, M.-L. (2013). Preliminary evaluation of antimicrobial residue levels in marketed pork and chicken meat in the Red River Delta region of Vietnam. Food and Public Health, 3(6), 267–276.
- Ramesh, N., & Tripathi, H. (2022). Antibiotic usage practice and knowledge on antimicrobial resistance among livestock and poultry farmers of Telangana state, India. Indian Journal of Animal Sciences, 92(2), 166–173.

Twins Skin là thương hiệu mỹ phẩm chuẩn khoa học đầu tiên của Việt Nam, tiên phong ứng dụng các công nghệ bọc tiên tiến, dựa trên nền tảng khoa học đã được nghiên cứu chứng nhận. Đội ngũ nghiên cứu của Twins Skin gồm: kỹ sư hoá sinh, kỹ sư hoá dược, sự tham vấn từ bác sĩ da liễu và bác sĩ da liễu thẩm mỹ.
Mỗi khách hàng đến với Twins Skin đều sẽ được thiết quy trình cá nhân hoá dựa vào lịch sử da và vấn đề da. Twins Skin cam kết đảm bảo quyền lợi của bạn với chính sách bảo hành/đổi trả miễn phí. Tìm hiểu và kết nối cùng Twins tại:


