
Khoa Học Làn Da
Cập nhật mới về sinh bệnh học nám da: 4 hệ thống chức năng nền tảng bị rối loạn ảnh hưởng đến con đường sinh sắc tố
Th4
Trong nhiều thập kỷ, nám da chủ yếu được xem là tình trạng tăng sản xuất và lắng đọng sắc tố melanin quá mức ở lớp biểu bì. Phần lớn khách hàng đã quen với lời giải thích: nám xuất hiện khi tế bào hắc tố hoạt động quá mức, sản xuất nhiều melanin một cách ồ ạt. Vì vậy, đa phần cách tiếp cận điều trị cũng xoay quanh việc ức chế, triệt tiêu sắc tố hoặc ngăn chặn sự hoạt động của tế bào hắc tố.
Tuy nhiên, ngay cả khi đã thử nhiều phương pháp khác nhau, nhiều trường hợp vẫn bị tái phát nám, đậm lên hoặc lan rộng theo thời gian. Điều này khiến một số khách hàng nghĩ rằng mình bị nám do “lỗi gen” khiến tế bào hắc tố sinh sắc tố hoạt động bất thường.
Từ góc nhìn của một thương hiệu mỹ phẩm khoa học, Twins Skin không xem đây chỉ là “do cơ địa” hay “da khó chiều”, mà coi đó là một tín hiệu cho thấy có thể còn một khoảng trống nhận thức về sinh bệnh học của nám khi chỉ nhìn vào tế bào hắc tố.
Khi đội ngũ nghiên cứu và phát triển sản phẩm của Twins tìm hiểu sâu hơn về cơ chế sinh nám, từ các dữ liệu nghiên cứu khoa học trong những năm gần đây gợi ý rằng việc tăng sản xuất melanin chỉ là phần bề nổi dễ nhận thấy bằng mắt thường; bên dưới là cả một chuỗi rối loạn đang diễn ra – từ cấp độ phân tử (enzyme, tín hiệu) đến cấp độ tế bào và vi môi trường da.
Trong bài viết này, Twins Skin cùng bạn đi từ những gì đã quen thuộc – melanin, tế bào hắc tố – đến bức tranh rộng hơn về sự rối loạn toàn bộ hệ sinh học da, bắt đầu từ cấp độ phân tử cho tới tế bào. Từ đó, chúng ta có thể từng bước xây dựng một tư duy mới về nám: Không chỉ “xóa đốm nâu” trong ngắn hạn, mà hiểu rõ hơn nền tảng sinh học phía sau để lựa chọn các hướng kiểm soát nám khoa học, bền vững hơn về lâu dài.
_______________
Có gì trong bài viết này
1. Rối loạn mạng lưới tế bào da – những “kẻ chủ mưu” thúc đẩy sinh sắc tố.
Dưới góc nhìn sinh học tế bào, da không phải là một “tấm vải” phẳng, còn tế bào hắc tố cũng không phải một cá thể đơn độc nằm im dưới lớp biểu bì. Da là một hệ sinh thái động, nơi nhiều loại tế bào cùng tồn tại và liên tục tương tác với nhau: tế bào sừng, tế bào hắc tố, nguyên bào sợi, tế bào mast, tế bào nội mô mạch máu, tế bào miễn dịch…
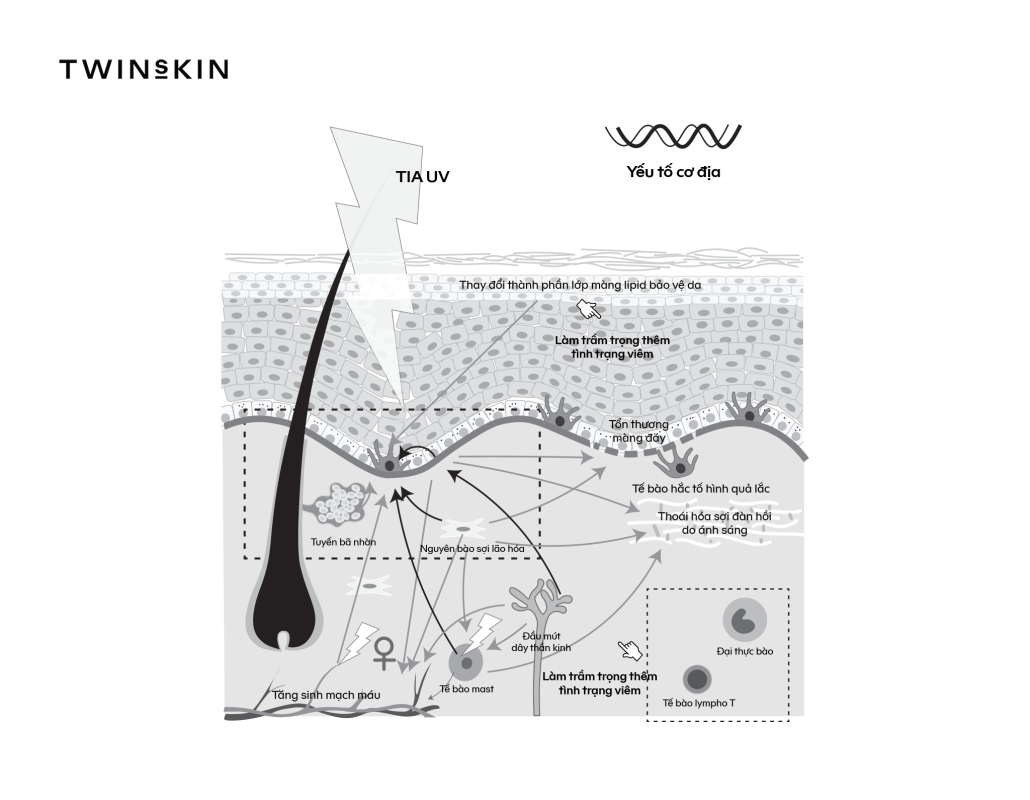
Mỗi loại tế bào vừa có vai trò riêng, vừa liên kết với nhau thông qua một mạng lưới tín hiệu dày đặc gồm cytokine, hormone, yếu tố tăng trưởng và hệ enzyme. Bất cứ thay đổi nhỏ nào ở một mắt xích – ví dụ như viêm mạn tính ở thượng bì, lão hoá nguyên bào sợi ở trung bì hay đứt gãy màng đáy – đều có thể “dội ngược” lên tế bào hắc tố và thay đổi cách nó sản xuất, vận chuyển và phân phối melanin.
1.1. Sự tương tác giữa tế bào thượng bì và tế bào hắc tố
Dưới kính hiển vi, tế bào hắc tố trưởng thành là những tế bào nhỏ hơn tế bào thượng bì, hình bầu dục hoặc hình thoi, có nhiều nhánh tua (dendrite) vươn ra giữa “rừng” tế bào thượng bì. Chúng cư trú chủ yếu ở lớp đáy – vùng ranh giới giữa thượng bì và trung bì – với mật độ trung bình khoảng 1000 – 1200 tế bào hắc tố trên mỗi mm² da. Tại đây, mỗi tế bào hắc tố không hoạt động một mình, mà tạo thành một “đơn vị melanin biểu bì” (epidermal melanin unit) cùng với khoảng 30-40 tế bào thượng bì xung quanh.
Điều này cho thấy ngay từ cấu trúc cơ bản, tế bào hắc tố đã được “lập trình” để sống và hoạt động trong tương tác chặt chẽ với tế bào thượng bì, chứ không phải một nhà máy sản xuất sắc tố tách biệt.
Nếu nhìn theo chiều sâu các lớp biểu bì (từ lớp sừng – bóng – hạt – gai – đáy) về gần màng đáy, tỉ lệ tế bào hắc tố : tế bào thượng bì xấp xỉ 1 : 10 và được duy trì khá ổn định trong suốt cuộc đời. Điều thú vị là hai loại tế bào này lại có tốc độ phân bào hoàn toàn khác nhau: tế bào thượng bì phân chia nhanh và liên tục để bù đắp cho lớp sừng bong ra mỗi ngày, trong khi tế bào hắc tố phân chia rất chậm và sống lâu hơn nhiều.
Dù vậy, hệ thống vẫn duy trì được tỉ lệ tương tác ổn định giữa hai dòng tế bào – đây là một bằng chứng cho thấy tồn tại những cơ chế kiểm soát phân bào và “quản trị số lượng” rất chặt chẽ giữa tế bào hắc tố và tế bào thượng bì.
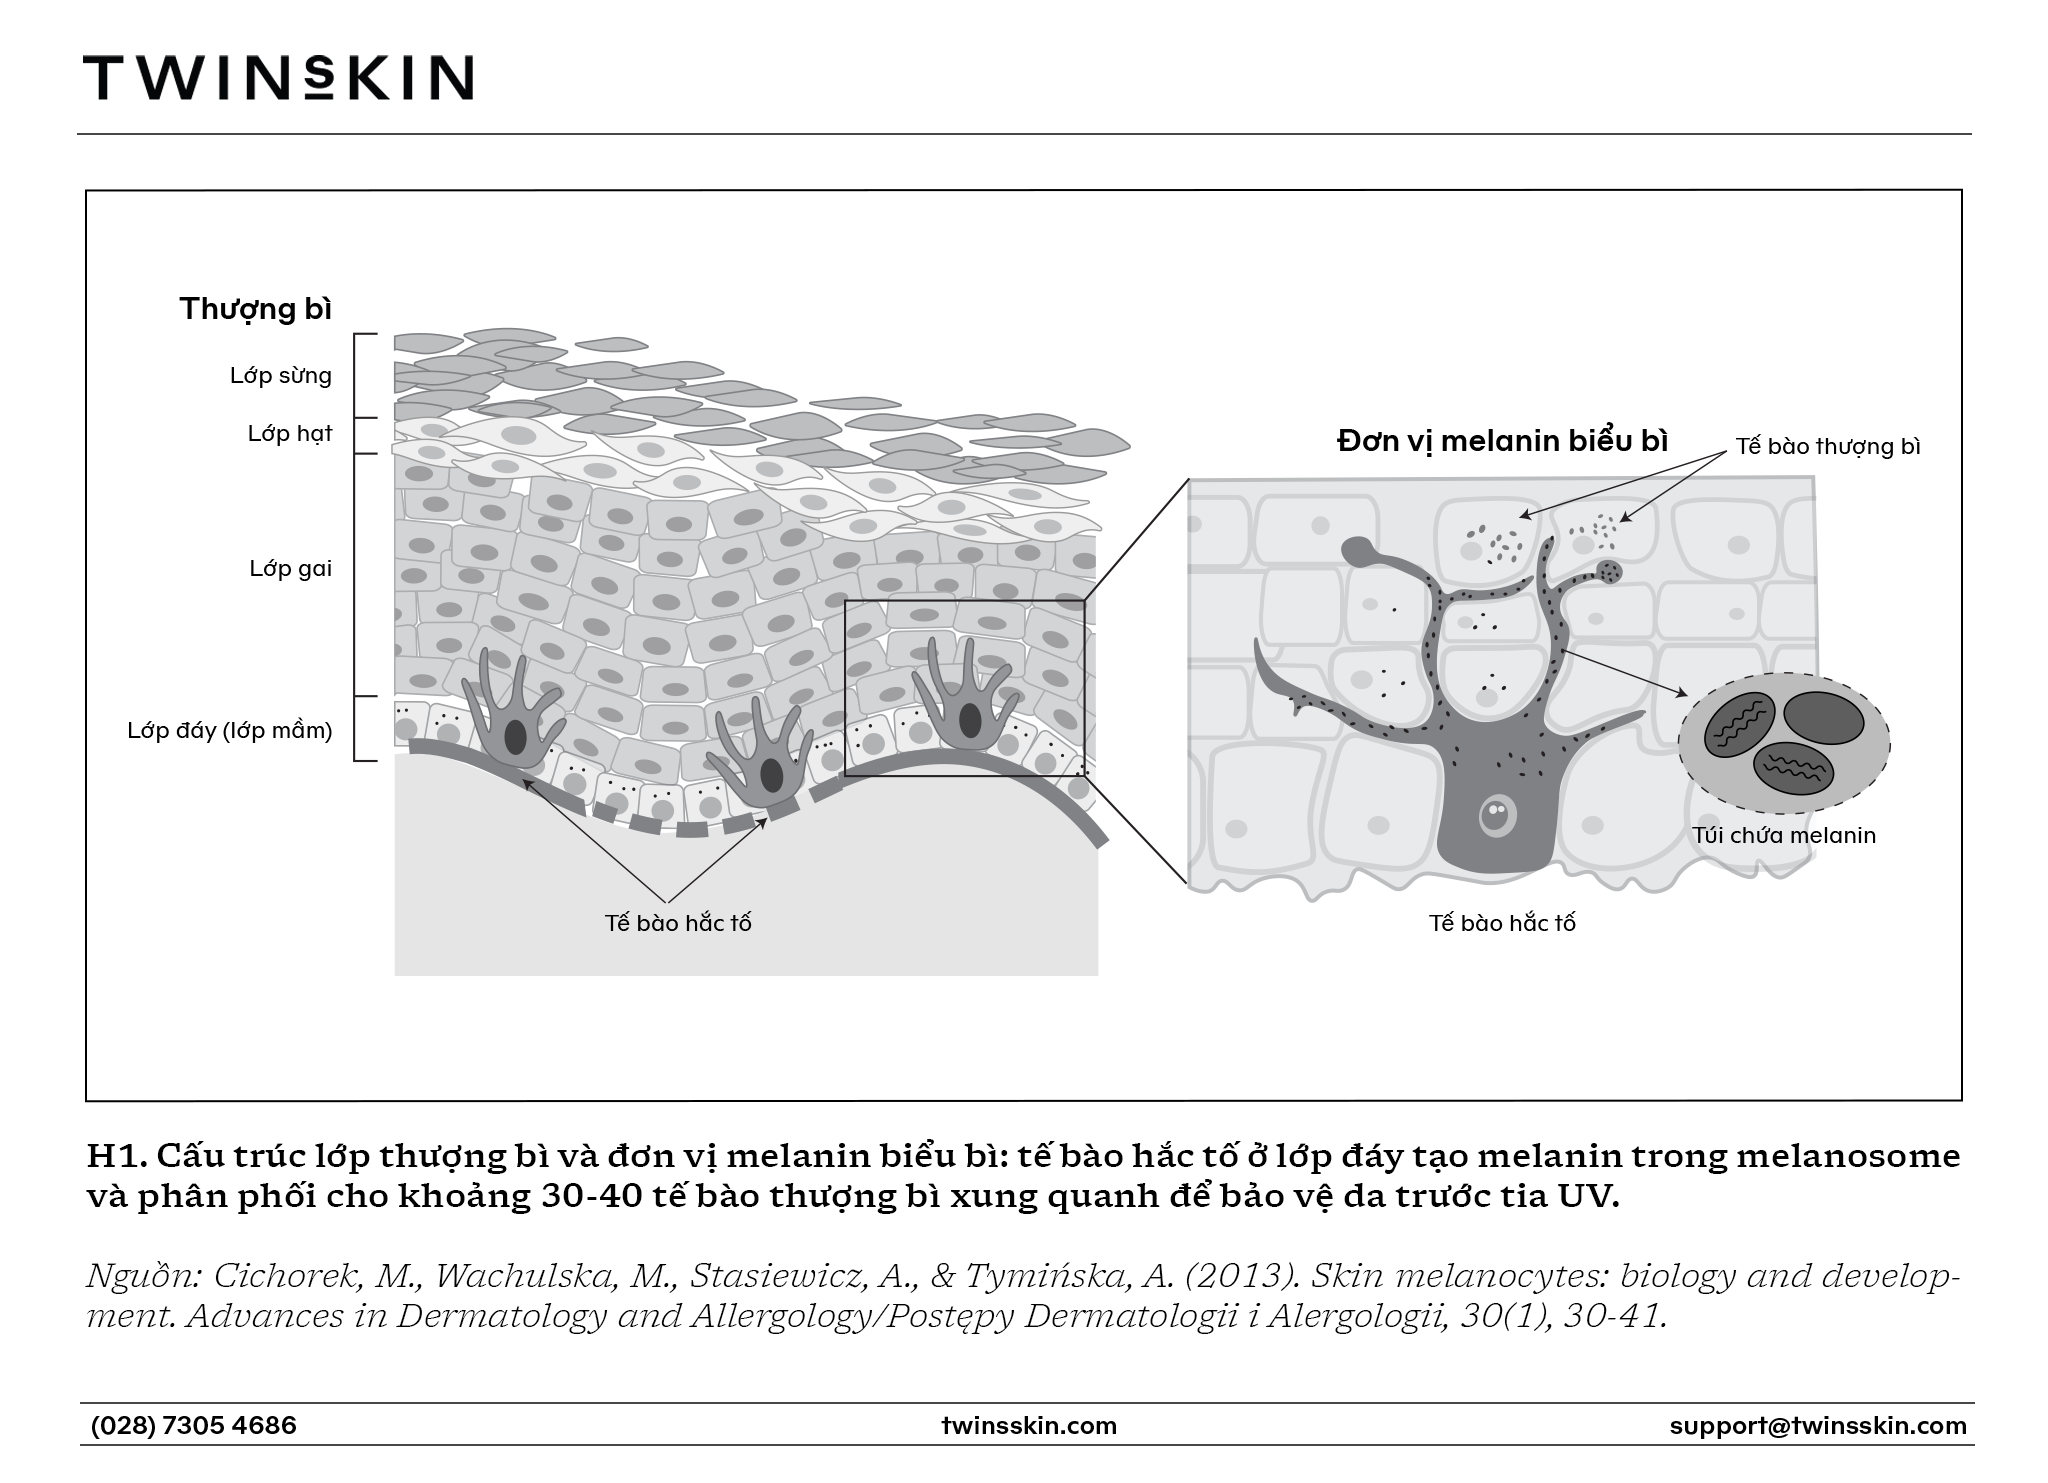
Về mặt hình thái, các nhánh tua dài của tế bào hắc tố len lỏi xuyên qua nhiều lớp tế bào thượng bì, đôi khi vươn đến tận những lớp trên cùng. Các tua dendrite chuyển sắc tố này vừa là “đường ống” vận chuyển melanosome (bào quan chứa melanin) sang tế bào thượng bì, vừa giống như những ăng-ten cảm biến, giúp tế bào hắc tố nhận và phản hồi với các tín hiệu từ môi trường xung quanh. Melanin sau khi được tổng hợp sẽ được đóng gói trong melanosome, vận chuyển dọc theo dendrite, chuyển giao cho tế bào thượng bì và sắp xếp thành một “mũ che” nằm phía trên nhân tế bào sừng, góp phần bảo vệ DNA trước tác động của tia UV.
Mối liên kết vật lý giữa tế bào hắc tố và tế bào thượng bì được duy trì bằng các mối nối tế bào – tế bào nhờ các phân tử kết dính chuyên biệt E-cadherin và P-cadherin, giúp “neo” chúng vào mạng lưới tế bào thượng bì ở lớp đáy và đảm bảo các nhánh dendrite bám đúng “địa chỉ” cần giao melanin. Song song đó, các thụ thể integrin trên bề mặt tế bào hắc tố lại chịu trách nhiệm bám dính chúng vào màng đáy, giữ tế bào hắc tố đứng vững tại “vị trí chiến lược” giữa biểu bì và trung bì.
Tuy nhiên, mối quan hệ giữa tế bào hắc tố và tế bào thượng bì không chỉ dừng ở mức kết dính cơ học, tế bào thượng bì tiết ra nhiều yếu tố tăng trưởng và cytokine theo kiểu cận tiết (paracrine) để điều hòa sự tăng sinh, hình dạng nhánh dendrite và mức độ tổng hợp melanin của tế bào hắc tố – đặc biệt mạnh hơn khi da tiếp xúc tia UV.
Ngược lại, tế bào hắc tố cũng là một “trạm phát tín hiệu” rất tích cực, tiết ra nhiều cytokine, chemokine, hormone tại chỗ… tác động trở lại tế bào thượng bì và cả các tế bào miễn dịch ở da. Nói cách khác, giữa tế bào hắc tố và tế bào thượng bì tồn tại một mạng lưới trao đổi thông tin hai chiều liên tục, nhằm giữ cho đơn vị melanin biểu bì vận hành ổn định và da duy trì được cân bằng nội môi (homeostasis).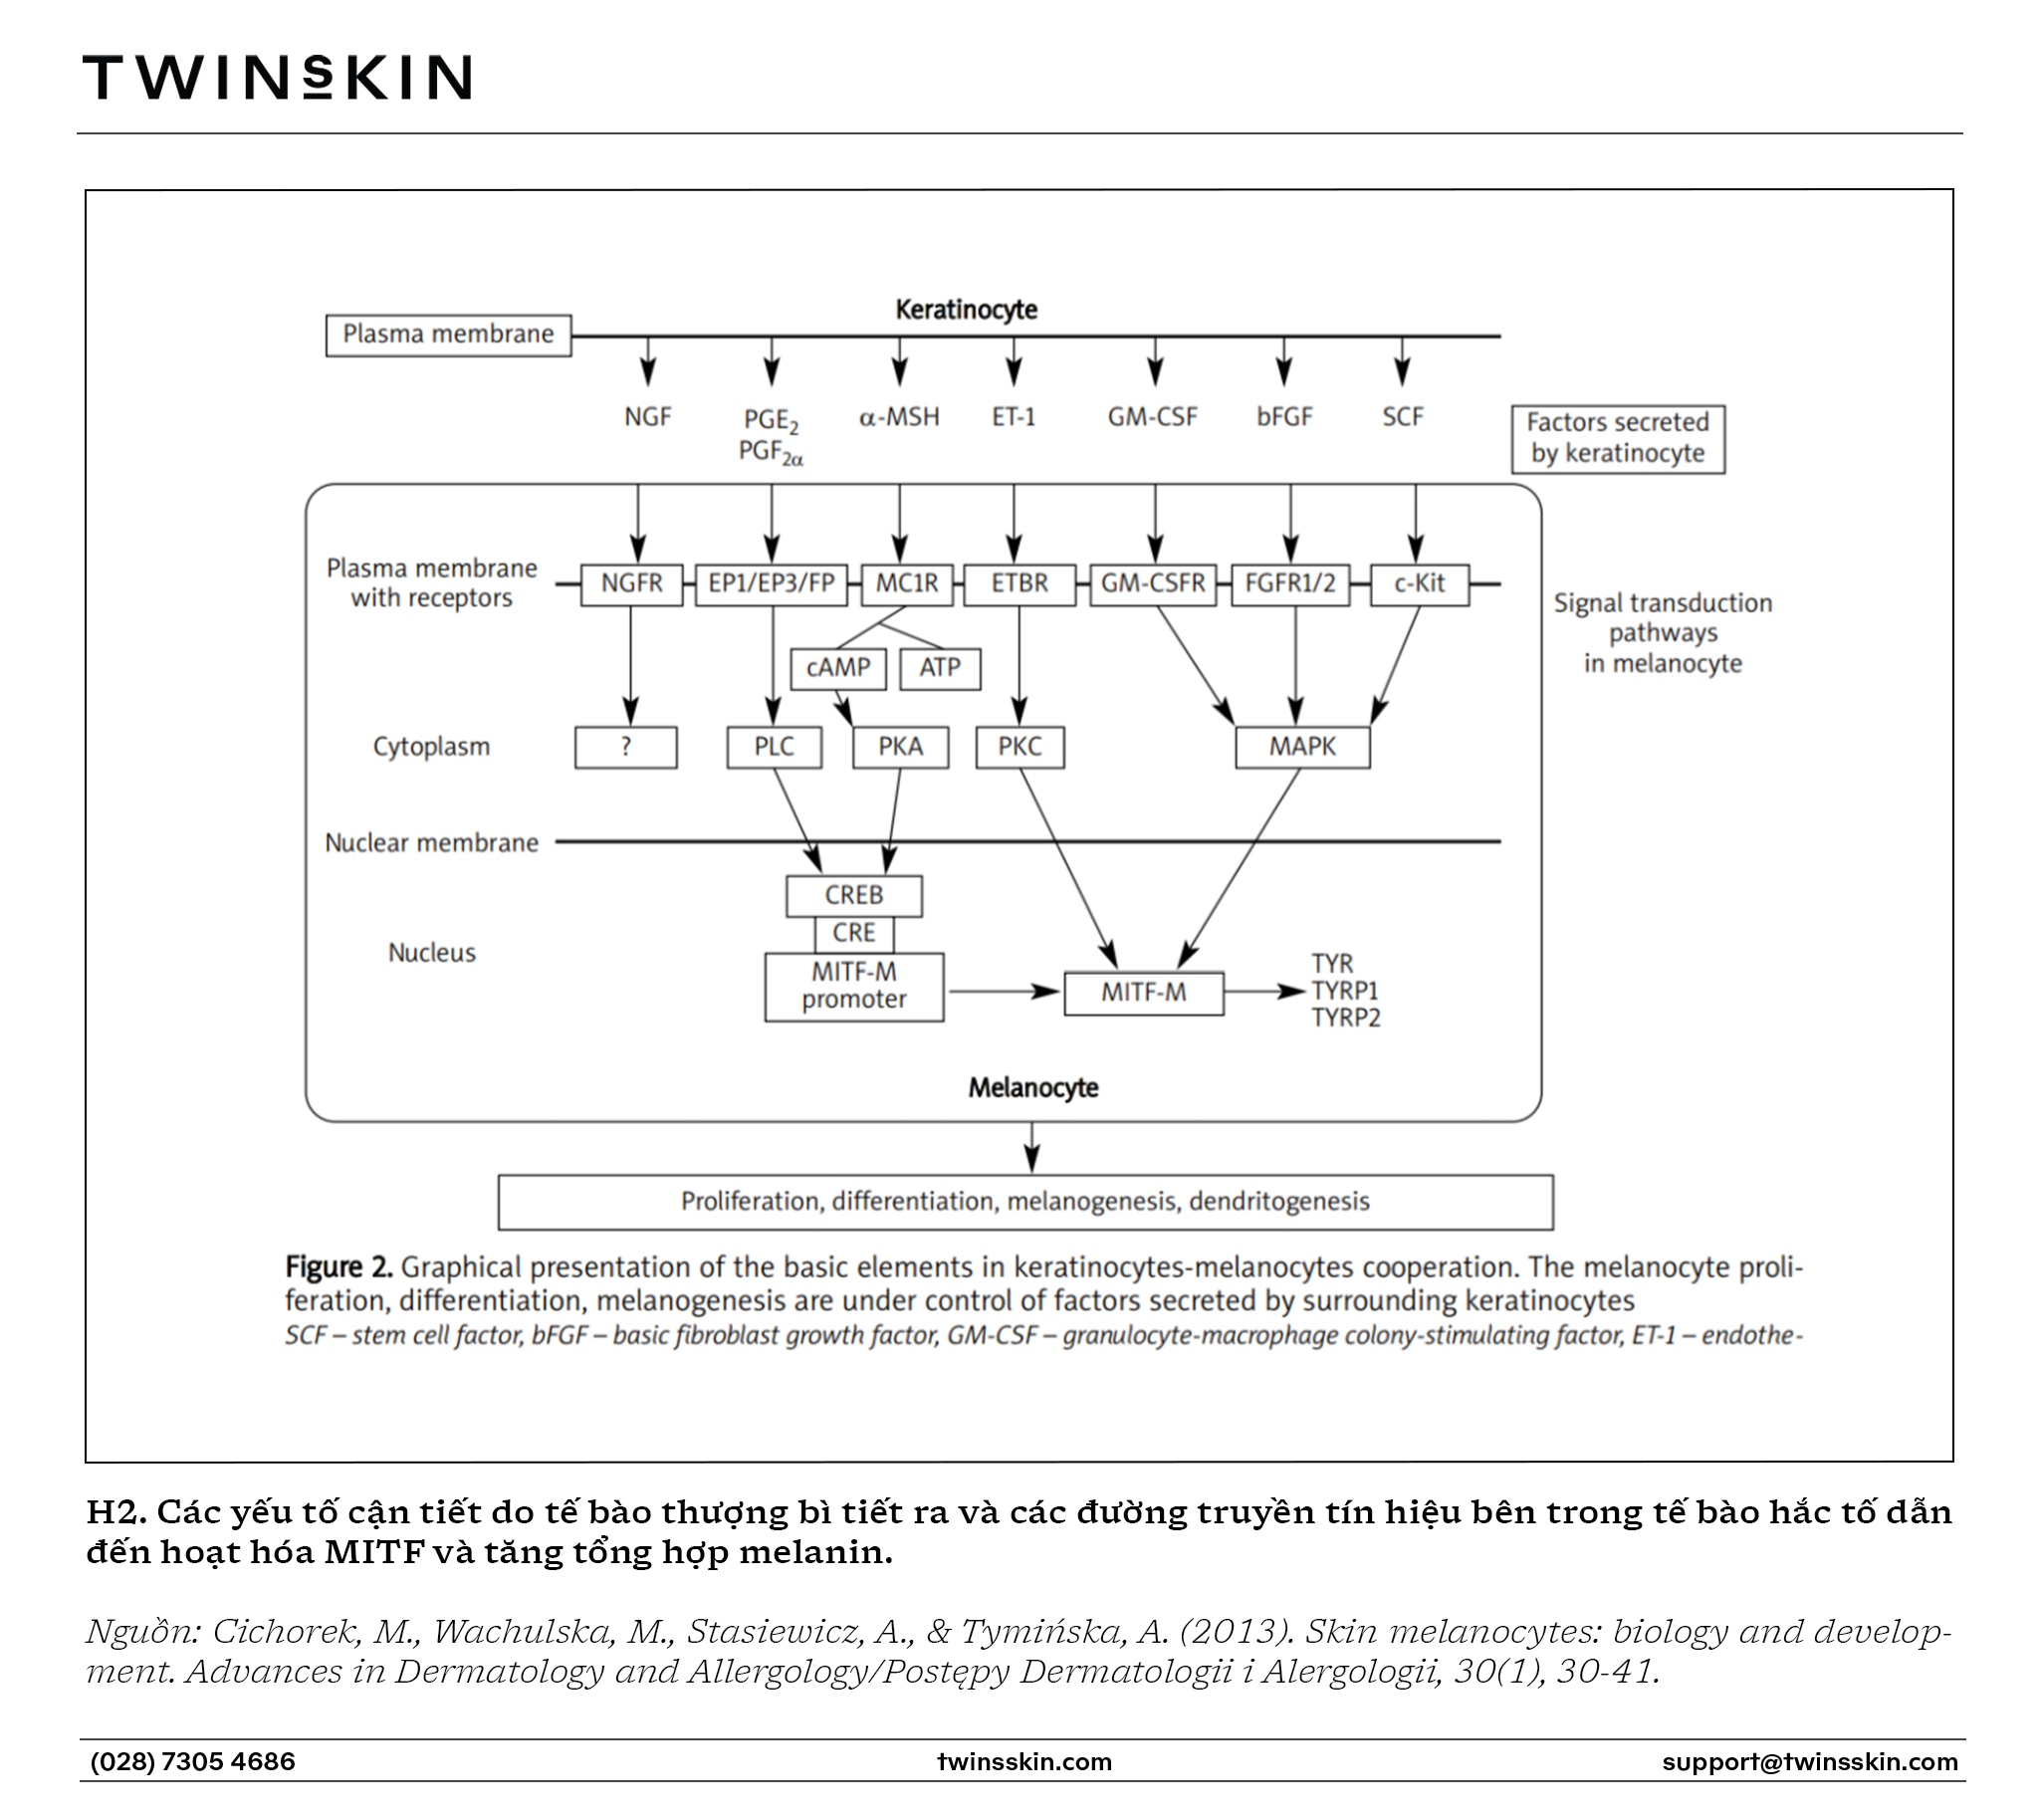
Tiếp xúc với tia UV làm tăng sản xuất yếu tố tăng trưởng nguyên bào sợi cơ bản như endothelin-1 (ET-1) bởi tế bào thượng bì, từ đó cũng kích thích sự phát triển của tế bào hắc tố. Nghiên cứu có đề cập đến ET-1 là một yếu tố có nguồn gốc từ tế bào sừng, được cho là có khả năng kích thích các tế bào hắc tố gần đó tăng sinh và sinh hắc tố.
Các nghiên cứu in vitro đã chỉ ra rằng việc điều trị bằng ET-1 trong hệ thống nuôi cấy tế bào hắc tố da cừu làm tăng số lượng tế bào hắc tố và hàm lượng melanin. Hơn nữa, sự biểu hiện của yếu tố phiên mã liên quan đến bệnh microphthalmia (MITF – Microphthalmia associated transcription factor), thụ thể melanocortin 1 (MC1R), tyrosinase (TYR) và thụ thể endothelin B (ERB) trong tế bào hắc tố cũng được điều hòa tăng lên bởi ET-1.
Nghiên cứu của Carolina Nunhez da Silva và cộng sự vào năm 2023, trên da của người bị nám, người ta ghi nhận tín hiệu ET-1 trong lớp thượng bì cao hơn rõ rệt so với vùng da lành ngay bên cạnh, cả ở lớp gai, lớp đáy lẫn trong chính tế bào hắc tố. Trong khi đó, các thụ thể endothelin (ERA, ERB) trên tế bào hắc tố không khác biệt nhiều giữa vùng nám và vùng không nám.
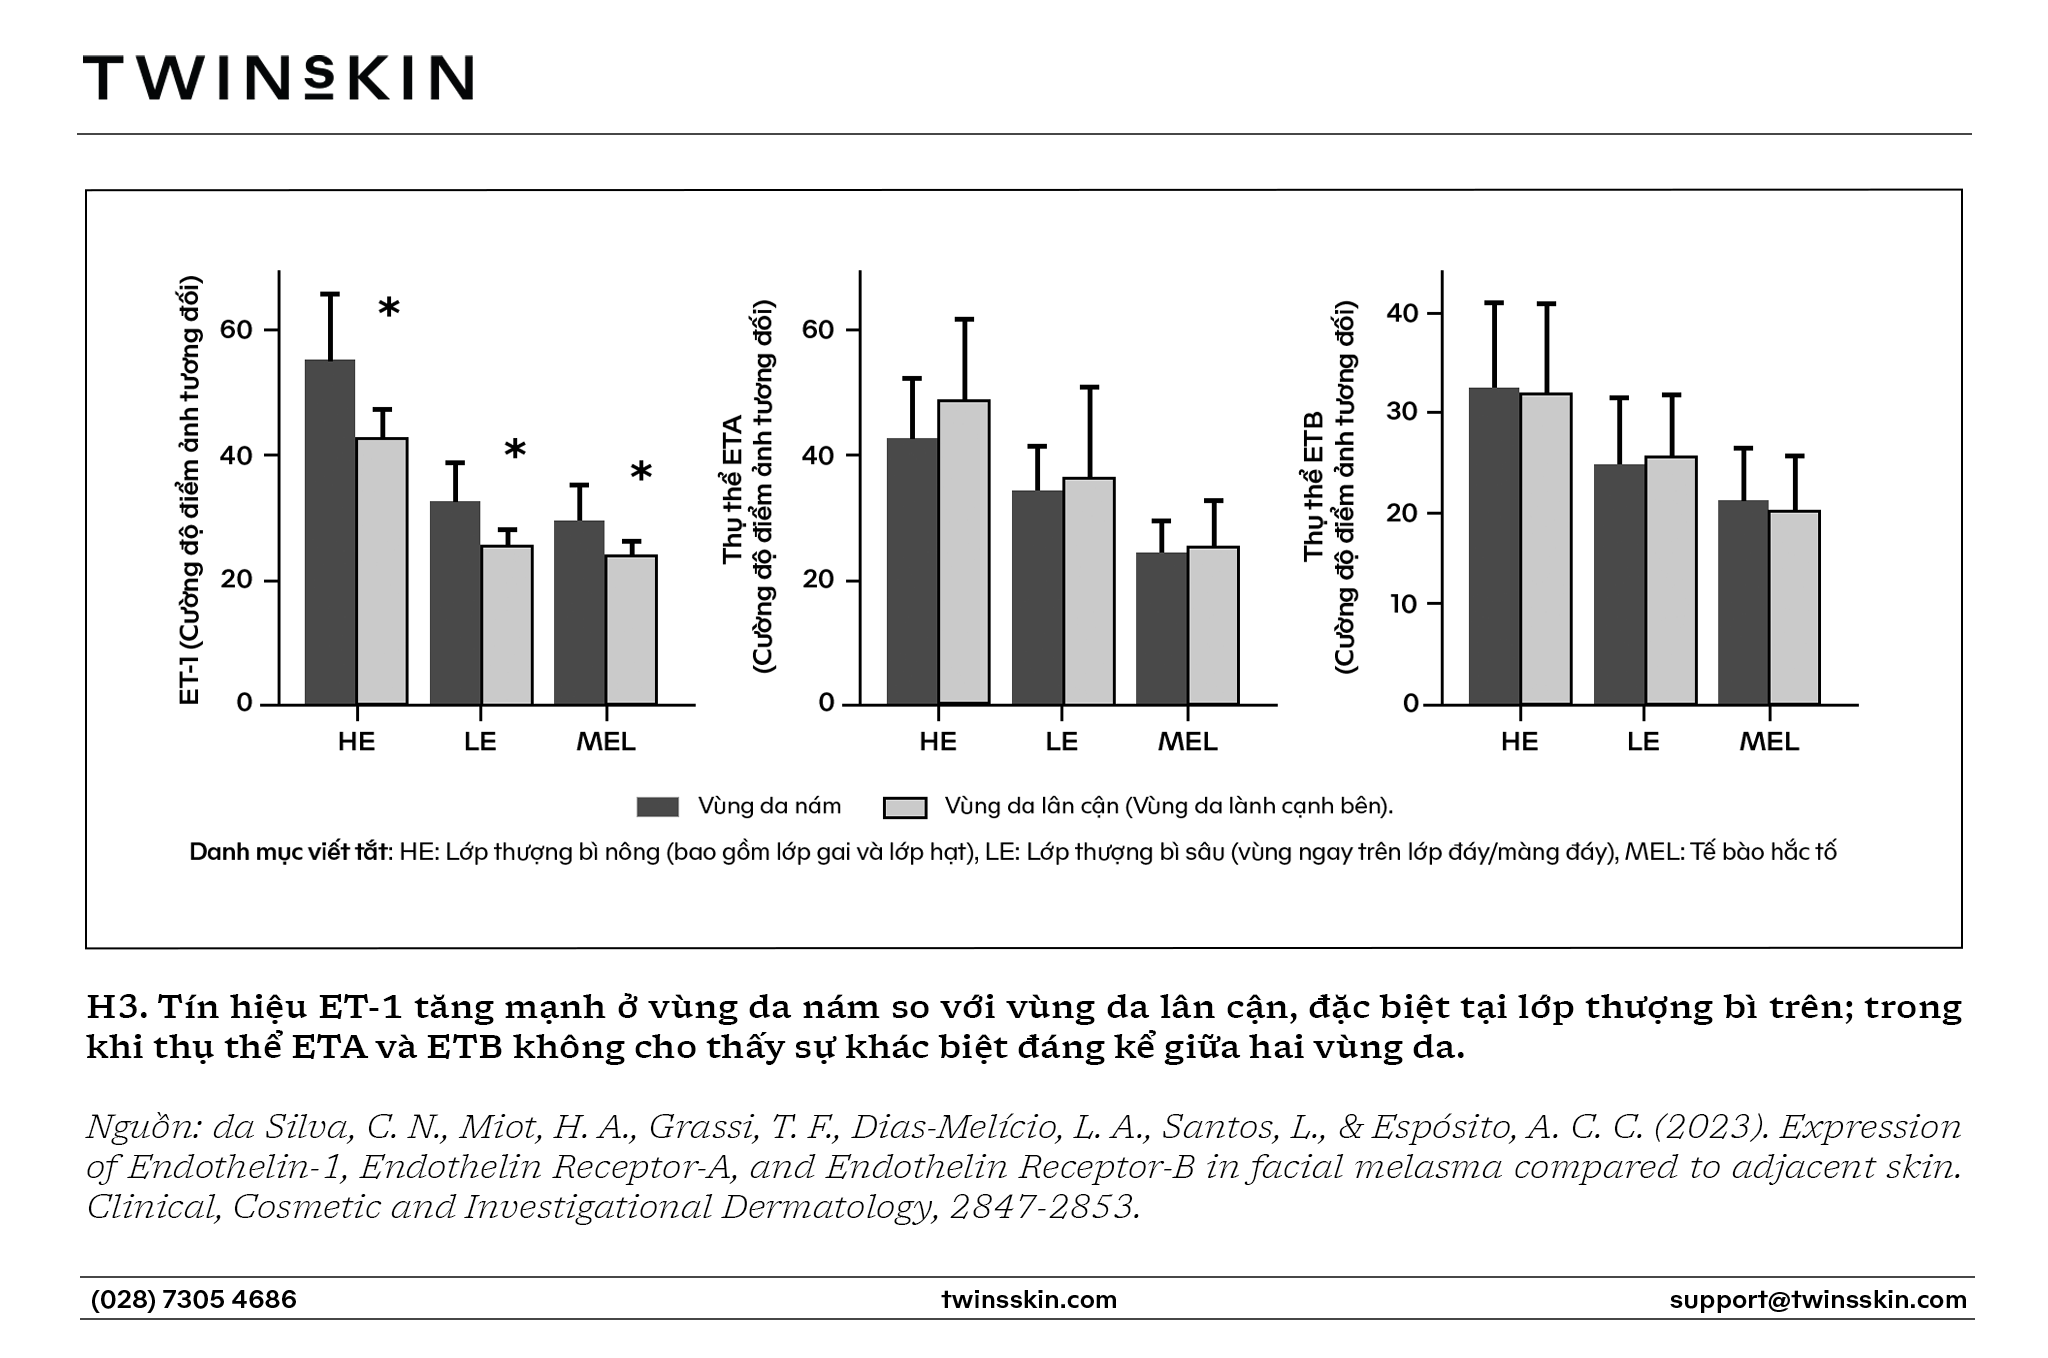
Điều này gợi ý rằng “nguồn phát” ET-1 từ tế bào thượng bì mới là điểm thay đổi chính, liên tục kích hoạt tế bào hắc tố làm việc quá sức. Từ các dữ liệu này, có thể thấy rõ: dưới tác động của UV, chính tế bào thượng bì là bên “chủ động ra tín hiệu”, còn tế bào hắc tố là bên “nhận lệnh và đáp ứng”.
Nám vì thế không chỉ là câu chuyện tế bào hắc tố bỗng dưng hoạt động quá mức, mà là kết quả của cả một chuỗi tín hiệu bất thường xuất phát từ tế bào thượng bì trong hệ sinh thái vi mô của da. Đồng thời, những thay đổi biểu bì như rối loạn chức năng hàng rào và vận chuyển melanosome bất thường làm trầm trọng thêm tình trạng tích tụ melanin.
1.2. Sự tương tác giữa trung bì và thượng bì: Mối quan hệ giữa nguyên bào sợi, tế bào miễn dịch với tế bào hắc tố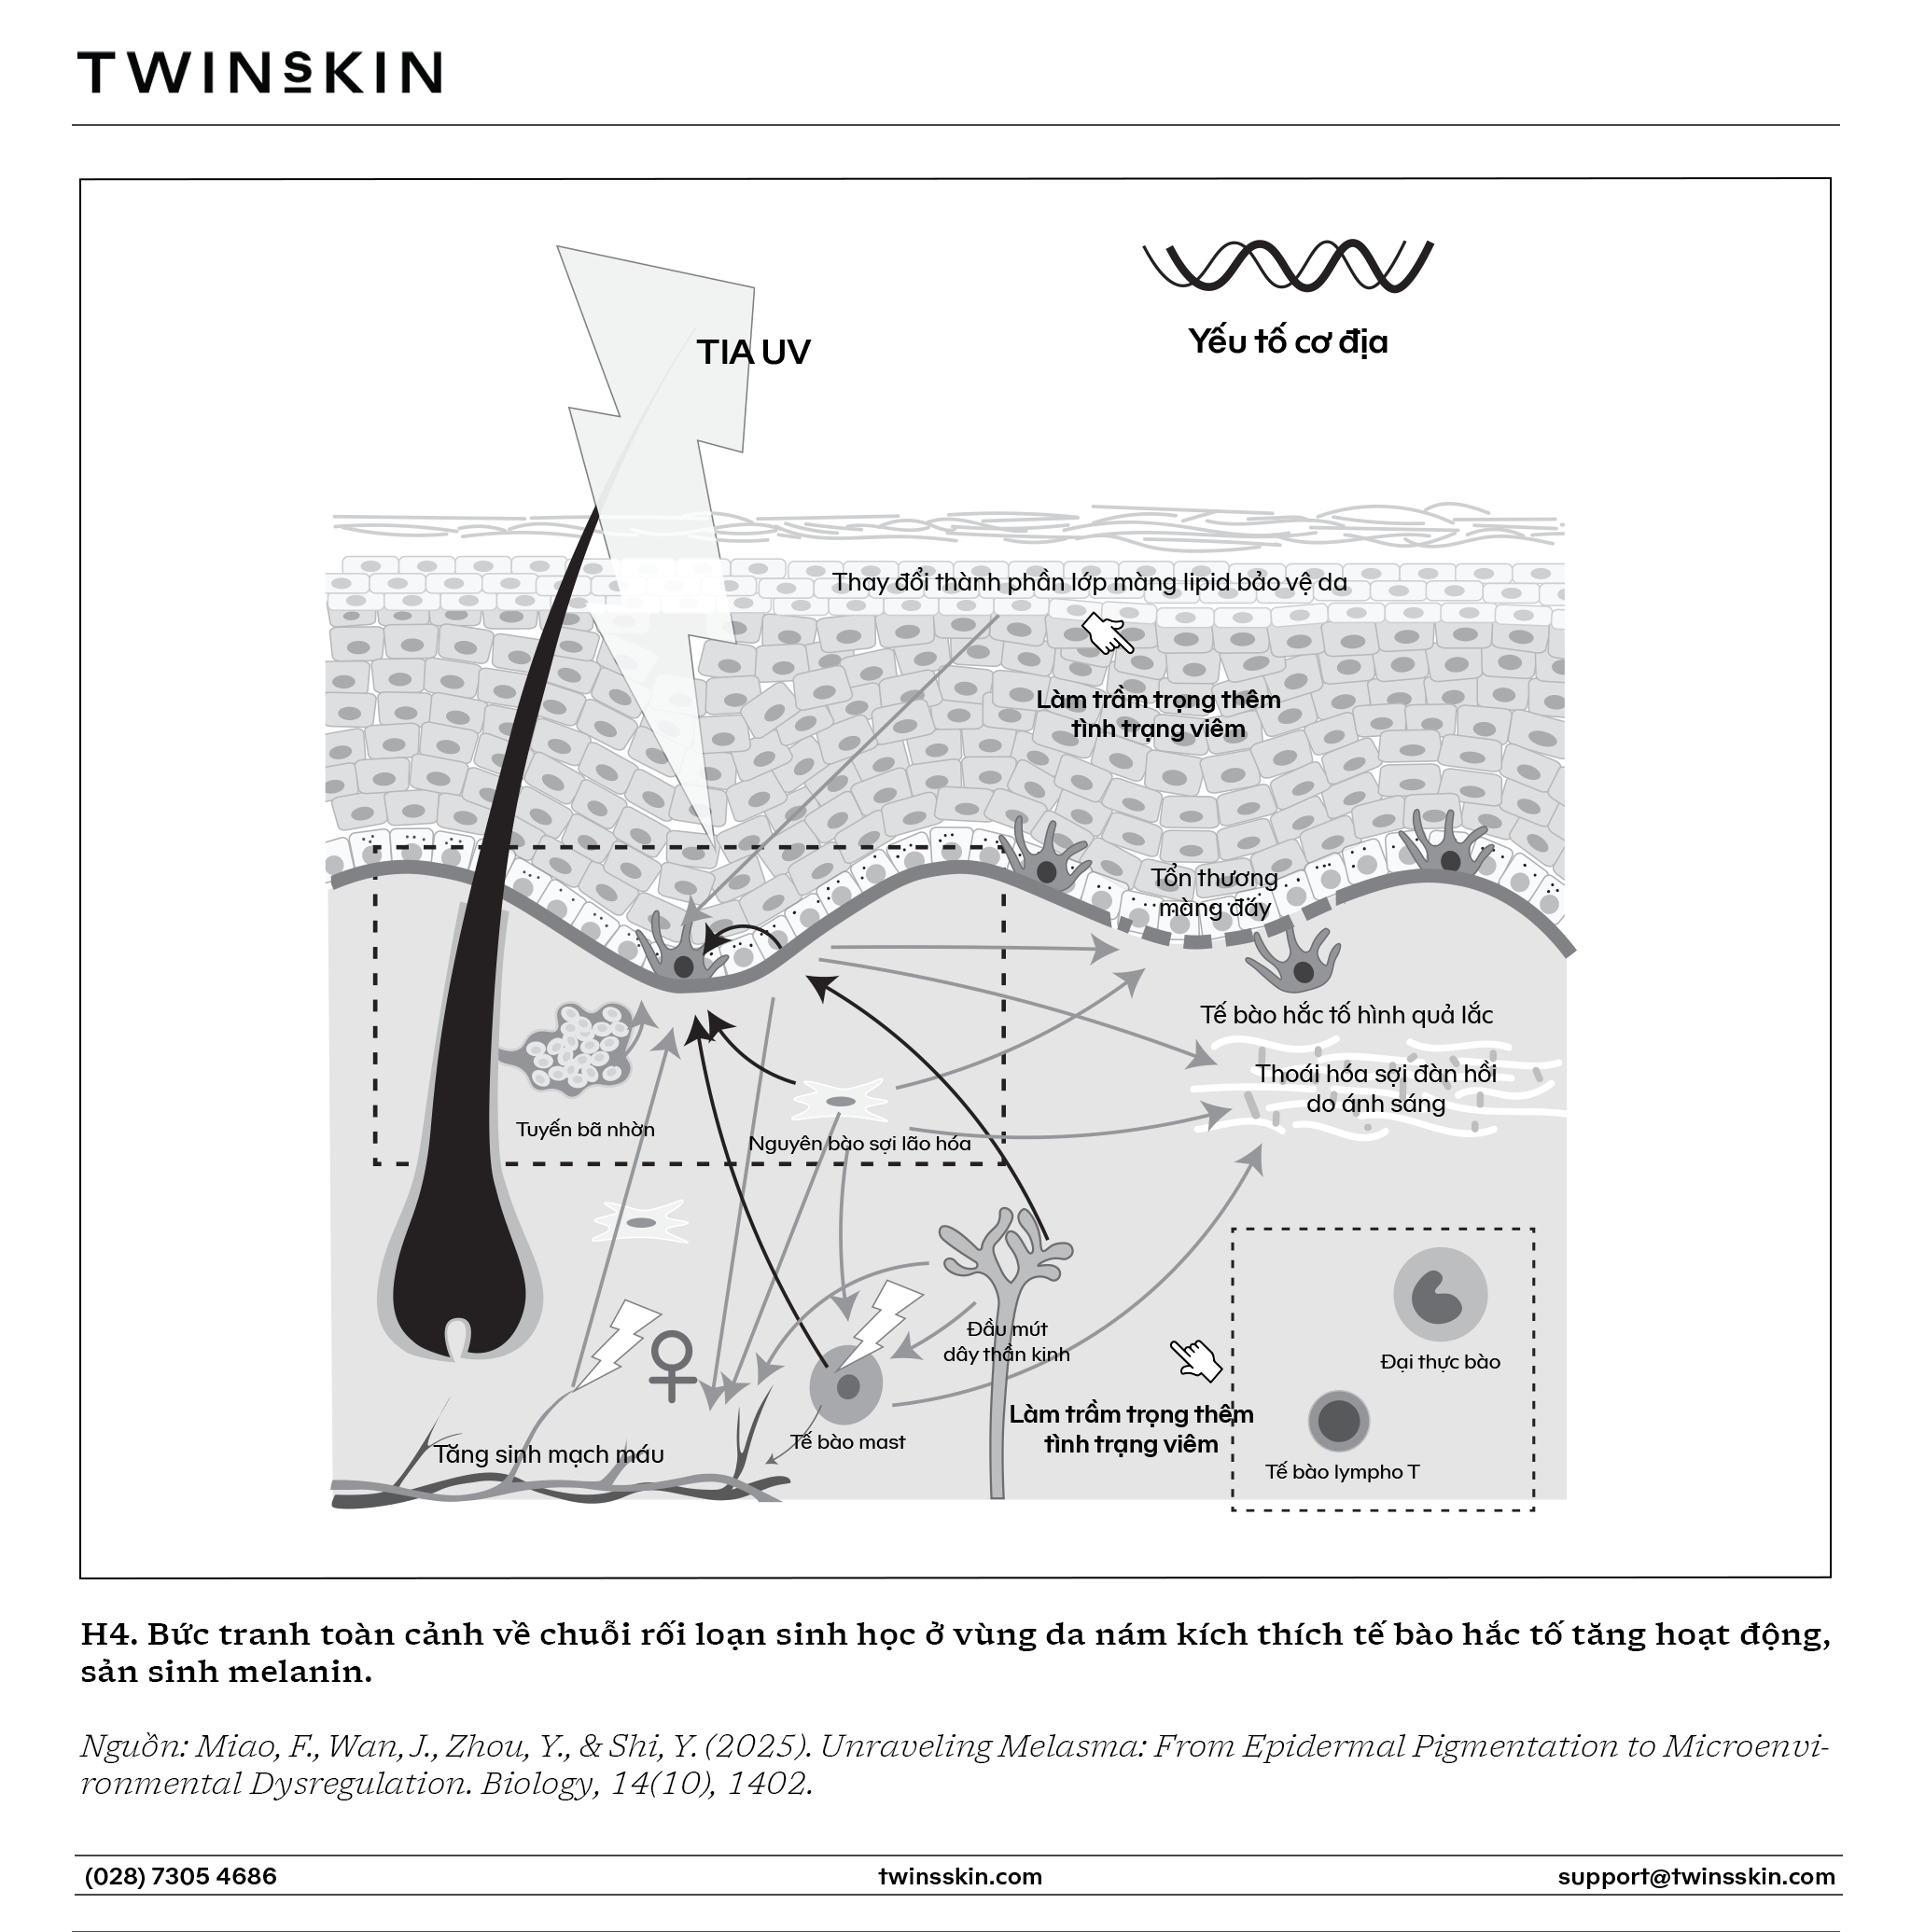
Hầu hết các nghiên cứu trước đây về điều hòa sắc tố da đều tập trung vào tế bào hắc tố – tế bào tổng hợp melanin – và các tế bào thượng bì lân cận – tế bào tiếp nhận và phân bố sắc tố lên các lớp thượng bì phía trên. Mặc dù nơi sinh sống của tế bào hắc tố là ở thượng bì nhưng không có nghĩa là chúng không có sự tương tác với các yếu tố ở vùng trung bì bên dưới màng đáy. Trong những năm gần đây, sự quan tâm dành cho nguyên bào sợi tăng lên do khả năng tiết ra các yếu tố kích thích sinh sắc tố của chúng.
Nghiên cứu của Yinjuan Wang M.D vào năm 2017 phân tích vai trò cụ thể của nguyên bào sợi trung bì trong quá trình tạo sắc tố của tế bào hắc tố, cho rằng nguyên bào sợi tham gia vào tình trạng tăng sắc tố bệnh lý thông qua sự thay đổi biểu hiện của nhiều yếu tố khác nhau. Nguyên bào sợi thể hiện tính năng động rất lớn trong quá trình tạo sắc tố biểu bì và tham gia tích cực vào sự “đối thoại” tín hiệu giữa tế bào hắc tố và tế bào thượng bì (keratinocyte).
Mối liên kết cận tiết giữa nguyên bào sợi bì và tế bào hắc tố cũng đóng vai trò quan trọng trong cơ chế tăng sắc tố ở nám. Khi chiếu tia UV lặp lại sẽ kích thích nguyên bào sợi tiết yếu tố tế bào gốc SCF (Stem Cell Factor) dạng hòa tan – trực tiếp hoặc gián tiếp thông qua các cytokine do tế bào sừng tiết ra.
Nghiên cứu của Kang và cộng sự phát hiện biểu hiện SCF trong lớp bì của vùng da bị nám tăng lên đáng kể, và thụ thể của nó là c-kit trên tế bào hắc tố cũng được tăng biểu hiện trong lớp bì vùng nám, qua nhuộm hoá mô miễn dịch và kỹ thuật RT-PCR.
Nguyên bào sợi tách ra từ vùng da bị nám biểu hiện yếu tố tăng trưởng thần kinh NGF-β (Nerve Growth Factor) nhiều hơn so với nguyên bào sợi lấy từ vùng da lân cận không tổn thương. Gần đây, các nhà nghiên cứu cho thấy biểu hiện WIF-1 (Wnt Inhibitory Factor) giảm rõ rệt trong tổn thương nám và sự giảm điều hoà WIF-1 trong nguyên bào sợi được báo cáo là có thể kích thích biểu hiện tyrosinase và quá trình vận chuyển melanosome.
Theo nghiên cứu mới nhất vào năm 2025 của Fang Miao và cộng sự, người ta nhận thấy, các đặc điểm chính của da bị nám da giống với các đặc điểm của da bị lão hóa mãn tính do ánh sáng như nguyên bào sợi lão hoá kèm theo sự phá vỡ vùng màng đáy, tăng mạch máu và số lượng tế bào mast ở lớp trung bì tăng cao.
Ngoài ra, các tổn thương nám da còn chứa tình trạng viêm dưới lâm sàng: thâm nhiễm tế bào T CD4+, đại thực bào và tế bào mast có thể nhìn thấy, kèm theo nồng độ cao các chất trung gian gây viêm như Interleukin-17 (IL-17) và Cyclooxygenase-2 (COX-2), ngụ ý một thành phần miễn dịch tự duy trì việc sản xuất sắc tố.
Trong bệnh nám da, số lượng tế bào mast tăng lên ở lớp hạ bì là một phát hiện mô học nhất quán, cho thấy vai trò quan trọng của chúng trong quá trình sinh bệnh của bệnh. Chúng giải phóng một loạt các “hỗn hợp” chất trung gian mạnh, bao gồm histamine, tryptase, cytokine và các yếu tố tăng trưởng. Các chất trung gian này không chỉ có thể kích thích trực tiếp các tế bào hắc tố mà còn ảnh hưởng đến vi môi trường da xung quanh, do đó góp phần thúc đẩy quá trình sinh hắc tố.
Ví dụ, tế bào Mast tiết ra Histamine có thể trực tiếp gắn lên thụ thể H2 trên màng tế bào hắc tố và sau đó tham gia vào con đường kích thích sinh melanin theo trục H2 receptor – MITF – tyrosinase – melanin.
Ngoài ra, các chất trung gian có nguồn gốc từ tế bào mast có thể gây ra phản ứng viêm nội mô có khả năng góp phần làm tăng mạch máu được quan sát thấy trong nám da. Hơn nữa, tế bào mast biểu hiện các tương tác mật thiết với các dây thần kinh cảm giác, góp phần gây ra tình trạng viêm thần kinh ở da.
Các nghiên cứu gần đây cũng chỉ ra rằng các yếu tố hoạt động do tế bào bã nhờn SZ95 giải phóng có thể kích thích sự tăng sinh của tế bào hắc tố biểu bì ở người và thúc đẩy sự hình thành các sợi nhánh tua gai chuyển sắc tố (dendrite).
Cụ thể, khi các tế bào bã nhờn được chiếu xạ bằng tia UVA không chỉ sản xuất và tăng cường các yếu tố α-MSH, EDN1, SCF và b-FGF mà còn thúc đẩy quá trình sinh tế bào hắc tố và kích hoạt tình trạng viêm và lão hóa da, đều ảnh hưởng đến sinh bệnh học nám da.
Những thay đổi về da này không phải là ngẫu nhiên mà ngày càng được công nhận là những yếu tố quan trọng góp phần vào việc khởi đầu và duy trì quá trình sinh hắc tố trong nám da. Cụ thể, những thay đổi ở lớp biểu bì, trung bì và rối loạn miễn dịch – không xảy ra và hoạt động độc lập mà được đan xen thông qua các con đường truyền tín hiệu.
Một số con đường truyền tín hiệu điển hình từ các tế bào lân cận đến tế bào hắc tố như Wnt/β-catenin và PI3K/Akt và các con đường stress oxy hóa cũng như được kiểm soát bởi sự dao động của hormone và các yếu tố môi trường.
Nhìn chung, những quan sát này cùng nhau giải thích cơ chế bệnh sinh phức tạp của nám – hoạt động như một rối loạn mãn tính của vi môi trường da, chứ không phải là một khiếm khuyết sắc tố đơn lẻ. Từ góc nhìn này, tế bào hắc tố chỉ còn là “người thi hành mệnh lệnh”, trong khi “kẻ chủ mưu” thực sự nằm ở những thay đổi âm thầm trong toàn bộ hệ sinh thái da. Chính sự thay đổi nhận thức đó đặt nền tảng cho việc xây dựng các chiến lược điều trị nám đa tầng, thay vì chỉ tập trung đơn tuyến vào tế bào hắc tố.
2. Rối loạn hệ thống tín hiệu truyền tin gây nám – Gần 30 phân tử tín hiệu “tình nghi” liên quan trực tiếp/ gián tiếp đến sự sinh melanin ở tế bào hắc tố.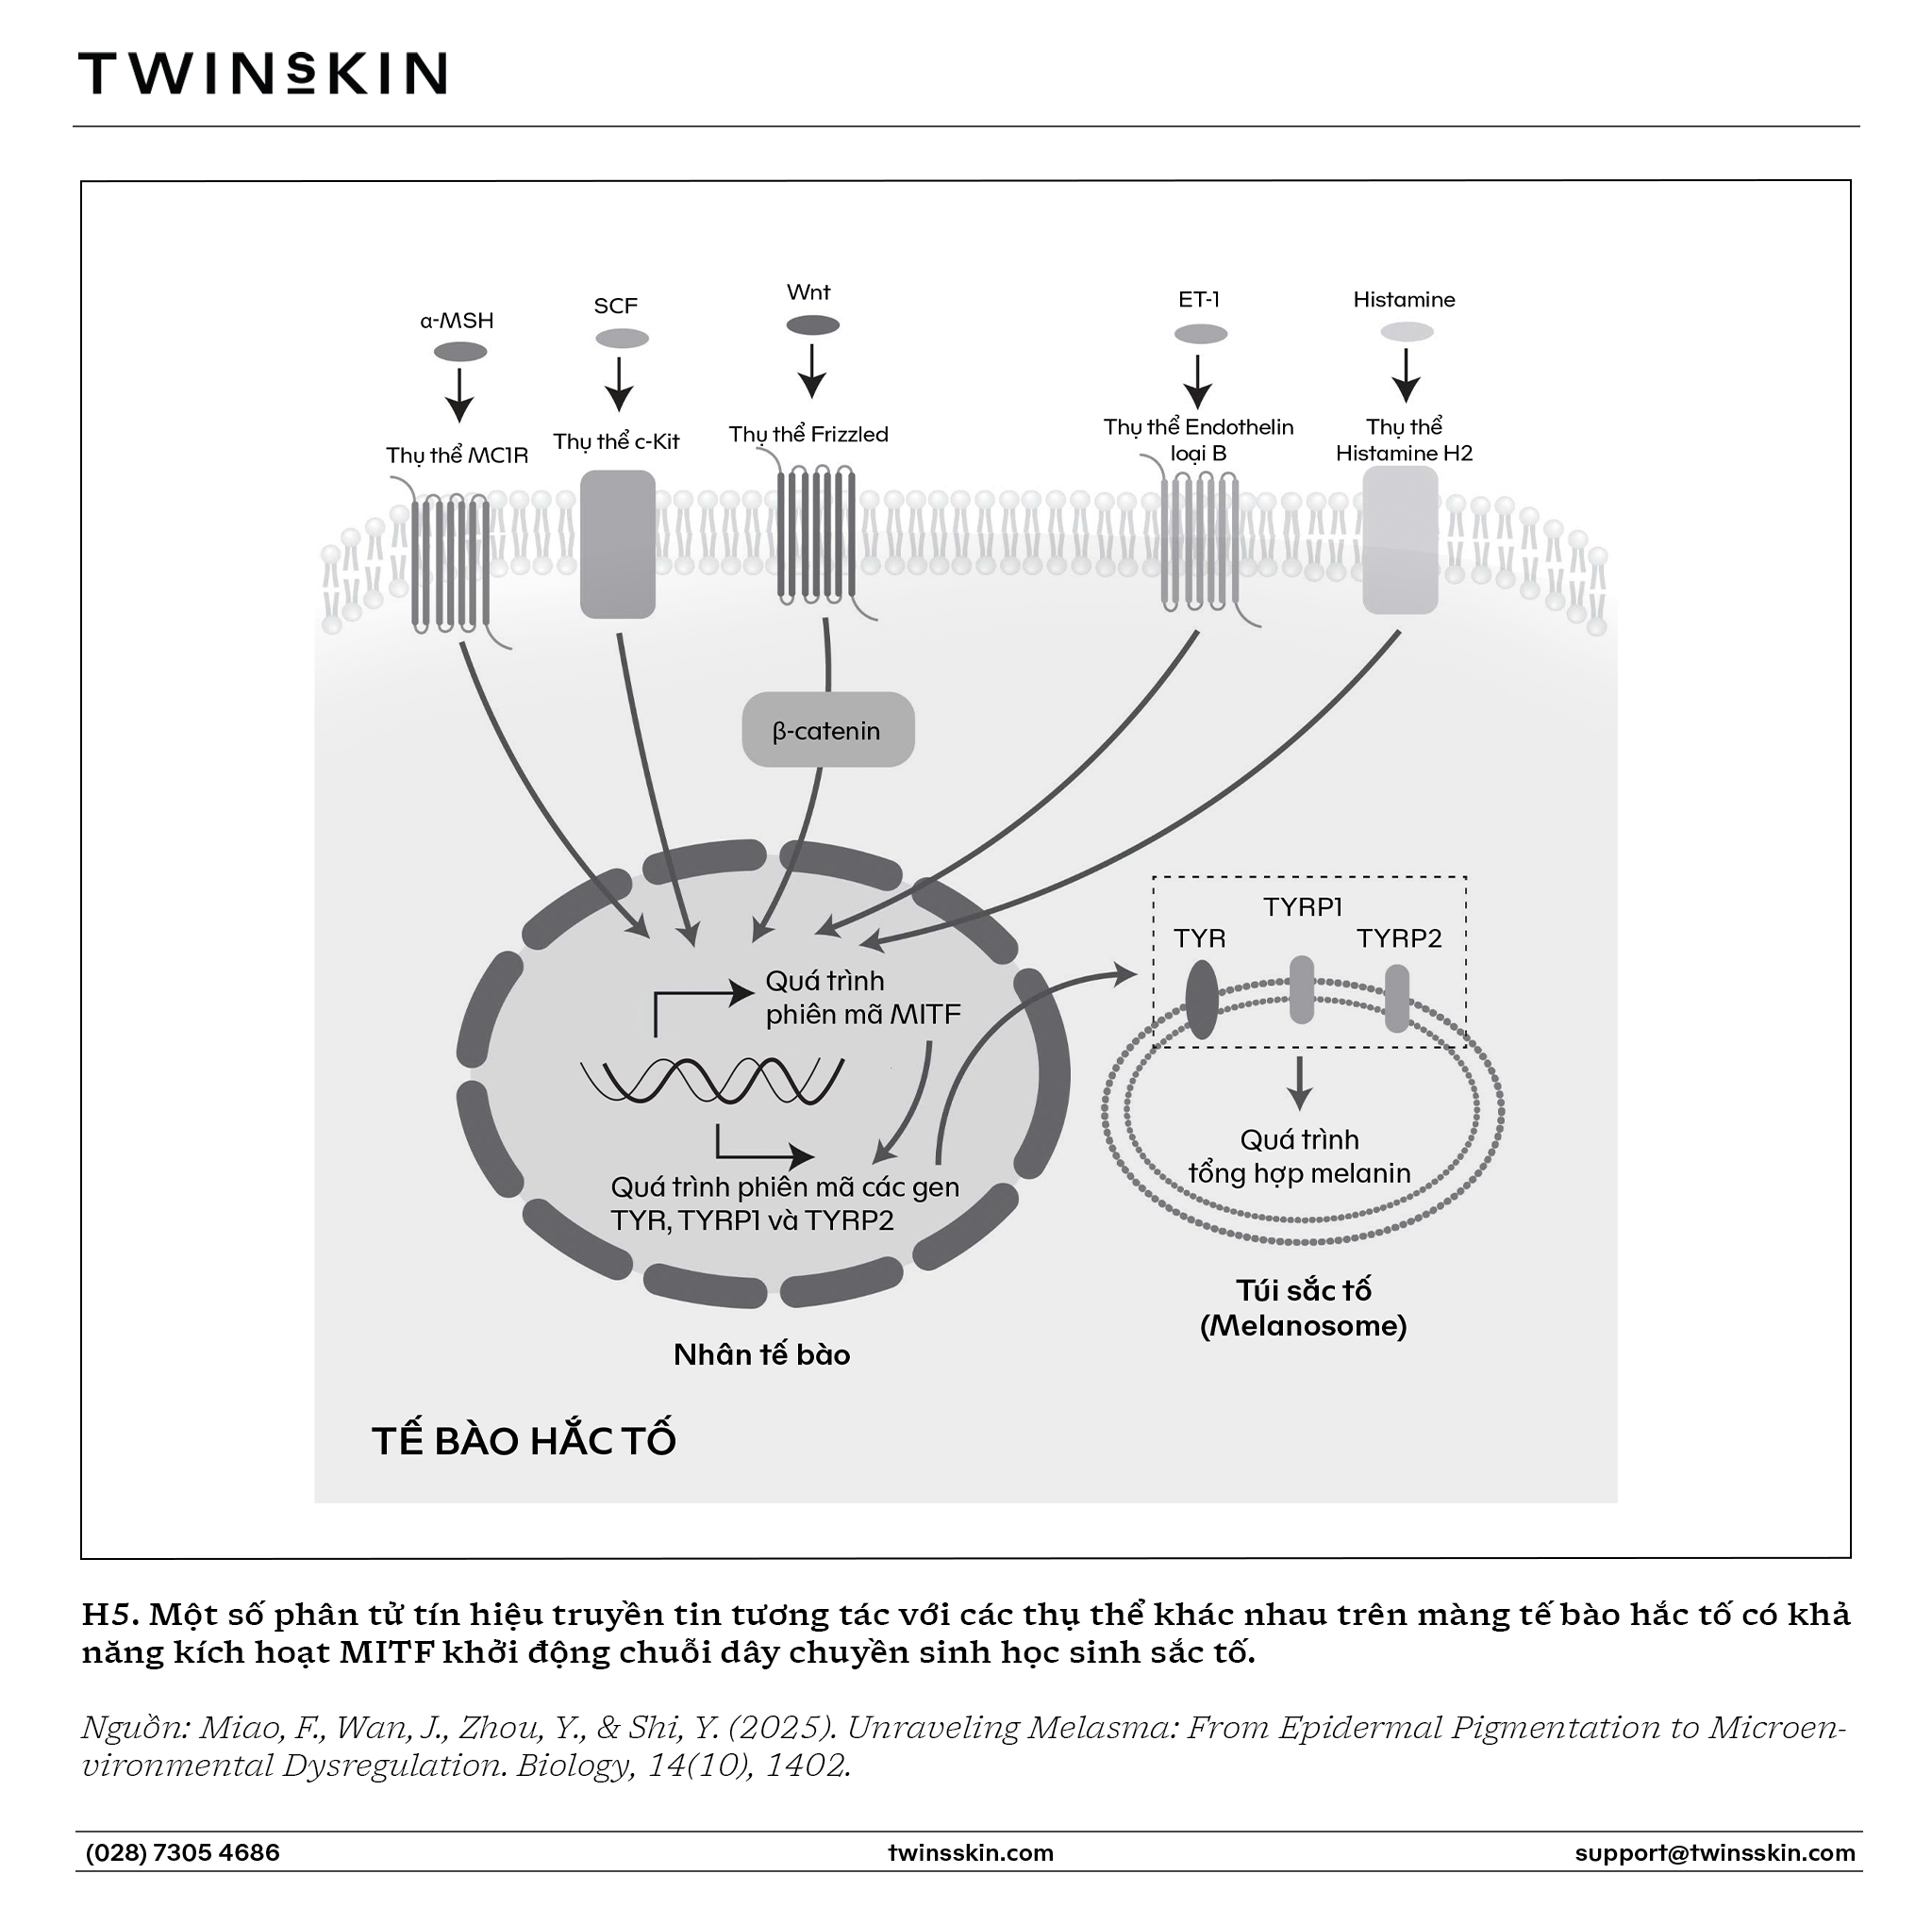
Khi hiểu được, cơ chế sinh nám không đơn thuần là “lỗi” của riêng tế bào hắc tố mà là sự rối loạn trong hệ thống giao tiếp tế bào da, chúng ta sẽ đặt ra câu hỏi: Vậy các tế bào này giao tiếp bằng cách thức gì? Và loại thông tin nào đặc trưng cho sinh bệnh học nám da.
Quá trình điều hòa sản xuất melanin rất phức tạp và bị chi phối bởi nhiều mạng lưới tín hiệu phối hợp hoạt động của tế bào hắc tố và sự tương tác của chúng với các tế bào xung quanh. Các yếu tố như hormone kích thích tế bào hắc tố α (αMSH), SCF, KGF và bFGF do các tế bào này tiết ra liên kết với thụ thể và cuối cùng hội tụ thành yếu tố phiên mã liên quan đến bệnh lý mắt nhỏ (MITF) – là “bộ chỉ huy” phiên mã các enzyme chính điều hòa sản xuất melanin – tyrosinase (TYR), protein liên quan đến tyrosinase 1 (TYRP1) và TYRP2.
Một thông tin sẽ khiến bạn kinh ngạc và bất ngờ, choáng ngợp là có hơn 30 phân tử tín hiệu “tình nghi” liên quan trực tiếp/ gián tiếp đến sự sinh melanin ở tế bào hắc tố đến từ các loại tế bào xung quanh như đã đề cập ở trên như tế bào thượng bì, nguyên bào sợi, tế bào Mast. Các con đường cốt lõi điều hòa MITF bao gồm thụ thể αMSH/melanocortin 1 (MC1R), Wnt/β-catenin, PI3K/Akt, cAMP/PKA và các con đường tín hiệu trung gian SCF/c-kit.
Như ở phần 1, chúng ta đã biết trong đơn vị melanin biểu bì, tế bào thượng bì đóng vai trò là “người chỉ huy”, liên tục tiết ra một phổ rộng các cytokine, hormone và yếu tố tăng trưởng để điều khiển mọi khía cạnh hành vi của tế bào hắc tố: từ sự sống còn, phân chia, hình thành tua vận chuyển sắc tố (dendrite) đến tổng hợp melanin.
Trong đó, Endothelin-1 (ET-1) là một ví dụ điển hình cho thấy tế bào thượng bì kiểm soát hình thái của tế bào hắc tố. Khi da tiếp xúc với tia UVB, tế bào thượng bì ngay lập tức tăng tiết ET-1. ET-1 gắn vào thụ thể endothelin A (ERA) hoặc thụ thể endothelin B (ERB).
Sự liên kết này kích hoạt các chuỗi tín hiệu nội bào, điều hòa sự tăng sinh và sinh hắc tố của tế bào hắc tố. Tín hiệu này dẫn đến sự tái cấu trúc bộ khung tế bào (cytoskeleton), làm cho tế bào hắc tố vươn dài các tua dendrite để tăng diện tích tiếp xúc với tế bào thượng bì, tối ưu hóa việc chuyển giao melanin.
Ngoài ra, tế bào thượng bì còn hoạt động như một “tuyến nội tiết” tại chỗ của da. Dưới tác động của tia UV hoặc các yếu tố gây viêm (IL-1α), chúng tăng cường biểu hiện gen POMC (Proopiomelanocortin). POMC sau đó được cắt bởi các enzyme prohormone convertase để tạo ra các peptide hoạt tính sinh học như α-MSH (Melanocyte Stimulating Hormone) và ACTH (Adrenocorticotropic Hormone).
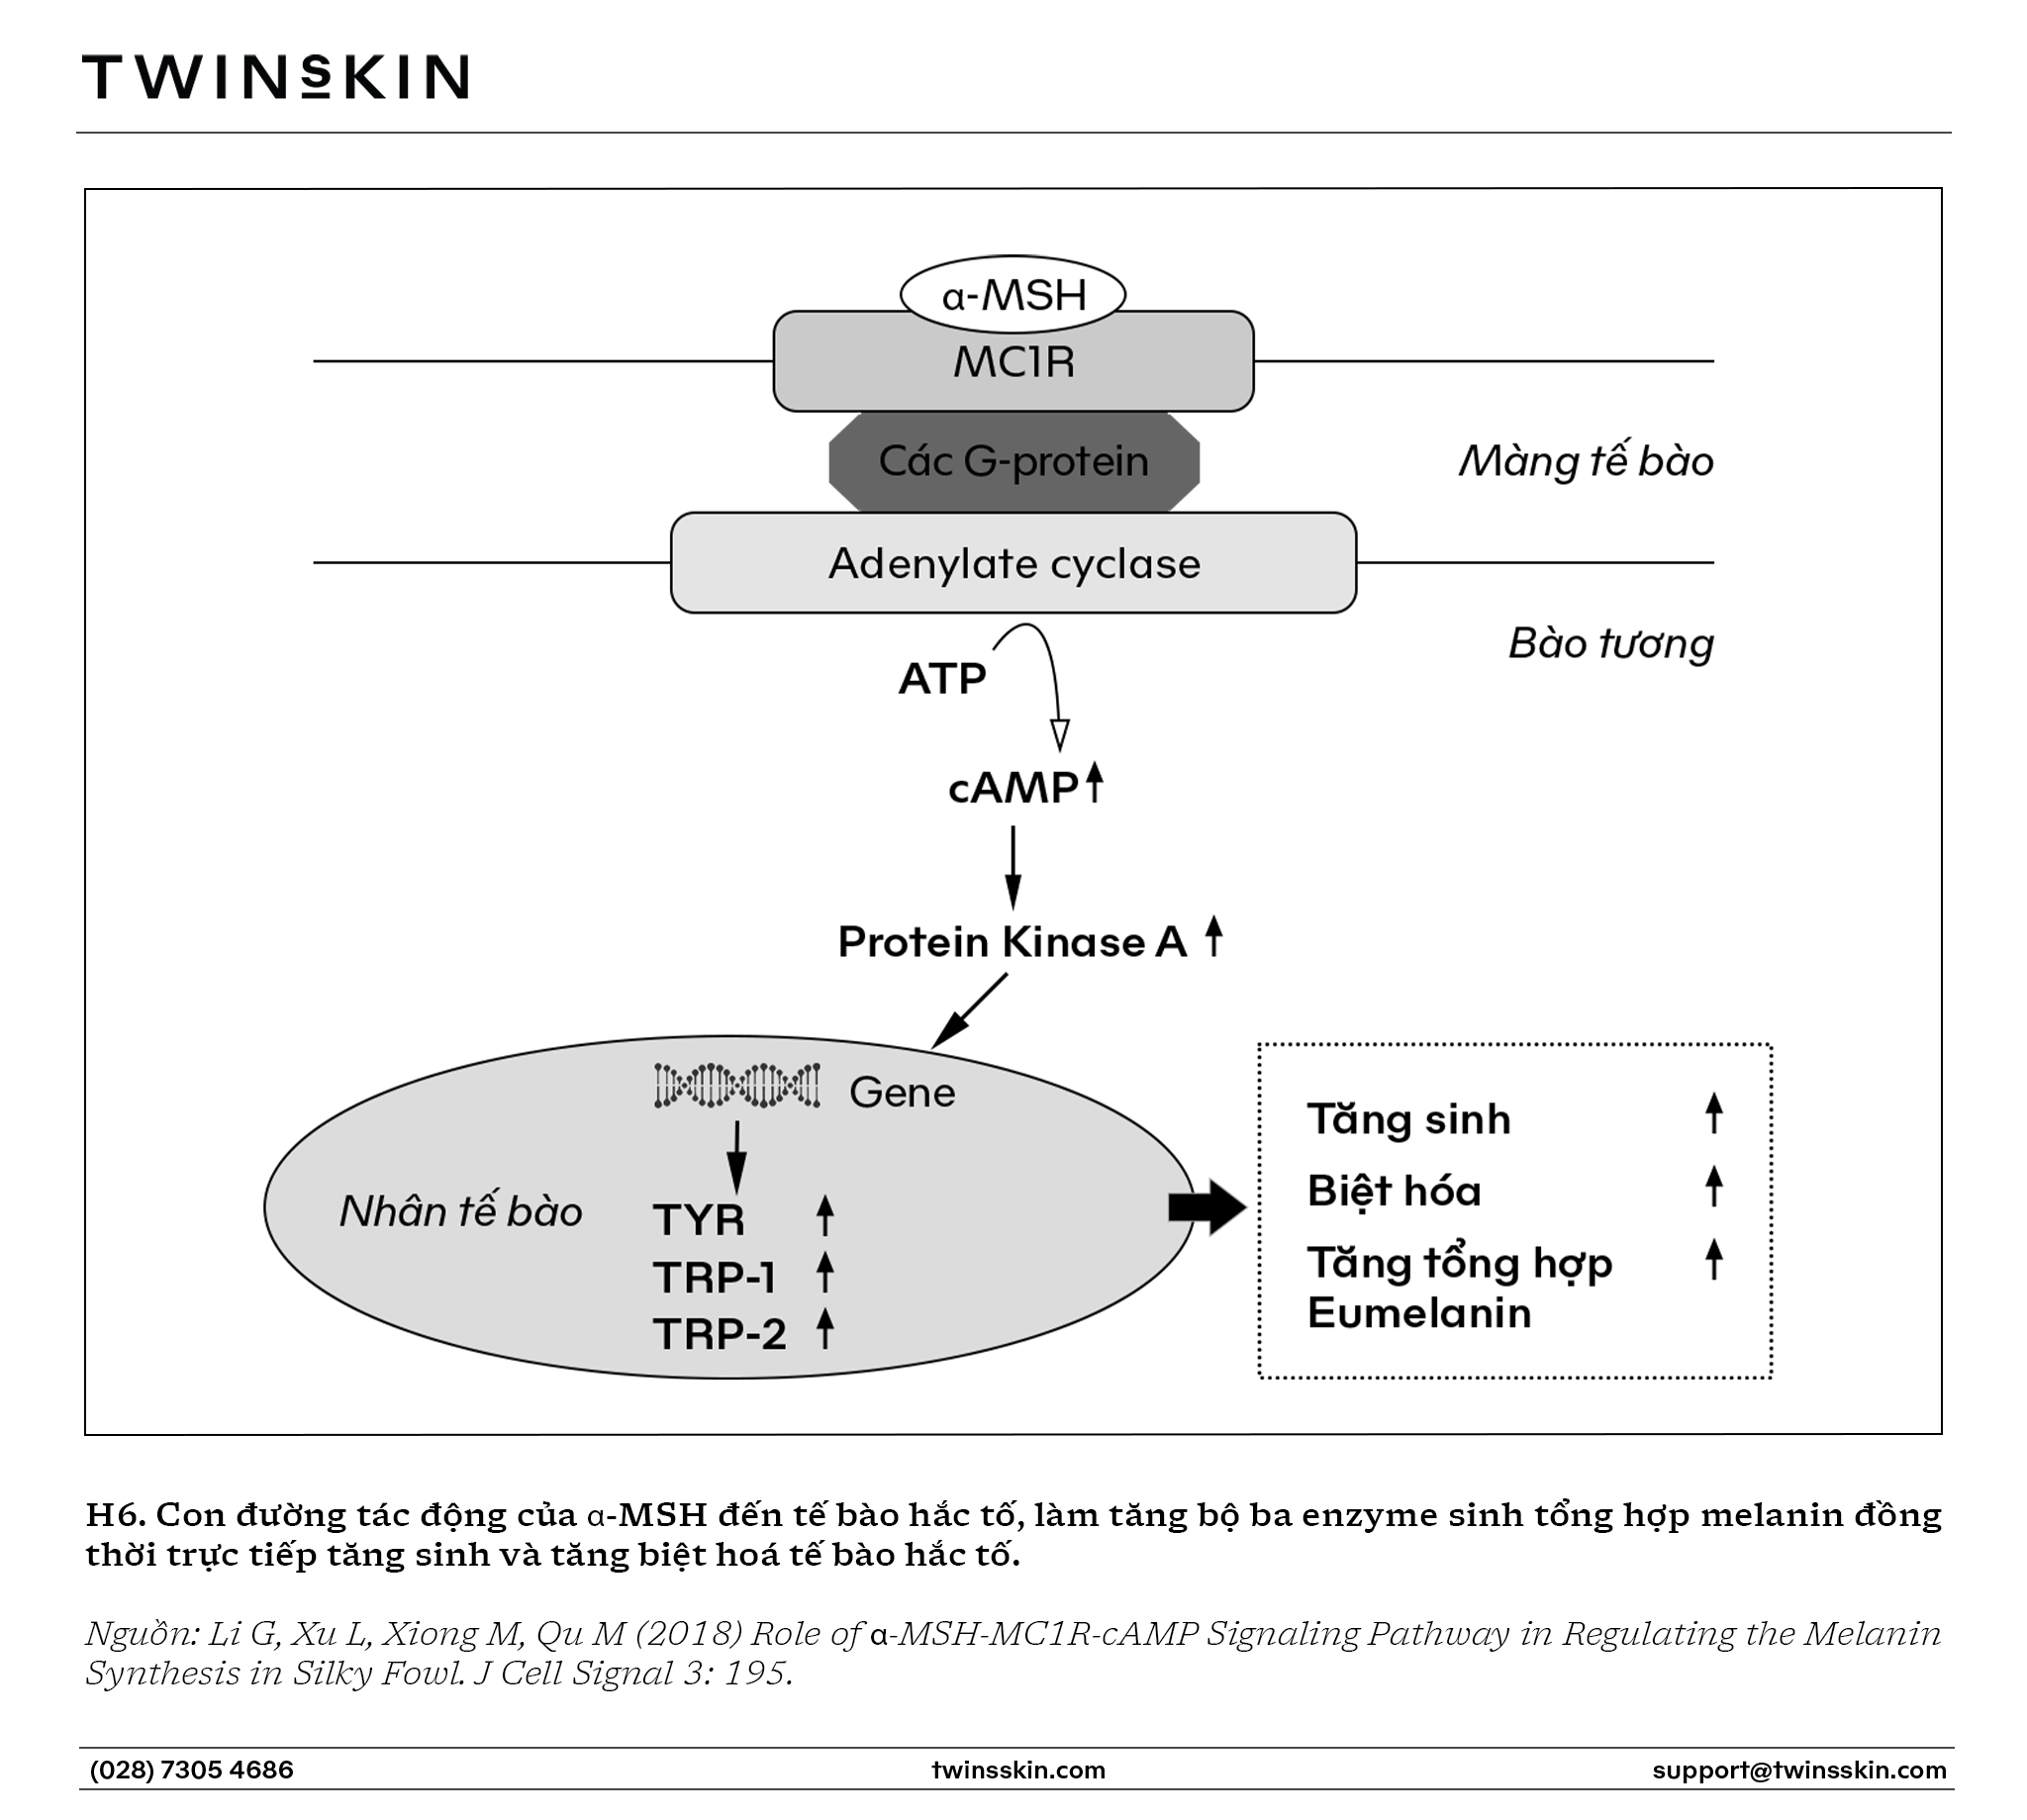
Khi α-MSH gắn vào thụ thể MC1R trên màng tế bào hắc tố, nó kích hoạt enzyme adenylate cyclase, làm tăng nồng độ cAMP nội bào. cAMP là “đồng tiền năng lượng” của tín hiệu sinh sắc tố, dẫn đến kích hoạt yếu tố phiên mã MITF. MITF đi vào nhân tế bào và khởi động quá trình phiên mã của các gen quy định enzyme tạo sắc tố (Tyrosinase, TRP-1, TRP-2), dẫn đến việc sản xuất melanin bảo vệ da. Quá trình này chứng minh rằng tế bào hắc tố thực hiện việc sản xuất melanin như một mệnh lệnh sinh tồn từ tế bào thượng bì để bảo vệ DNA của nó.
Điểm đặc biệt trong nám da là tế bào thượng bì lúc này chịu tác động mạn tính của tia UV, viêm hoặc sự rối loạn nội tiết khiến chúng chuyển sang trạng thái kiểu hình “bài tiết” dù đã không còn tác động trực tiếp từ các tác nhân. Điều này khiến tế bào thượng bì vẫn liên tục giải phóng các yếu tố kích thích như ET-1, α-MSH, SCF đến tế bào hắc tố.
Khi nhận được tín hiệu giả về một “tình trạng khẩn cấp” liên tục, phản ứng sinh học của tế bào hắc tố là tăng cường bộ máy tổng hợp melanosome (qua MITF), vươn dài tua vận chuyển sắc tố dendrite (qua ET-1/PKC) và bơm sắc tố vào tế bào thượng bì để bảo vệ nhân tế bào. Sự tăng sinh melanin này là một cơ chế bảo vệ sinh học, nhưng khi diễn ra quá mức và không kiểm soát, nó biểu hiện thành bệnh lý.
Ngoài ra, việc kích thích sinh melanin trong con đường sinh nám có thể xuất phát từ con đường Wnt/β-catenin, được chuyển hóa bởi thụ thể frizzled, rất quan trọng đối với sự phát triển và tăng sinh của tế bào hắc tố và sự rối loạn điều hòa của nó có thể dẫn đến sự thay đổi quá trình sinh tế bào hắc tố.
WIF-1 là một tín hiệu từ trục Wnt/β-catenin, vốn được coi là chất ức chế Wnt, nhưng trong nghiên cứu trên tế bào hắc tố người, nó lại hoạt hóa đường β-catenin, kích thích MITF và tyrosinase, làm tế bào hắc tố tăng sản xuất melanin mạnh hơn.
Nghiên cứu của Tae Jun Park vào năm 2013, kết quả nghiên cứu chứng minh khi da người nuôi cấy tế bào sống, tiếp xúc với WIF-1 tái tổ hợp, lượng melanin và hoạt tính tyrosinase đều tăng khoảng 30-50% và càng tăng liều WIF-1 thì hai chỉ số này càng cao. Ở da nám, đường truyền tín hiệu WIF-1/β-catenin “bật mạnh” hơn. 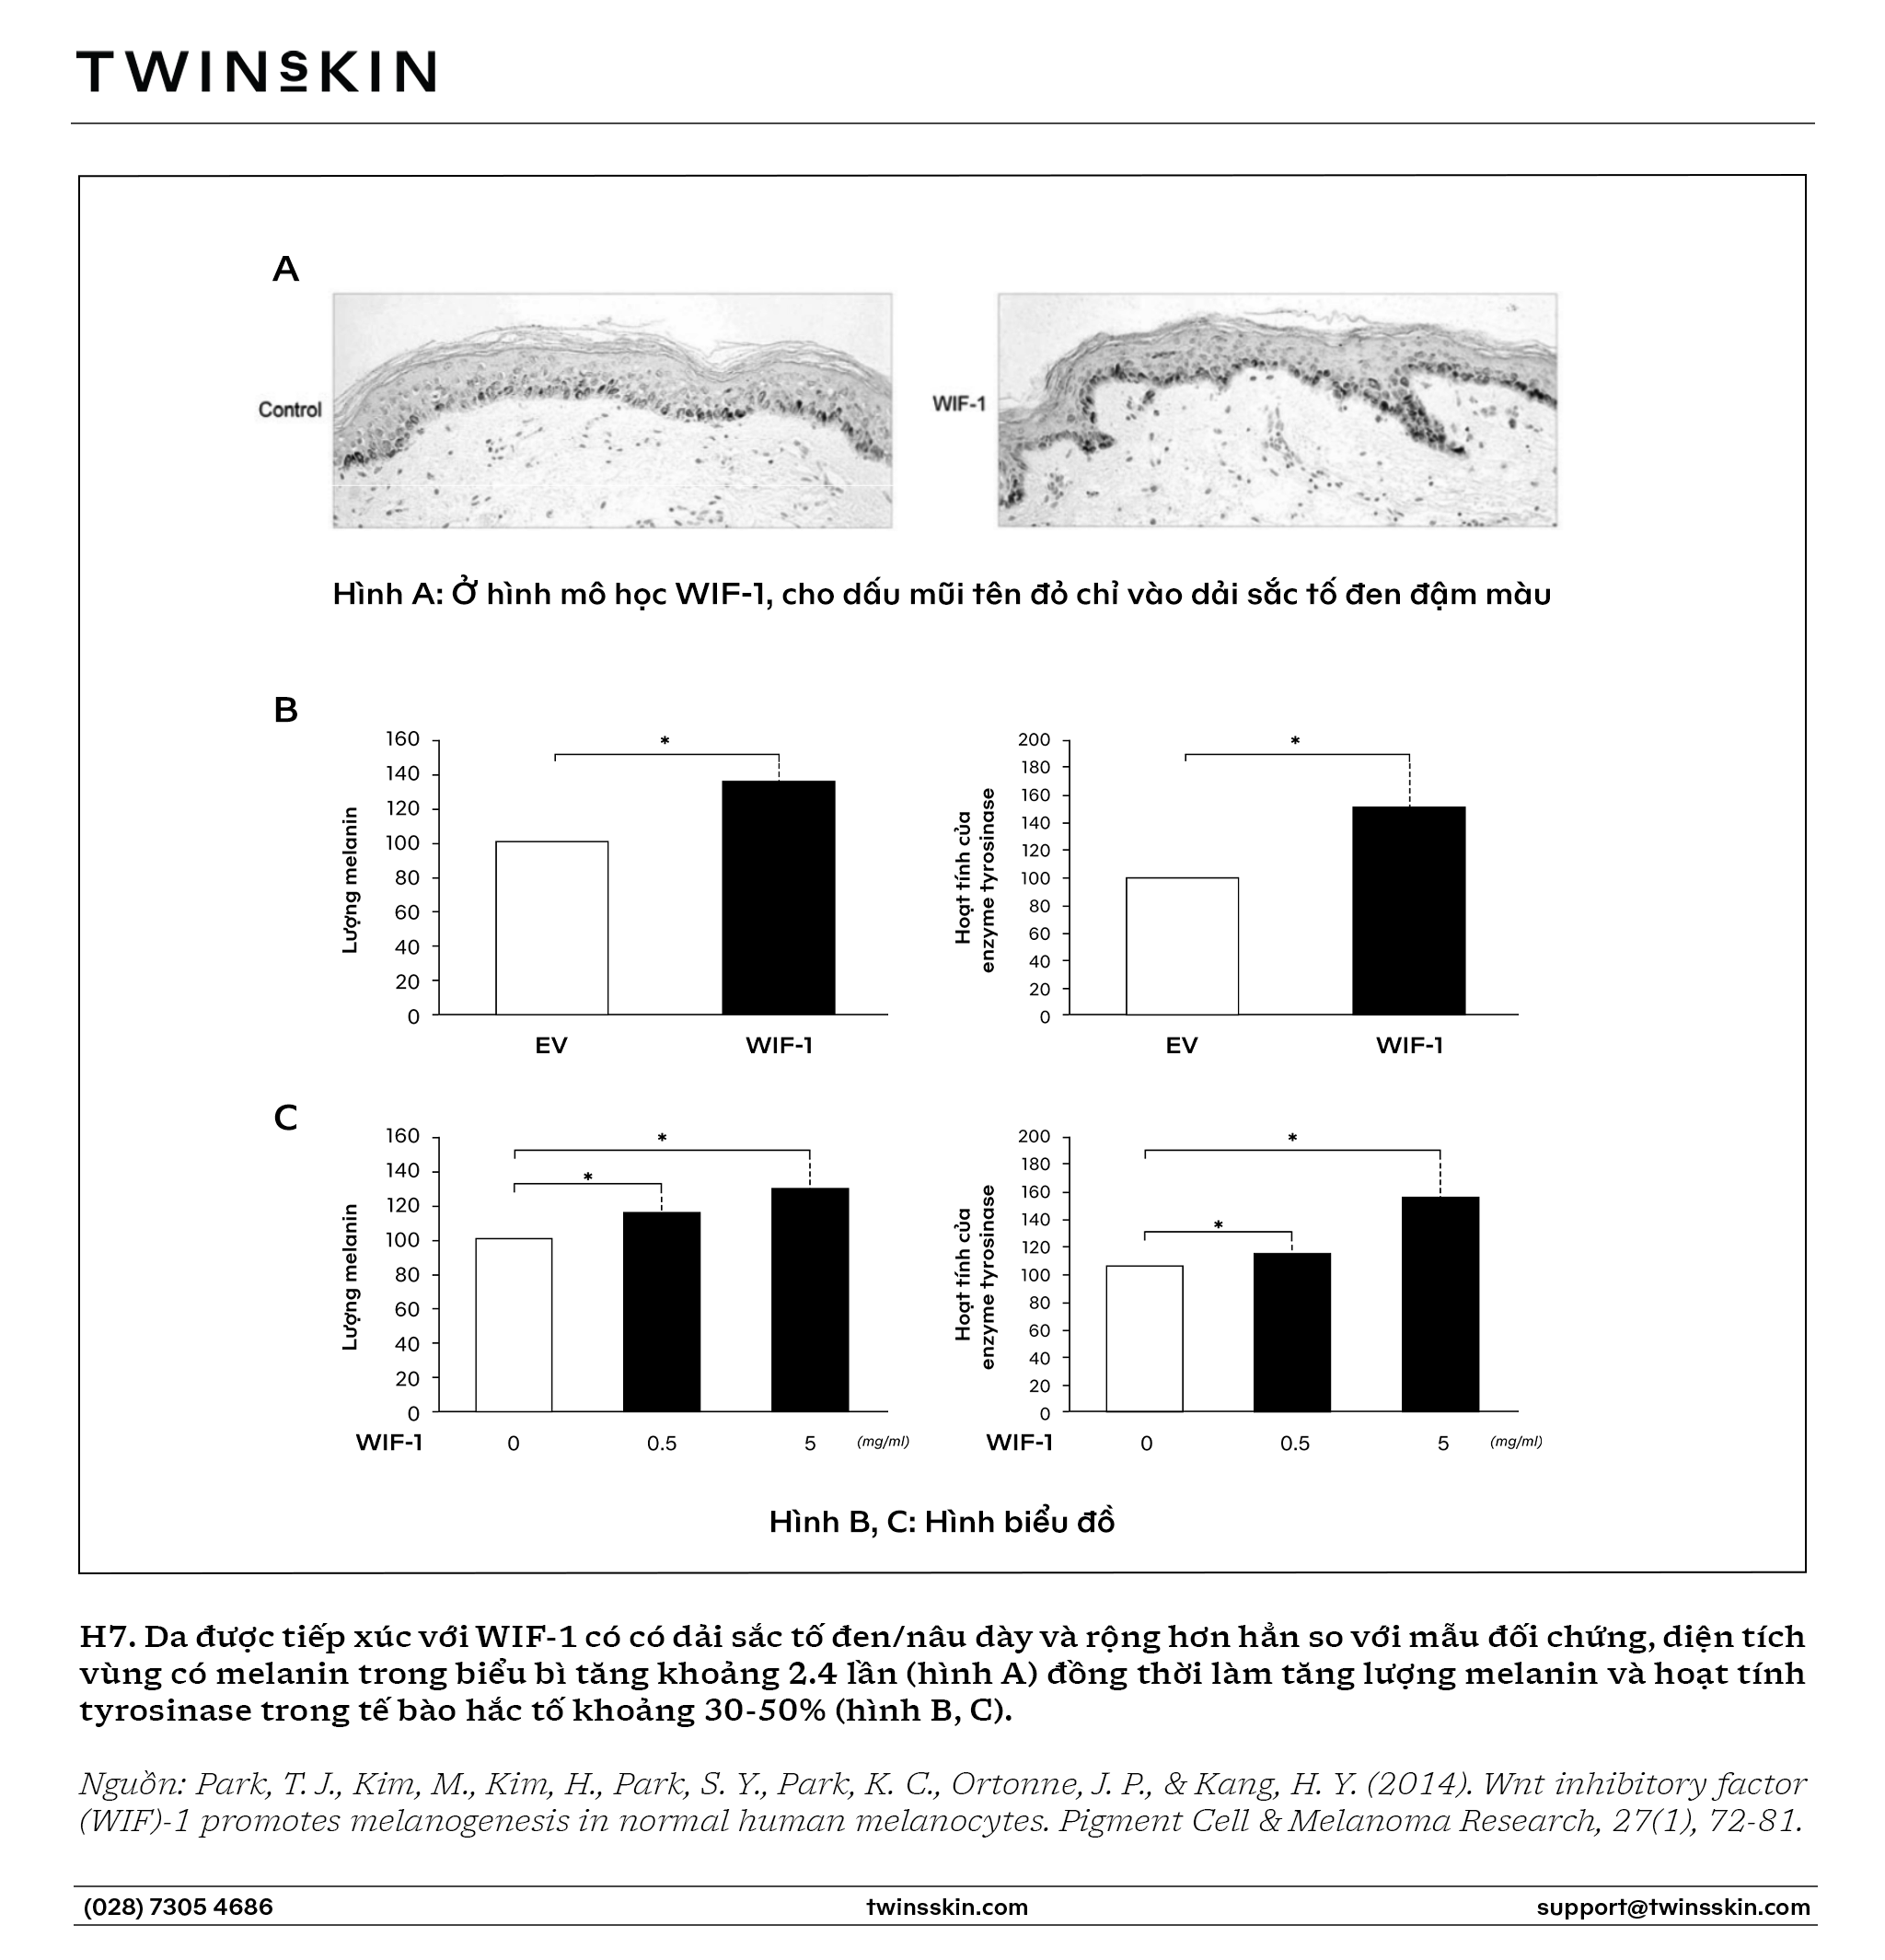
Tương tự, con đường PI3K/Akt đóng vai trò quan trọng trong sự sống còn, tăng sinh và biệt hóa của tế bào, bao gồm cả tế bào hắc tố, và sự hoạt hóa bất thường của nó có thể góp phần gây tăng sắc tố.
Hơn nữa, con đường truyền tín hiệu SCF/c-kit đặc biệt quan trọng trong tương tác thượng bì – trung bì. SCF, được tiết ra bởi nguyên bào sợi da và các nguyên bào khác, liên kết với các thụ thể c-kit trên bề mặt của tế bào hắc tố, kích thích sự tăng sinh, di chuyển và hoạt động sinh hắc tố của chúng.
Trong tài liệu nghiên cứu của Tomohisa Hirobe và cộng sự, thí nghiệm về tác động của tín hiệu SCF có thể “vượt tầng”, tác động trực tiếp lên tế bào hắc tố (thông qua thụ thể c-kit), giúp chúng sống sót, tăng sinh và di chuyển ngay cả khi vắng mặt tế bào thượng bì, miễn là trong môi trường vẫn còn các tín hiệu hỗ trợ như cAMP, ET-1, L-tyrosine.
Tế bào hắc tố không phản ứng với một vài tín hiệu đơn lẻ, mà chỉ thực sự “bùng” hoạt động khi cùng lúc nhận nhiều tín hiệu từ cả tế bào sừng và nguyên bào sợi (ET-1, SCF, KGF, HGF, GM-CSF, LIF…). Bộ tín hiệu này khiến cả tế bào gốc hắc tố tăng sinh, tế bào hắc tố trưởng thành hơn, mọc nhiều tua và bơm melanin sang tế bào thượng bì mạnh hơn.
Khi nhìn riêng từng con đường truyền tin-MSH gắn lên MC1R, SCF gắn lên c-Kit, ET-1 gắn lên thụ thể endothelin, hay các ligand Wnt gắn lên Frizzled – chúng ta thấy mỗi phân tử tín hiệu đều “có cửa riêng” trên màng tế bào hắc tố. Nhưng nếu kéo dài sơ đồ tín hiệu vào sâu bên trong tế bào, sẽ lộ rõ một điểm chung: dù xuất phát từ hơn 30 phân tử khác nhau, phần lớn dòng tín hiệu cuối cùng đều hội tụ về một nút trung tâm duy nhất – MITF.
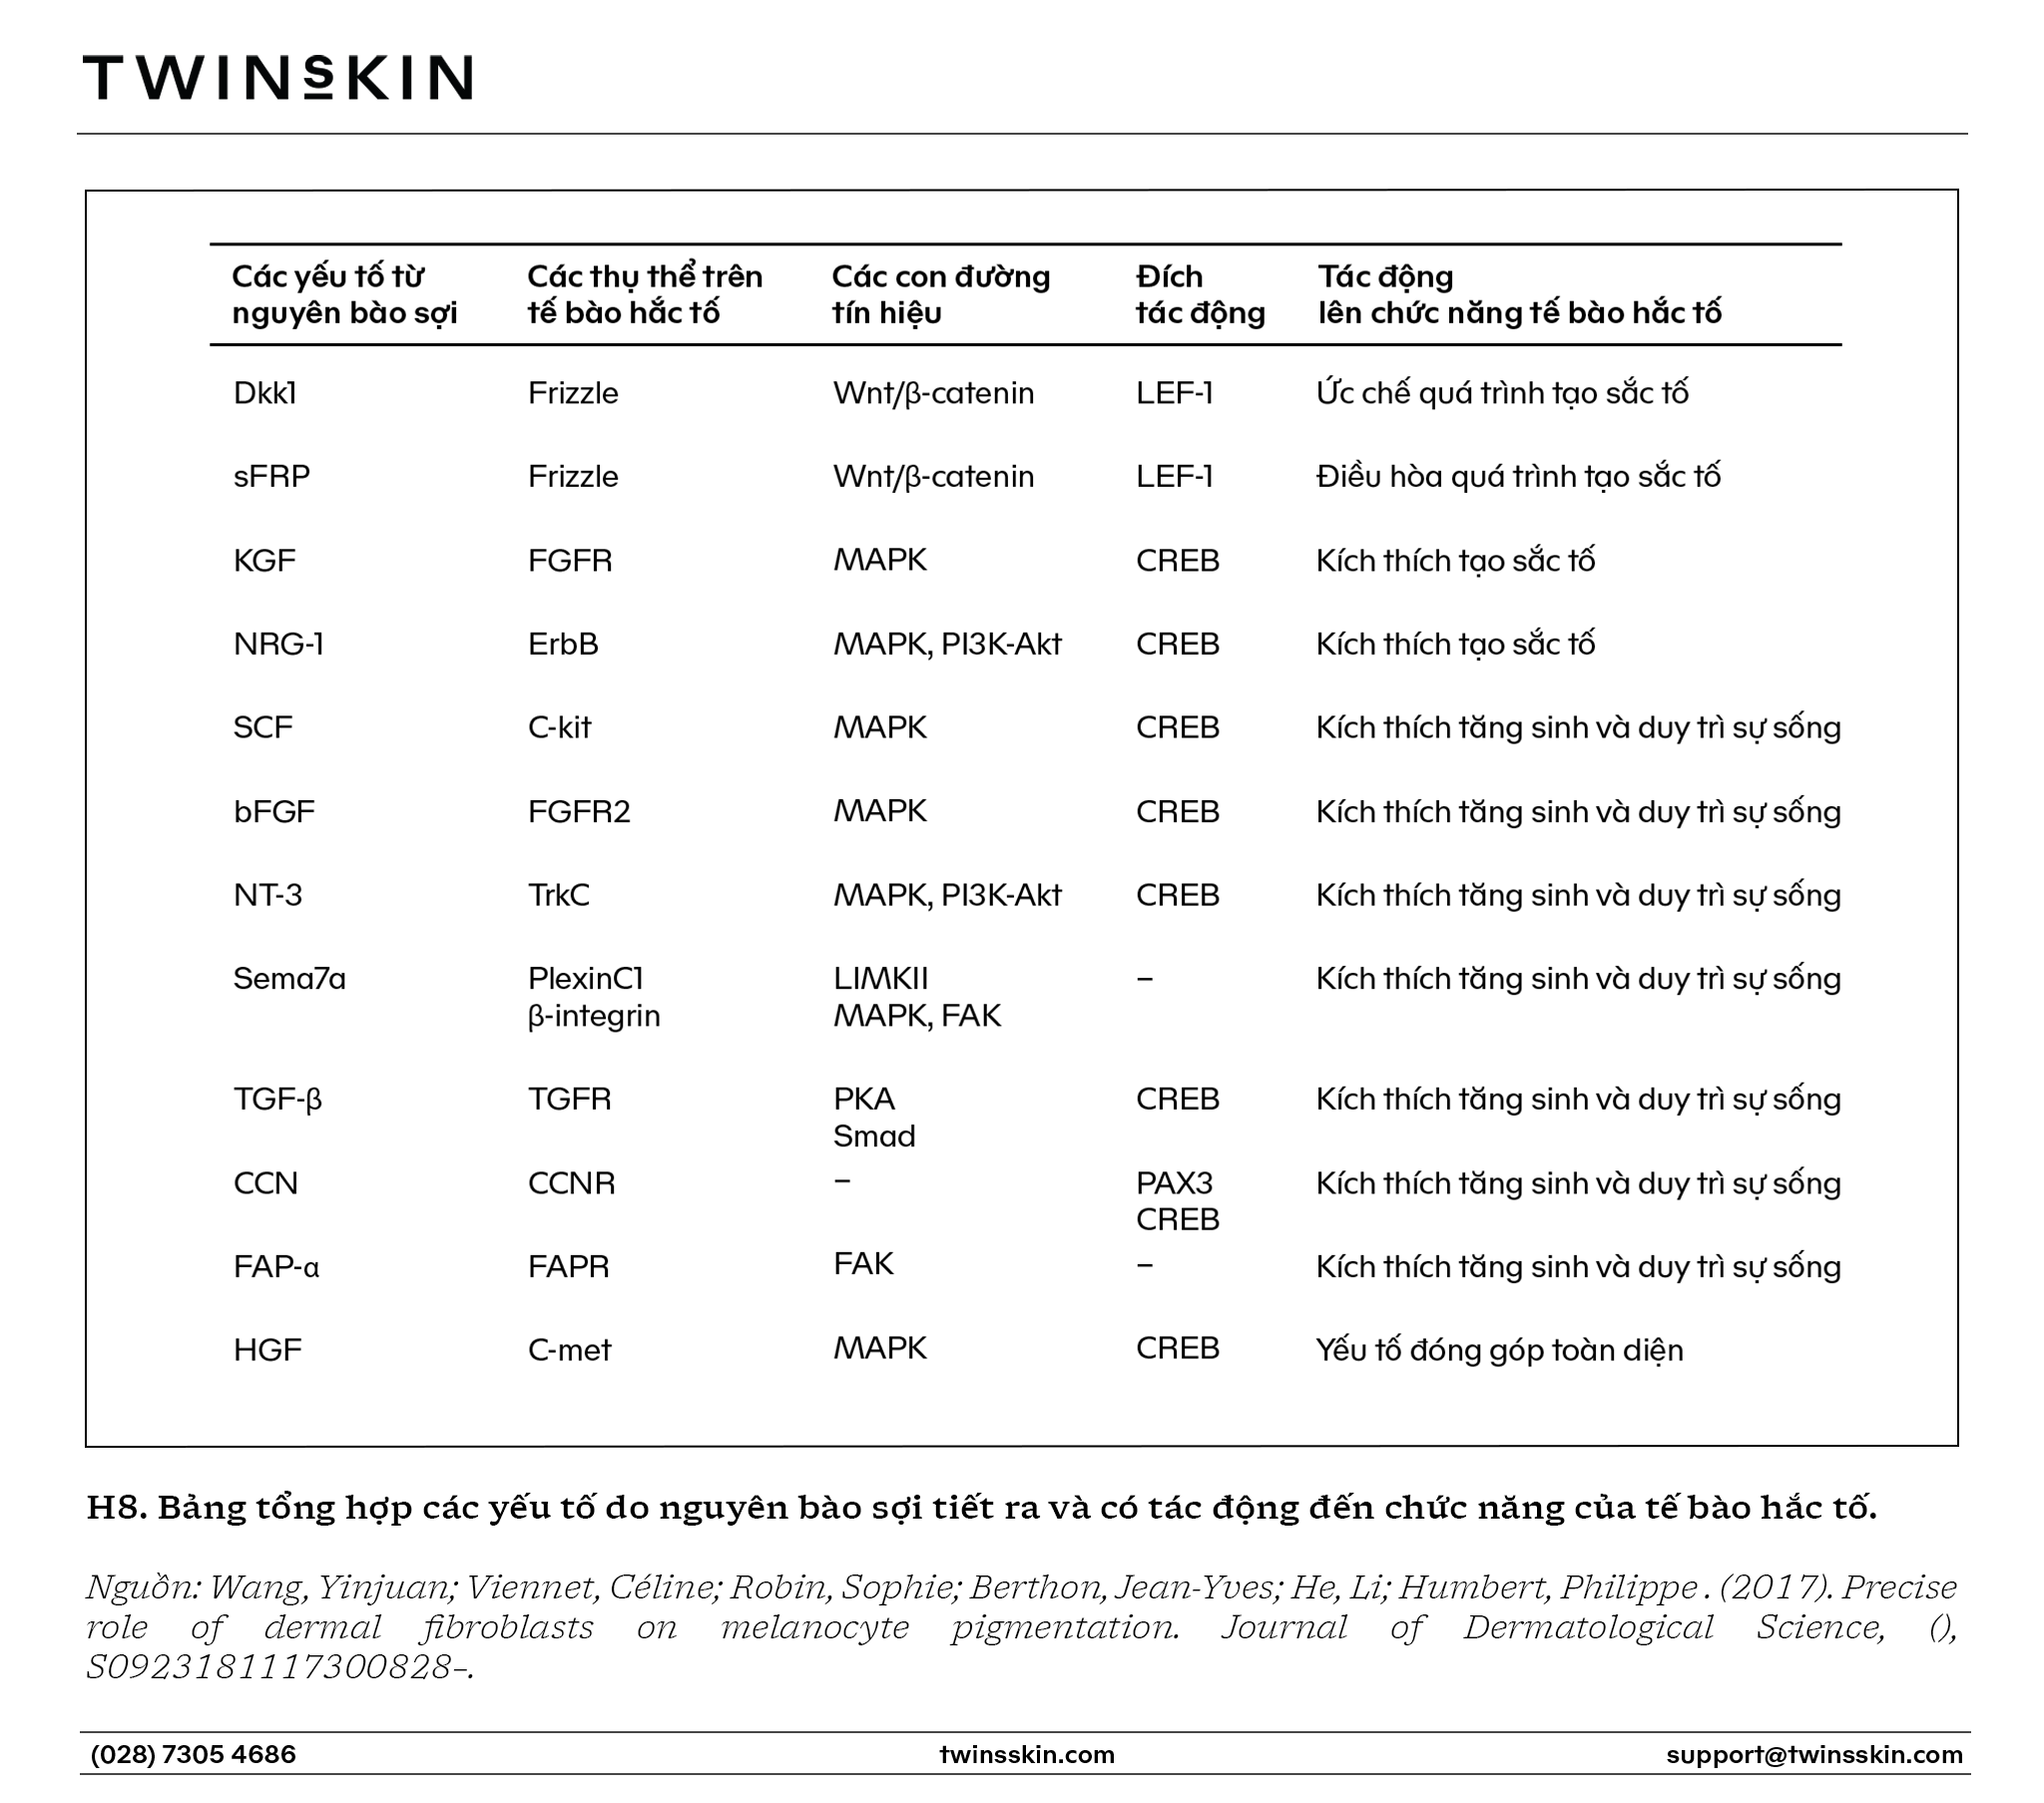
Nói cách khác, các thụ thể trên màng chỉ là những “cổng vào” khác nhau, còn MITF chính là trạm kiểm soát trong nhân tế bào, nơi quyết định xem thông điệp nào sẽ được khuếch đại thành lệnh tăng sinh melanin, thông điệp nào bị kìm lại.
MITF (Microphthalmia-associated Transcription Factor) là một yếu tố phiên mã nằm trong nhân tế bào. Nói dễ hiểu, đây là “viên chỉ huy” chuyên đọc DNA và quyết định sẽ bật hay tắt những bộ gen nào. Với tế bào hắc tố, MITF là người chịu trách nhiệm:
- Quyết định tế bào sống sót hay tự chết theo chương trình,
- Có tăng sinh hay không,
- Có mọc nhiều tua dendrite để giao tiếp với tế bào sừng,
- Và đặc biệt, có bật máy sản xuất melanin hay không, thông qua việc điều khiển các gen mã hoá tyrosinase, TRP-1, TRP-2…
Khi MITF được kích hoạt, nó đi vào nhân, bám lên vùng điều hòa của các gen sắc tố và ra lệnh tăng tổng hợp tyrosinase cùng các enzyme phụ trợ khác. Ngược lại, khi MITF bị kìm hãm, bộ máy sắc tố chậm lại.
Khi hiểu đúng về con đường sinh nám và sự quan trọng của MITF ta còn có thể lý giải được tại sao trong thực tế lâm sàng, nhiều trường hợp da nám hoặc tăng sắc tố dễ rơi vào tình trạng da “lờn” hoạt chất, hiệu quả làm sáng chững lại, thậm chí còn bị dội ngược sắc tố sau một thời gian dùng các chất ức chế tyrosinase.
Phần lớn hoạt chất làm sáng da hiện nay (như hydroquinone, arbutin, ascorbic acid…) lại không chạm vào MITF, mà chỉ tác động ở “tầng cuối” của dây chuyền với cơ chế ức chế hoạt động của tyrosinase. Nếu coi con đường sinh sắc tố là một dây chuyền sản xuất thì tyrosinase là “khuôn” đặc biệt để xử lý nguyên liệu L-tyrosine. Khi L-tyrosine gắn vừa khít vào khuôn, dây chuyền sản xuất melanin bắt đầu chạy.
Khi đó, nếu chúng ta sử dụng các hoạt chất với cơ chế ức chế cạnh tranh L-tyrosine vào vùng hoạt động của tyrosinase, những “nguyên liệu giả” này có hình dáng giống L-tyrosine, nên có thể tranh chỗ gắn vào tyrosinase trước. Khi chỗ đã bị chiếm, L-tyrosine thật không gắn được, lượng melanin giảm xuống, bề mặt da sáng hơn, điều mà người dùng nhìn thấy là “nám mờ đi”.
Điểm chí tử thường bị bỏ qua là “viên chỉ huy” MITF – vẫn còn hoạt động và đang theo dõi sản lượng đầu ra melanin cũng như số lượng “khuôn” tyrosinase chúng cung cấp. MITF nhận ra: “Lượng tyrosinase đã đầy đủ mà sản lượng melanin lại sụt giảm bất thường”, nó không biết rằng có “chất giả” đang chặn ở phía dưới.
Khi đó, MITF diễn giải thông tin này như một tình trạng “thiếu khuôn” và ra lệnh tăng phiên mã gen tyrosinase, tức là tăng số lượng “khuôn” trong nhà máy gấp nhiều lần để bù lại. Lúc này, trong giai đoạn vẫn còn dùng các hoạt chất làm sáng ức chế cạnh tranh với L-tyrosine:
- Nếu nồng độ hoạt chất ức chế đủ cao để chiếm hầu hết các “khuôn”, melanin có thể vẫn bị kìm tương đối.
- Nhưng theo thời gian, số lượng tyrosinase mới sinh ra ngày càng nhiều, lượng hoạt chất ban đầu không còn đủ để “trám” hết. Hiệu quả sáng da bắt đầu chững lại.
Hậu quả dội ngược sắc tố sẽ xảy ra khi dừng sử dụng hoạt chất làm sáng đột ngột, toàn bộ “nguyên liệu giả” bị rút khỏi hệ thống trong khi một lượng “khuôn” tyrosinase khổng lồ – vốn đã được MITF tăng cường suốt thời gian trước đó – vẫn nằm sẵn trong nhà máy. L-tyrosine thật lập tức gắn lại được vào các khuôn này, kích thích sản xuất melanin bật mạnh trở lại, thậm chí vượt xa mức ban đầu.
Vì vậy, khi bàn về chiến lược hỗ trợ kiểm soát nám trong dài hạn, hướng tiếp cận không còn dừng ở việc “chặn một enzyme”, mà là làm dịu và tái cân bằng cả hệ thống tín hiệu và đặc biệt là ổn định hoạt động của bộ chỉ huy MITF.
3. Rối loạn hệ thống enzyme – Không chỉ có enzyme Tyrosinase “nhận lệnh” sinh melanin.
Trong nhiều thập kỷ qua, khi nói đến điều trị tăng sắc tố nói chung hay điều trị nám da nói riêng, gần như phần lớn thị trường sản phẩm mỹ phẩm đặc hiệu cho da nám đều xoay quanh một tư duy chung: muốn da bớt sạm, chặn quá trình tạo melanin. Ở tầng bề mặt, điều này được đơn giản hóa thành một công thức rất dễ nhớ:
“Nám, sạm = ức chế Tyrosinase”.
Tyrosinase (TYR) vì thế trở thành từ khóa trung tâm trong cả phác đồ bác sĩ lẫn các sản phẩm mỹ phẩm làm sáng. Từ sản phẩm bình dân đến cao cấp, phần lớn đều chọn cách can thiệp trực tiếp vào enzyme này-bằng nhiều cơ chế khác nhau-với kỳ vọng làm giảm nhanh lượng melanin mới sinh ra.
Trên thực tế, đa số khách hàng khi đi tìm giải pháp trị nám cũng thường được gợi ý hoặc tự tìm đọc những hoạt chất “quen mặt” như arbutin, phenylethyl resorcinol, tranexamic acid, azelaic acid, vitamin C…. Các hoạt chất này đều có dữ liệu lâm sàng nhất định cho thấy khả năng ức chế tổng hợp melanin thông qua tác động trực tiếp hoặc gián tiếp lên tyrosinase. Điều này khiến không ít người hình thành một niềm tin đơn giản: “Cứ có hoạt chất ức chế tyrosinase là tốt cho nám.”
Tuy nhiên, mỗi hoạt chất đi kèm một “giá phải trả” khác nhau: nguy cơ kích ứng, khô bong, rối loạn hàng rào bảo vệ da, thay đổi sắc tố không đồng đều… Chưa kể, vì mong muốn cải thiện nhanh, nhiều khách hàng có xu hướng tự phối nhiều sản phẩm làm sáng cùng lúc, vô tình làm tăng nguy cơ tác dụng phụ mà không thật sự hiểu cơ chế phía sau.
Ở góc nhìn này, việc “đổ dồn” sự chú ý vào tyrosinase không chỉ là lựa chọn “cho kết quả nhìn thấy” mà còn là kết quả của tâm lý ưa thích những lời giải rõ ràng, đơn giản của người dùng: một nguyên nhân – một giải pháp.
Melanin bị xem là “thủ phạm duy nhất”, tyrosinase trở thành “đích tấn công duy nhất”, trong khi phía sau đó là cả một hệ thống sinh học bên dưới da đang bị rối loạn, và đi sâu vào một hệ thống enzyme, có nhiều hơn một enzyme tyrosinase góp phần trong con đường hình thành sắc tố, quyết định việc nám xuất hiện, kéo dài hay tái phát như thế nào.
3.1 Tyrosinase – enzyme “cửa ngõ” khởi động quá trình tạo melanin
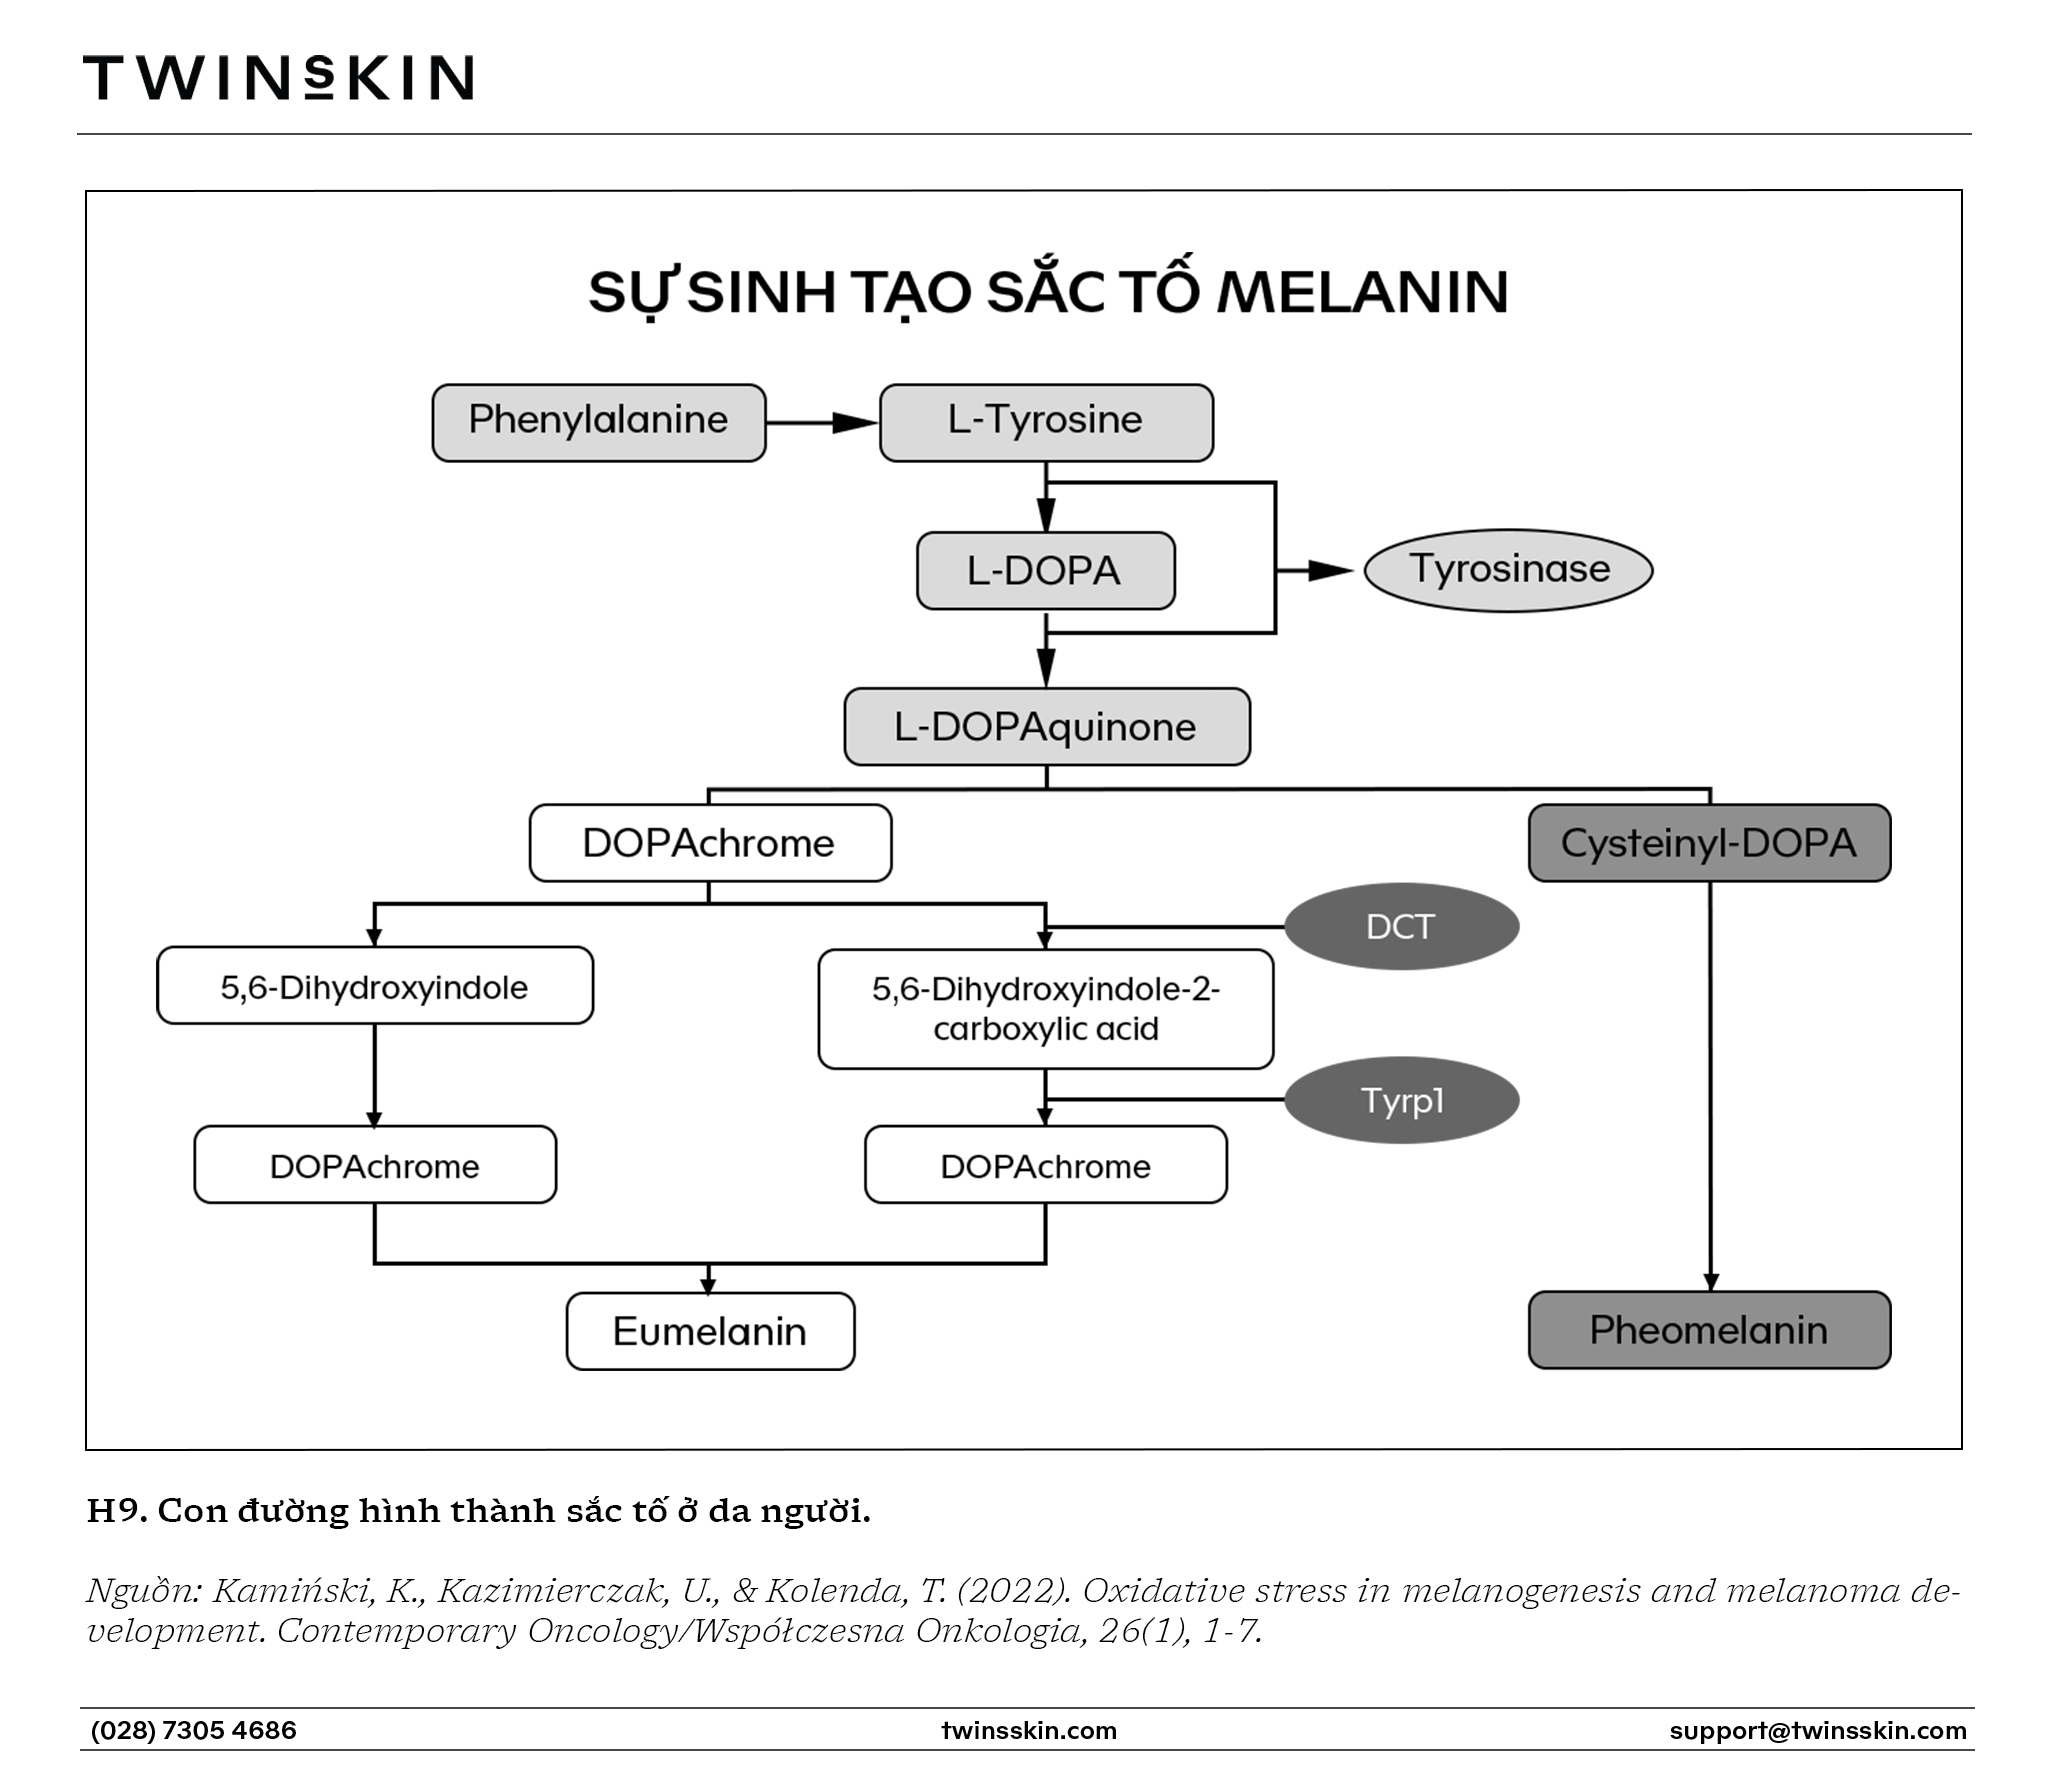
Tyrosinase (TYR) vẫn là mục tiêu trung tâm của các tác nhân khử sắc tố do vai trò đặc biệt của nó trong con đường sinh melanin. Đây là enzyme giới hạn tốc độ, không thể thiếu để chuyển tiền chất L-tyrosine thành chuỗi sản phẩm trung gian dẫn tới hình thành melanin.
Cụ thể, tyrosinase xúc tác bước đầu tiên:
- oxy hóa L-tyrosine → L-DOPA,
- sau đó tiếp tục chuyển L-DOPA → dopachrome.
Đây là mắt xích đầu ra quyết định cho cả hai nhánh tạo eumelanin (nâu-đen) và pheomelanin (vàng-đỏ). Nếu không có tyrosinase, chu trình sản xuất melanin sẽ bị chặn ngay từ bước khởi đầu.
Vì vậy, ức chế tyrosinase luôn được xem là mục tiêu hàng đầu trong điều trị nám và tăng sắc tố. Hầu hết các chất làm trắng da truyền thống (hydroquinone, arbutin, acid kojic, vitamin C…) đều hoạt động bằng cách giảm hoạt tính tyrosinase, từ đó giảm lượng melanin mới được tạo ra, giúp các mảng nám hiện có từ từ mờ đi.
Tuy nhiên, tyrosinase cũng là một phần của cơ chế bảo vệ sinh lý tự nhiên của da trước tia UV. Khi “dồn lực” chỉ để chặn tyrosinase, chúng ta đang can thiệp mạnh vào một con đường sinh học vốn có chức năng bảo vệ. Do đó, việc tìm thêm những đích tác động khác ngoài tyrosinase – đặc biệt là các enzyme phụ trợ – trở nên rất quan trọng.
3.2 Hai enzyme phụ trợ trong con đường sinh sắc tố: TRP-1, TRP-2 (Tyrosinase-Related Protein 1 và 2)
Các enzyme TRP-1, TRP-2 (Tyrosinase-Related Protein 1 và 2) giữ vai trò hỗ trợ trong con đường sinh tổng hợp melanin và hệ thống vận chuyển melanosome phối hợp chặt chẽ với tyrosinase trong quá trình tạo sắc tố. Hai enzyme này cùng với enzyme tyrosinase, đều chịu sự điều hòa bởi yếu tố phiên mã MITF.
Tyrosinase-related protein 1 (TRP-1) không chỉ đơn thuần là một enzyme xúc tác mà còn đóng vai trò sống còn trong việc duy trì sự ổn định của Tyrosinase đồng thời cũng tham gia giai đoạn cuối của quá trình tạo eumelanin.
Mặc dù chức năng xúc tác cụ thể của TRP-1 ở người chưa được hiểu đầy đủ, nhưng nhiều nghiên cứu cho thấy TRP-1 có chức năng oxi hóa DHICA (5,6-dihydroxyindole-2-carboxylic acid) – một chất trung gian trong nhánh tổng hợp eumelanin.
Takeshi Kobayashi đã chứng minh trong nghiên cứu trong ống nghiệm vào năm 2012, rằng hoạt động của Tyrosinase ổn định hơn khi có TRP-1 và/hoặc Dct – TRP-2. Enzyme tyrosinase bị phân hủy nhanh hơn ở tế bào hắc tố có TRP-1 đột biến ở chuột so với tế bào hắc tố TRP-1 kiểu hình bình thường. Đồng thời, kết quả cho thấy làm tăng lại độ ổn định của enzyme tyrosinase khi bổ sung lại TRP-1 kiểu hình bình thường.
Cụ thể, TRP-1 tương tác trực tiếp với Tyrosinase trong lưới nội chất và bộ máy Golgi để hình thành các phức hợp dị hợp tử (heterodimeric complexes). Sự liên kết này bảo vệ enzyme tyrosinase khỏi sự phân hủy sớm bởi proteasome và hỗ trợ quá trình gấp nếp (folding) chính xác của protein này trước khi nó được vận chuyển đến melanosome.
Nếu thiếu TRP-1, enzyme tyrosinase sẽ mất ổn định, không thể liên kết với ion đồng và bị thoái hóa nhanh chóng, dẫn đến giảm sắc tố. Ngược lại, trong nám da, sự biểu hiện quá mức của TRP-1 (thường do kích thích của tia UV và hormone) làm tăng tuổi thọ và hoạt tính của enzyme tyrosinase, khiến quá trình tổng hợp melanin diễn ra dai dẳng và khó kiểm soát.
Bên cạnh vai trò là một protein hỗ trợ, TRP-1 còn sở hữu hoạt tính enzyme DHICA oxidase, xúc tác quá trình oxy hóa 5,6-dihydroxyindole-2-carboxylic acid (DHICA) thành indole-5,6-quinone-carboxylic acid. Đây là bước quan trọng để tạo ra eumelanin – loại melanin màu nâu đen đặc trưng của nám, thay vì pheomelanin màu đỏ vàng.
TRP-2, hay còn gọi là Dopachrome Tautomerase (Dct), hoạt động tại ngã ba đường của quá trình tổng hợp melanin. Sau khi Dopaquinone được hình thành, nó có thể tự phát chuyển hóa thành Dopachrome. Tại đây, TRP-2 xúc tác sự chuyển đổi Dopachrome thành DHICA. Sự hiện diện của TRP-2 là yếu tố quyết định để quá trình tổng hợp đi theo con đường tạo Eumelanin. Nếu không có TRP-2, Dopachrome sẽ tự oxy hóa thành DHI (5,6-dihydroxyindole), chuyển hướng tạo thành pheomelanin.
Nhắc lại về MITF, chúng đã được nhắc đến ở phần trên với vai trò là chốt kiểm soát, thu nhận tín hiệu truyền tin từ môi trường xung quanh đến tế bào hắc tố cũng như chịu trách nhiệm cho toàn bộ vòng đời của một tế bào hắc tố từ việc sinh tạo, trưởng thành, hoàn thiện chức năng.
Trong bộ Golgi của tế bào hắc tố, MITF kích hoạt tổng hợp bộ ba enzyme TYR – TRP-1 – TRP-2, sau đó chúng được vận chuyển vào melanosome. Ở giai đoạn tiếp theo, dưới tác động của các enzyme này, tyrosine và L-DOPA được chuyển hoá thành melanin và bắt đầu phủ lên bề mặt các sợi khung Pmel17.
Để melanosome phát triển đúng cách, pH bên trong bào quan được điều chỉnh liên tục nhờ các protein vận chuyển ion (như SLC45A2, SLC24A5, OCA2, TPC2) kiểm soát dòng Cl⁻, Ca²⁺, Na⁺. Khi TYR dần giảm hoạt tính, lượng melanin đã tích tụ đủ dày, làm “che khuất” hoàn toàn cấu trúc sợi bên trong – lúc này melanosome trở thành hạt sắc tố trưởng thành.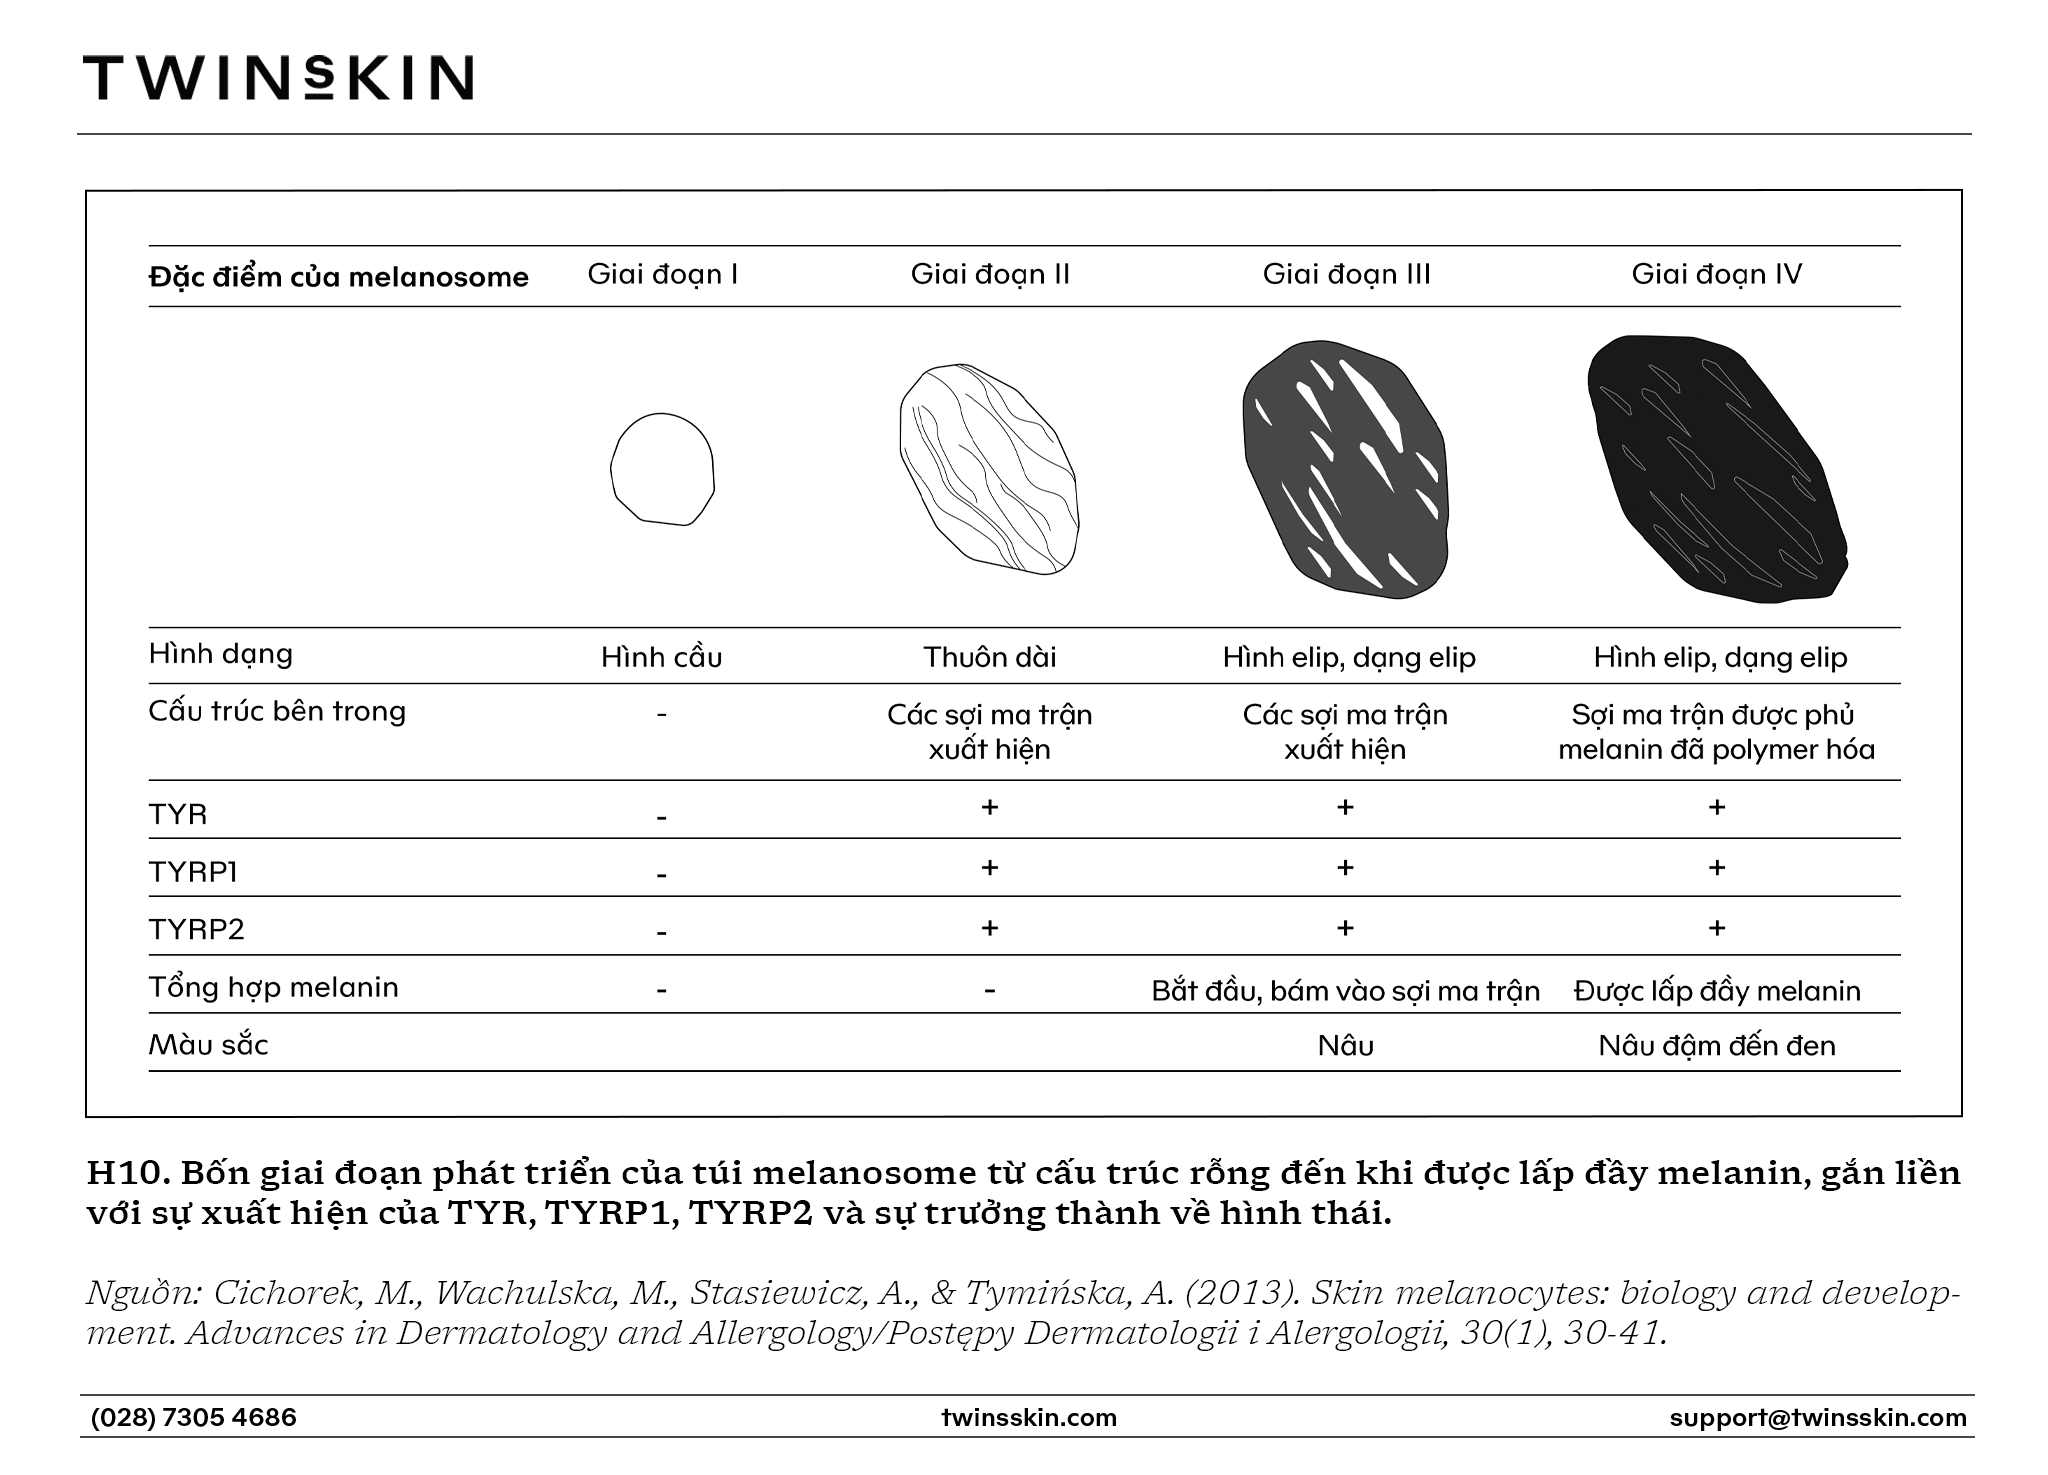
3.3. Hệ vận chuyển melanosome – “dây chuyền phân phối” melanin
Sản xuất melanin mới chỉ là một nửa câu chuyện. Để vết nám hiện diện trên bề mặt da, các gói sắc tố (melanosome) phải được vận chuyển từ vùng quanh nhân ra đến đầu mút sợi nhánh của tế bào hắc tố và chuyển giao sang tế bào sừng. Đây là một quy trình hậu cần (logistics) phức tạp, phụ thuộc vào hệ thống khung xương tế bào và các protein động cơ.
Đây chính là “hệ thống băng chuyền và cổng nhập hàng” đến tế bào thượng bì – một lớp điều hòa thứ ba, độc lập với việc tế bào hắc tố sản xuất nhiều hay ít melanin.
Quá trình vận chuyển túi melanosome này cũng đòi hỏi sự tham gia của một hệ thống protein/enzyme chuyên biệt, góp phần vào sự phân bố sắc tố trên da. Nếu coi tyrosinase và TRP-1/2 là “dây chuyền sản xuất” melanin, thì hệ vận chuyển melanosome chính là “dây chuyền phân phối” melanin đến đích cuối cùng.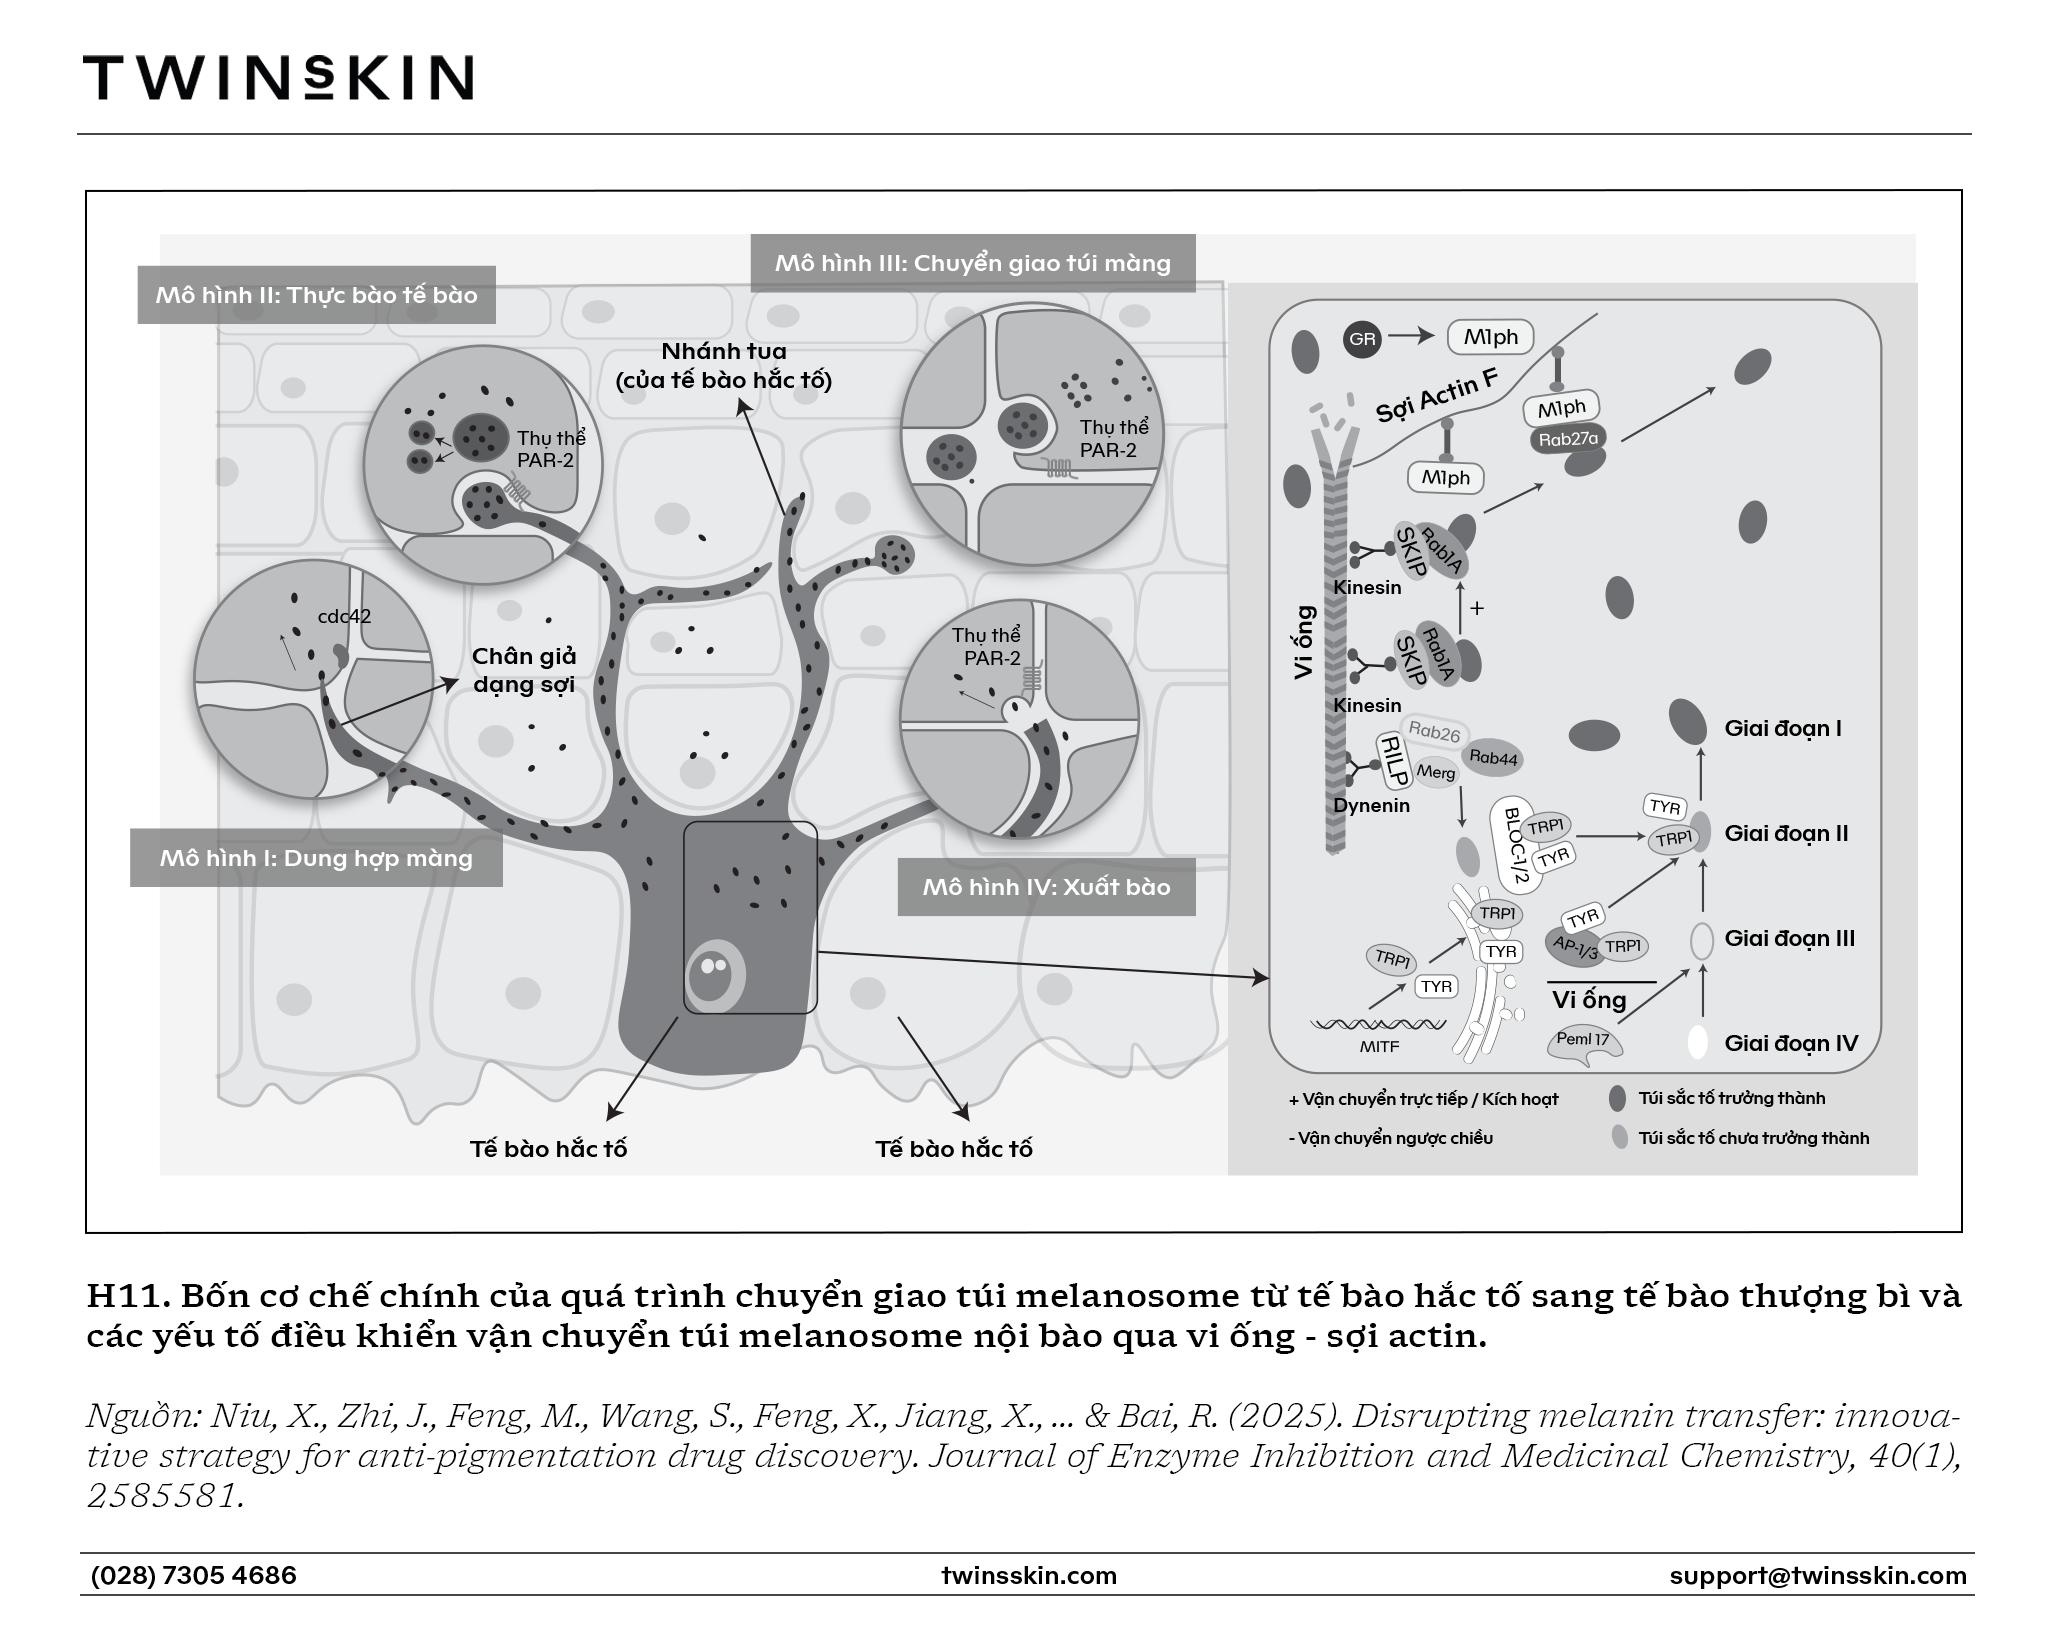
Quãng đường vận chuyển xa được thực hiện trên hệ vi ống (microtubule) bằng phức hợp Rab1A–SKIP–kinesin-1 đưa melanosome tiến ra ngoại vi, trong khi phức hợp dynein–dynactin có thể kéo chúng ngược trở lại trung tâm khi còn chưa đủ trưởng thành. Một số protein vận chuyển khác như Rab36, Mreg, Rab44 tham gia điều phối chiều đi – về này, nhưng cơ chế chi tiết vẫn đang được nghiên cứu.
Khi túi melanosome đã ra đến vùng rìa tế bào, chặng đường ngắn cuối cùng để tới đầu các nhánh dendrite lại phụ thuộc vào hệ sợi actin và một phức hợp ba thành phần Rab27A – melanophilin (Mlph) – myosin Va (Myo5a). Có thể hình dung đây là bộ ba “xe kéo – móc nối – đường ray” giúp melanosome trượt trên sợi actin đến đúng vị trí giao hàng. Chỉ cần thiếu một trong ba thành phần này, cả hệ thống băng chuyền sẽ bị tắc.
Ở da người, nhiều bằng chứng cho thấy cơ chế xuất bào melanosome ở tế bào hắc tố kết hợp với thực bào được điều khiển bởi thụ thể PAR-2 trên tế bào thượng bì là con đường quan trọng. PAR-2 là một thụ thể màng thuộc nhóm GPCR, được hoạt hóa bởi các protease ngoại bào. Khi PAR-2 trên tế bào thượng bì được kích hoạt, tốc độ thực bào melanin tăng lên, melanin được kéo về tụ phía trên nhân tế bào như một “mũ bảo hộ” chống UV. Ngược lại, khi hoạt tính PAR-2 bị giảm, khả năng tế bào thượng bì “ăn” melanin suy giảm, lượng melanin nhận vào ít hơn dù tế bào hắc tố có thể vẫn sản xuất bình thường.
Từ góc nhìn hệ thống, chúng ta thấy rõ: một vùng da có thể trở nên sạm màu không chỉ vì nhà máy melanin sản xuất nhiều hơn, mà còn vì băng chuyền vận chuyển nhanh hơn và cổng nhập của tế bào sừng mở rộng hơn bình thường. Những rối loạn ở tầng “vận chuyển – thu nhận” này đã được ghi nhận trong các tình trạng tăng sắc tố mạn tính, trong đó nám da là ví dụ điển hình.
Điều này gợi ý các hướng tiếp cận mới ngoài việc chỉ ức chế tyrosinase: điều hòa chọn lọc hoạt động của phức hợp Rab27A–Mlph–Myo5a để giảm tốc độ “bơm” melanosome ra đầu tua và giảm nhạy PAR-2 trên tế bào thượng bì để hạn chế lượng melanin được thu nhận.
3.4 Enzyme phân giải phá hủy màng đáy và nám trung bì
Ngoài các enzyme trực tiếp tham gia sản xuất và phân phối melanin, hệ enzyme phân giải cấu trúc nền da cũng đóng vai trò quan trọng trong cơ chế bệnh sinh nám – đặc biệt là nám trung bì (dermal melasma). Nhóm enzyme này không tạo ra melanin nhưng lại quyết định độ sâu và mức độ kháng trị của nám.
Bình thường, melanin do tế bào hắc tố tạo ra được chứa trong melanosome và chuyển lên các tế bào sừng ở lớp thượng bì. Màng đáy (cấu tạo chủ yếu từ collagen type IV, VII và laminin) hoạt động như một màng ngăn, giữ cho tế bào sắc tố và melanin nằm ở lớp đáy thượng bì, không rơi xuống trung bì.
Tuy nhiên, trong nám da (đặc biệt dưới tác động mạn tính của tia UV), màng đáy thường bị suy yếu hoặc đứt gãy, tạo cơ hội cho melanin lọt xuống lớp trung bì. Tại đây, melanin bị đại thực bào trung bì “ăn” tạo thành các melanophage, gây nên những đốm nám nằm sâu mà điều trị rất khó khăn (do melanin đã ngoài tầm tác dụng của các thuốc bôi làm sáng da thông thường).
Nguyên nhân chính gây tổn hại màng đáy ở da nám là sự tăng hoạt động của các enzyme tiêu hủy cấu trúc nền do kích thích của ánh nắng và lão hóa da. Điển hình là hai enzyme matrix metalloproteinase (MMP-2 và MMP-9) – thuộc họ men metalloproteinase phân cắt collagen. Tia UV được chứng minh làm tăng biểu hiện các MMP-2 và MMP-9 ở da nám, các enzyme này sẽ phân giải collagen type IV và type VI – vốn là thành phần thiết yếu của màng đáy.
Thật vậy, từ nhiều tài liệu nghiên cứu đã cho thấy đến 95% tổn thương nám có hiện tượng đứt gãy màng đáy (thiếu hụt collagen IV khi nhuộm hóa mô miễn dịch). Tổn thương màng đáy mức độ nặng còn khiến một số tế bào hắc tố ở lớp đáy bị “lồi” xuống phần nhú trung bì (được gọi là “pendulous melanocytes”) tạo thành một nhà máy sản xuất sắc tố di động bên dưới trung bì.
Bên cạnh họ enzyme MMP, một tác nhân khác cũng góp phần phá hủy màng đáy trong nám là enzyme tryptase do tế bào mast (dưỡng bào) tiết ra. Tế bào Mast là loại tế bào miễn dịch cư trú ở trung bì, giải phóng nhiều chất hoạt động khi bị kích thích bởi tia UV (ví dụ: histamine, tryptase, TNF-α…).
Ở da bị nám, người ta nhận thấy số lượng tế bào Mast tăng cao hơn bình thường. Tryptase do chúng phóng thích có khả năng hoạt hóa dạng tiền enzyme của MMP-2, MMP-9 (pro-collagenase) cũng như trực tiếp phân hủy collagen type IV của màng đáy.
Nói cách khác, tryptase kích hoạt “dây chuyền” phân giải màng đáy: vừa kích thích MMP tăng cường phá collagen, vừa tự nó làm đứt gãy cấu trúc collagen IV, đẩy nhanh quá trình hỏng màng đáy ở vùng da nám.
Hệ quả là ngày càng nhiều melanin lọt xuống trung bì hơn. Khi bị đẩy xuống một vi môi trường mới tiếp xúc lần đầu, với hệ sinh thái tín hiệu “lạ”, các tế bào hắc tố sẽ trở nên hoảng loạn, phản ứng thái quá và phản kháng bằng cách tăng tua dendrite níu lên vùng màng đáy hoặc tăng sinh melanin ồ ạt, mất kiểm soát.
Ngoài ra, tế bào Mast còn tiết ra nhiều yếu tố tăng sinh mạch (VEGF, bFGF) và cytokine gây viêm mạn tính, góp phần tạo nên tình trạng da nám xen kẽ với các tổn thương giãn mạch, viêm, nhạy cảm.
Tóm lại, nhóm enzyme phân giải MMP-2, MMP-9 và tryptase mặc dù không sinh ra sắc tố, nhưng giữ vai trò “phá hoại ngầm” trong nám da: chúng phá vỡ cấu trúc màng đáy, làm melanin và cả tế bào hắc tố rơi xuống trung bì, hình thành nên nám trung bì khó xử trí. Sự hiện diện của nám trung bì giải thích vì sao nhiều trường hợp nám điều trị mãi không hết hẳn hoặc rất dễ tái phát – do melanin đã nằm sâu dưới trung bì, ngoài tầm với của các hoạt chất ức chế hoặc loại bỏ sắc tố thượng bì.
Từ những phân tích này, có thể thấy điều trị nám hiệu quả không thể chỉ nhìn nám như câu chuyện đơn tuyến của tyrosinase. Chúng ta cần một chiến lược tổng lực, đồng thời kiểm soát cả:
- Hệ enzyme tạo sắc tố (tyrosinase, TRP-1, TRP-2 và các cơ chế vận chuyển melanosome),
- Các enzyme làm tổn thương màng đáy (MMPs, tryptase).
Chỉ khi tác động trên nhiều mắt xích của cơ chế sinh nám – vừa “khóa” máy sản xuất melanin, vừa điều tiết đường vận chuyển, đồng thời gia cố hàng rào màng đáy và dập tắt các enzyme phá huỷ – chúng ta mới có thể kỳ vọng kết quả điều trị bền vững và giảm đáng kể nguy cơ tái phát.
4. Lão hoá và Nám – Không phải là hai vấn đề da riêng biệt.
Khi bàn về mối quan hệ giữa lão hoá và nám, phần lớn mọi người đều nhìn thấy một thực tế:
da càng lão hoá, càng dễ bị nám và khó trị dứt điểm.
Đây là nhận định rất phổ biến, đặc biệt ở nhóm khách hàng trung niên – độ tuổi thường được gọi là “tuổi lão hoá”. Nhưng nếu đi sâu vào bản chất, hàng loạt câu hỏi bắt đầu xuất hiện:
- Tại sao da lão hoá lại dễ bị nám hơn?
- Vì sao nám trên nền da đã lão hoá thường cứng đầu và dễ tái phát hơn da trẻ?
- Liệu một làn da lão hoá bị nám có giống với làn da trẻ, khoẻ nhưng bị nám hay không?
- Những phương pháp điều trị nám “kinh điển” như laser, peel, đốt điện, ức chế tyrosinase… khi áp dụng trên da đã lão hoá, có còn mang lại hiệu quả bền vững, hay cần được tinh chỉnh?
Đây chính là những câu hỏi mà Twins tin rằng nhiều khách hàng đang quan tâm, và cũng là lý do chúng ta cần nhìn nám trong mối tương quan với trạng thái lão hoá của toàn bộ làn da, chứ không xem hai vấn đề này là hai đường thẳng tách biệt.
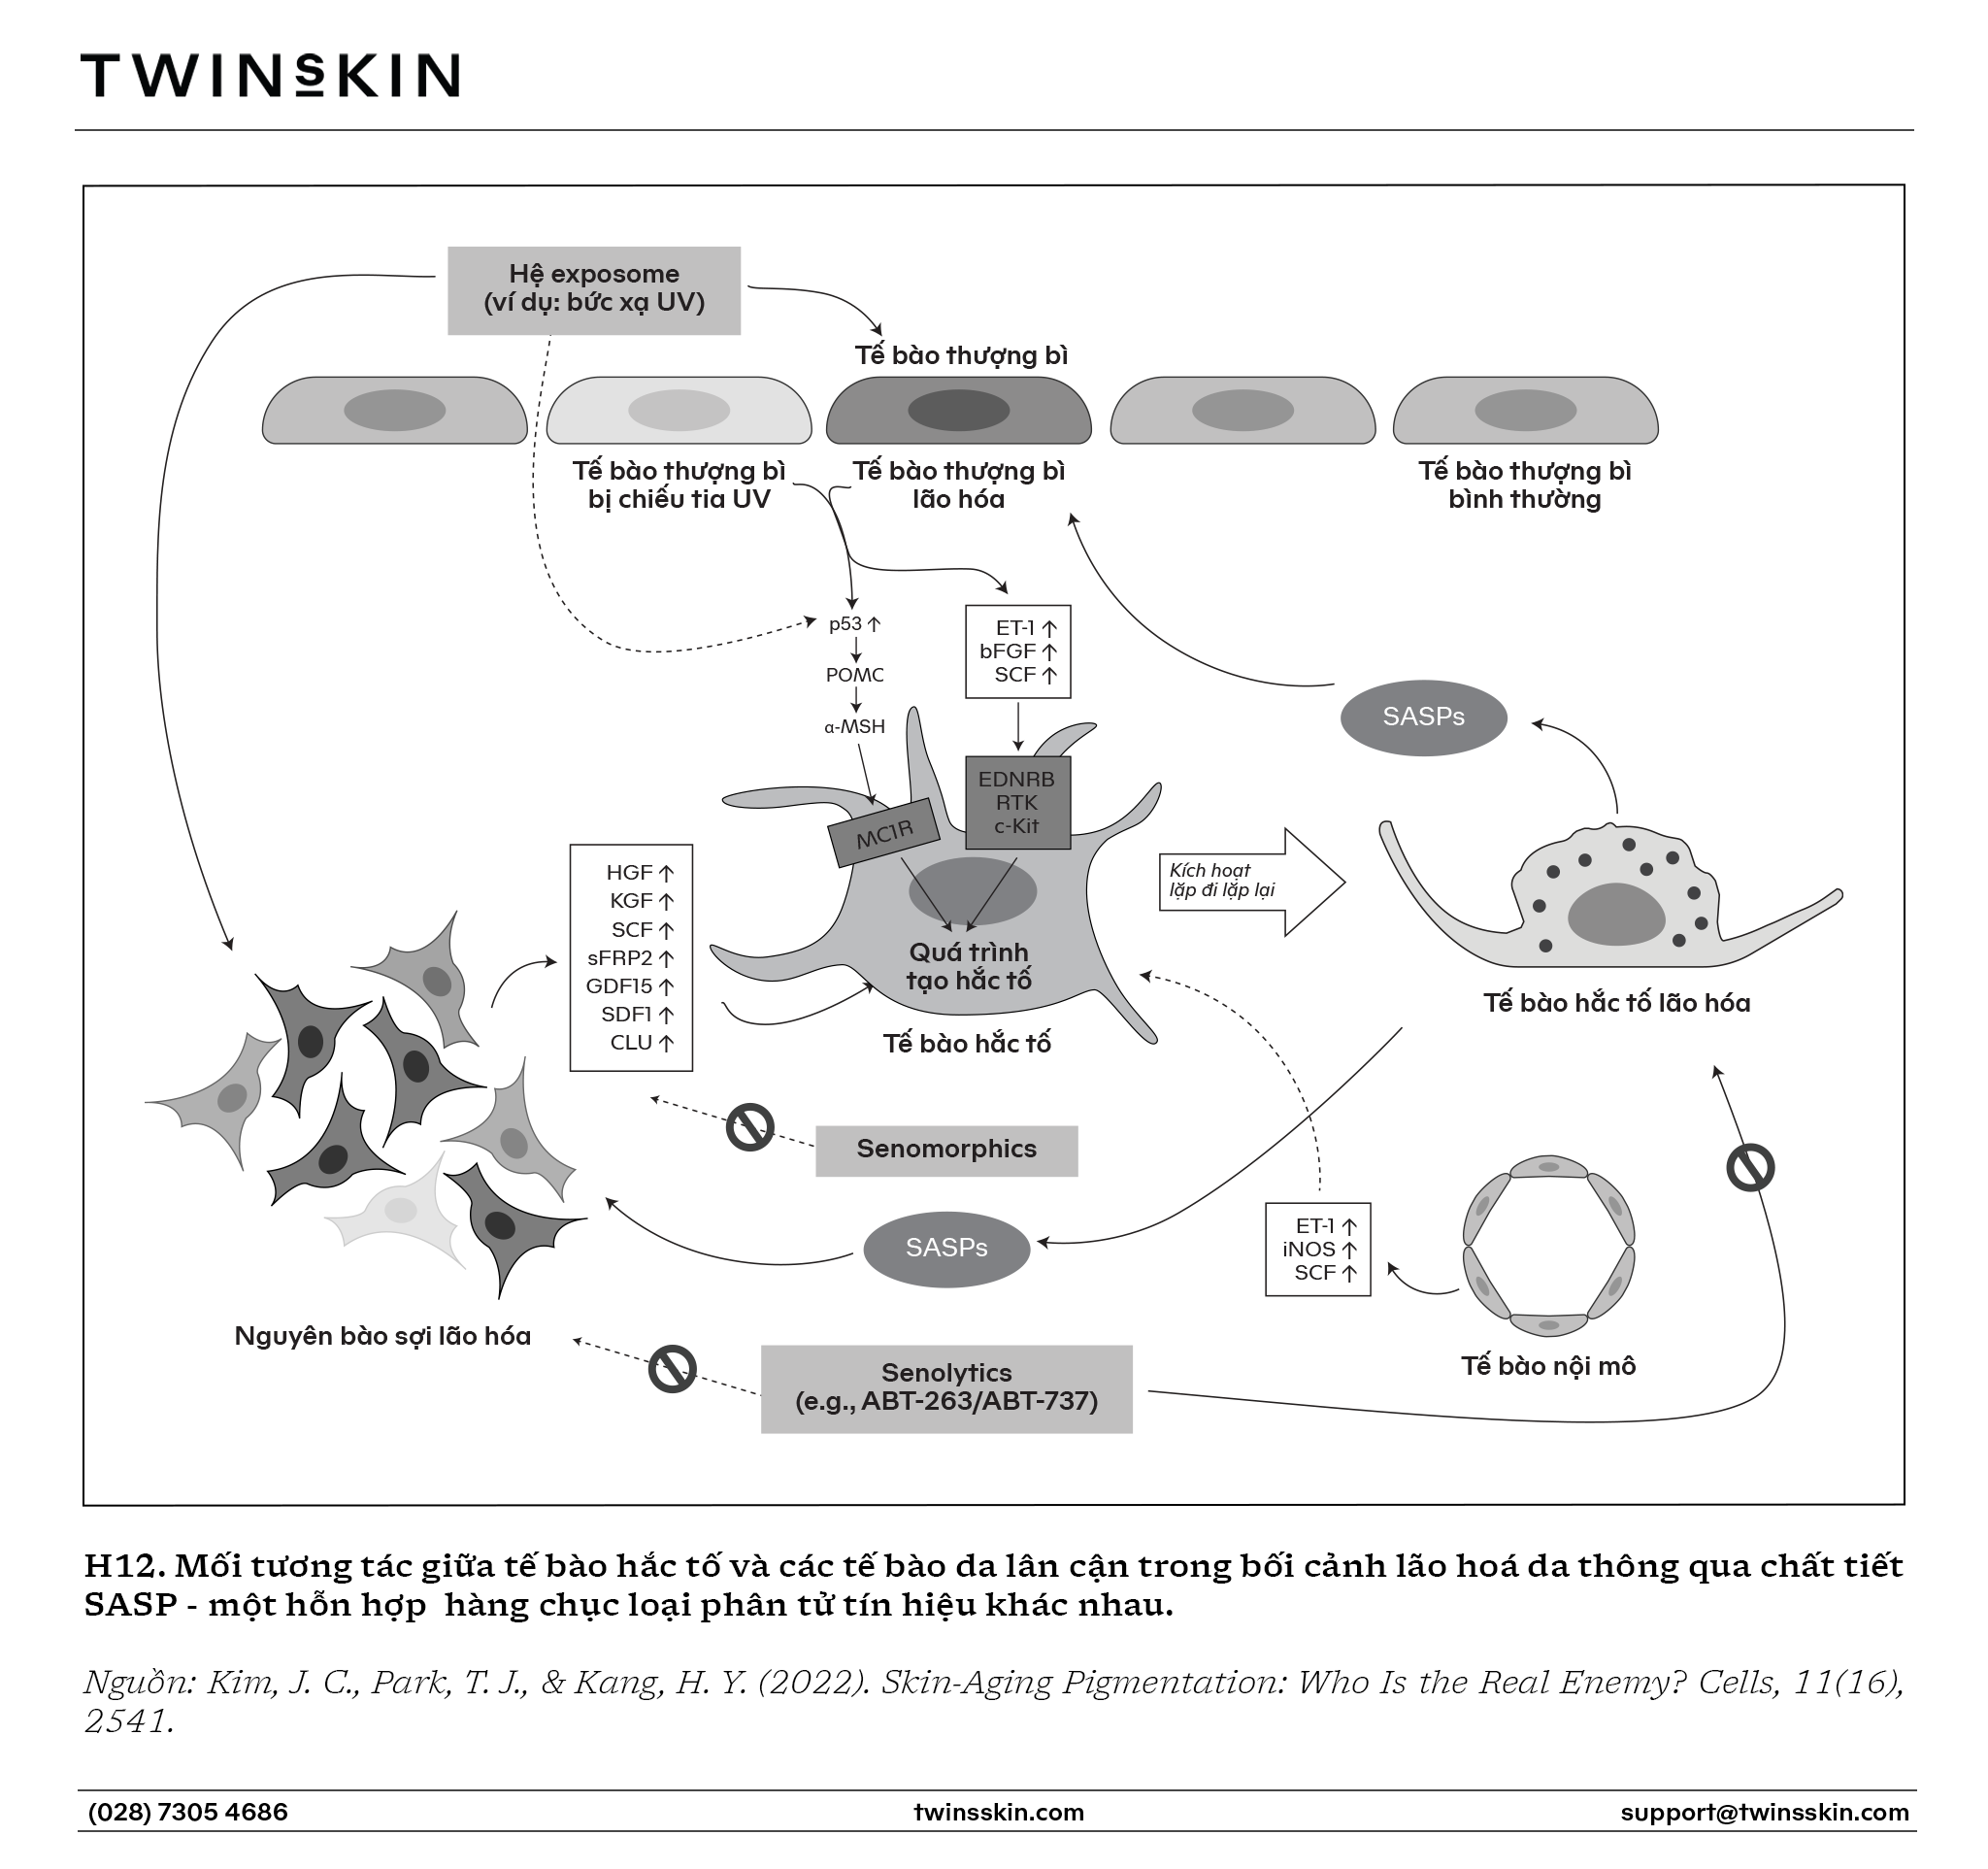
4.1 Lão hoá không chỉ là nếp nhăn mà bắt đầu từ cấp độ tế bào
Ở cấp độ cấu trúc mà mắt thường nhìn thấy, lão hoá vẫn thường được hiểu là sự “xuống cấp” của mô: da mỏng hơn, thiếu đàn hồi, nhiều nếp nhăn, chân chim, chảy xệ do thiếu hụt collagen và elastin. Tuy nhiên, dưới kính hiển vi, lão hoá không chỉ dừng ở mức mô hay cơ quan (da, thần kinh, xương…), mà diễn ra ngay từ đơn vị cơ bản nhất: tế bào.
Khi tế bào trải qua nhiều vòng phân bào, tích lũy tổn thương DNA, stress oxy hoá, rối loạn tín hiệu… chúng bước vào trạng thái gọi là lão hoá tế bào (cellular senescence). Tế bào không chết hẳn, nhưng ngừng phân chia và bắt đầu hành xử theo một cách rất khác:
- Thay đổi hình dạng (to hơn, dẹt hơn, nhiều không bào),
- Biểu hiện các marker đặc trưng như SA-β-gal, p16^INK4a, p21^CIP1,
- Quan trọng hơn, chúng tiết ra một “cocktail” phân tử gồm cytokine tiền viêm, chemokine, yếu tố tăng trưởng, enzyme MMPs… gọi là kiểu hình tiết liên quan đến lão hoá – SASP (Senescence-Associated Secretory Phenotype).
Bằng chứng cho mối liên hệ giữa lão hoá tế bào và nám đã được củng cố trong một số nghiên cứu gần đây. Trong nghiên cứu của Bayardo-Delgadillo và cộng sự, sinh thiết vùng da có nám và vùng da lành, không phơi nắng ở 12 phụ nữ từ 30–35 tuổi cho thấy: vùng da nám có biểu hiện cao hơn của các marker lão hoá như p16 và p53, đồng thời giảm mạnh SIRT1 và BCL2 – những yếu tố liên quan đến sống còn và bảo vệ tế bào.
Điều đáng chú ý là những thay đổi này xuất hiện ở những người chỉ mới bước vào độ tuổi trung niên, điều này ợi ý rằng vùng da nám đã “già trước tuổi” hơn so với vùng da xung quanh. Đây không còn là câu chuyện chỉ đến khi lão hoá do tuổi tác thì mới bị nám, mà là vùng da mang nám có thể gặp trạng thái lão hoá khu trú do yếu tố ngoại sinh.
Các yếu tố ngoại sinh có thể là tia UV, ô nhiễm, lối sống và stress oxy hoá thúc đẩy lão hoá xảy ra sớm và mạnh hơn, đặc biệt trên các vùng da phơi nắng. Trong bức tranh đó, nguyên bào sợi ở vùng da tiếp xúc ánh sáng biểu hiện marker lão hoá p16 nhiều hơn so với vùng không phơi nắng và quá trình lão hoá của chúng bắt đầu từ rất sớm, ngay cả ở người trẻ. Theo thời gian, lão hoá của nguyên bào sợi, tế bào sừng, tế bào hắc tố và tế bào nội mô diễn ra song song, tạo nên một “mạng lưới tế bào già” đan xen trong mô da.
4.2 Ảnh hưởng của lão hoá đến tình trạng nám da
Những tế bào lão hoá này không chỉ “yếu đi” mà còn tích cực định hình lại vi môi trường da bằng cách không ngừng tiết ra kiểu hình tiết chế liên quan đến lão hóa” (Senescence-Associated Secretory Phenotype – SASP) được ví von là “một ly cocktail” gồm hàng chục loại phân tử tín hiệu khác nhau.
SASP còn tác động theo nhiều hướng khác. SCF (Stem Cell Factor) và các yếu tố tăng trưởng có nguồn gốc từ nguyên bào sợi lão hoá không chỉ kích thích tế bào hắc tố mà còn thu hút và hoạt hoá tế bào mast (dưỡng bào) – vốn được ghi nhận là tăng số lượng trong tổn thương nám. Tế bào Mast khi được kích hoạt sẽ giải phóng histamin, tryptase và nhiều chất trung gian khác vừa làm nặng thêm tình trạng viêm, vừa góp phần thúc đẩy sinh sắc tố.
Song song đó, VEGF từ nguyên bào sợi lão hoá thúc đẩy tân tạo mạch, giải thích vì sao nhiều vùng nám xuất hiện trên nền da đỏ, giãn mạch, nhạy cảm. Như vậy, lão hoá tế bào không chỉ là nền mà còn là lực duy trì và khuếch đại bệnh sinh nám.
Tế bào hắc tố cũng bị lão hoá nhưng một điểm rất đặc trưng và cần lưu ý là,số lượng tế bào hắc tố còn chức năng và hoạt tính tyrosinase có xu hướng giảm theo tuổi, khiến da người già nhìn chung nhợt nhạt hơn. Tuy nhiên, ở các vùng da phơi nắng, dưới tác động kích thích liên tục của tia UV, tế bào hắc tố lại được “giữ nhiệt” và duy trì hoạt động ở một mức nhất định như một cơ chế bảo vệ.
Trên nền đó, các thay đổi về kiểu hình, hình thái và chức năng ở tế bào hắc tố dễ xuất hiện, dẫn tới các rối loạn sắc tố đặc trưng của da lão hoá như nám, tàn nhang do ánh nắng, đốm nâu.
Đồng thời, ở lớp thượng bì, chu kỳ thay mới tế bào cũng chậm lại: từ khoảng 28–30 ngày ở người trẻ kéo dài thành 45–50 ngày hoặc hơn ở người lớn tuổi. Điều này khiến các tế bào sừng chứa melanin tồn tại lâu hơn trên bề mặt da, làm cho các mảng nám sạm trở nên đậm, bền và khó phai hơn.
Trong bối cảnh đó, các phương pháp điều trị nám truyền thống như laser, peel hoá học, đốt, mài da… chủ yếu nhằm vào việc “xử lý phần ngọn” – loại bỏ melanin ở lớp thượng bì. Trên da trẻ, còn khoẻ, hàng rào cấu trúc bên dưới đủ tốt để đỡ và điều hoà lại sau can thiệp, các phương pháp này có thể cho kết quả khá ấn tượng.
Nhưng trên nền da đã lão hoá, màng đáy đã mỏng, đã suy yếu, số lượng tế bào lão hoá và mức độ viêm lão hoá cao, những phương pháp này không sửa được “phần móng nhà” đã nứt. Sau điều trị, bề mặt có thể sáng lên tạm thời, nhưng tế bào hắc tố vẫn tiếp tục nhận các tín hiệu kích thích từ môi trường già cỗi bên dưới, melanin mới được sản xuất.
Và nguy hiểm hơn là trong một “sàn nhà bị thủng”, sắc tố lại rò xuống trung bì. Sự tái phát nhanh của nám trong trường hợp này không đơn thuần là “trị không tới” hoặc “chăm sóc chưa kỹ”, mà là hệ quả tất yếu của một nền da cấu trúc đã bị lão hoá.
Một yếu tố khác càng làm vòng xoáy này khó thoát hơn là stress oxy hoá. Lão hoá làm suy giảm hệ thống chống oxy hoá nội tại, trong khi bản thân quá trình sinh melanin (melanogenesis) lại là một quá trình sinh oxy hoá, tạo ra các loại gốc tự do mới. Stress oxy hoá và viêm mạn tính cùng lúc kích hoạt con đường MITF trong tế bào hắc tố, thúc đẩy sản xuất melanin, trong khi melanin mới sinh ra lại gia tăng gánh nặng ROS, tiếp tục gây tổn thương DNA và đẩy thêm nhiều tế bào vào trạng thái lão hoá.
Chúng ta có thể tưởng tượng thấy một vòng luẩn quẩn khiến nám duy trì mãn tính: lão hoá → stress & viêm → tăng melanin → thêm stress → thêm lão hoá, khiến nám không chỉ xuất hiện mà còn có xu hướng nặng dần lên theo thời gian nếu không có can thiệp đúng hướng.
Từ góc nhìn hệ thống như vậy, chúng ta có thể thấy rõ: lão hoá không chỉ là “nền đất” khiến da dễ bị nám, mà còn là lực duy trì và thúc đẩy nám trở thành tình trạng mãn tính, khó điều trị dứt điểm.
Nám và lão hoá không phải hai vấn đề tách biệt, điều này cũng đồng nghĩa với việc: một phác đồ trị nám vốn hiệu quả trên da trẻ, khoẻ mạnh chưa chắc phù hợp khi áp dụng nguyên xi lên một nền da đã lão hoá.
Ở góc độ Twins, điều trị nám trên da lão hoá cần một chiến lược riêng – không chỉ nhắm vào tyros
inase hay melanin mà còn tính tới việc giảm tải tình trạng viêm mạn tính, kiểm soát yếu tố tế bào lão hoá tiết SASP, bảo vệ và tái lập màng đáy.
5. Kết luận
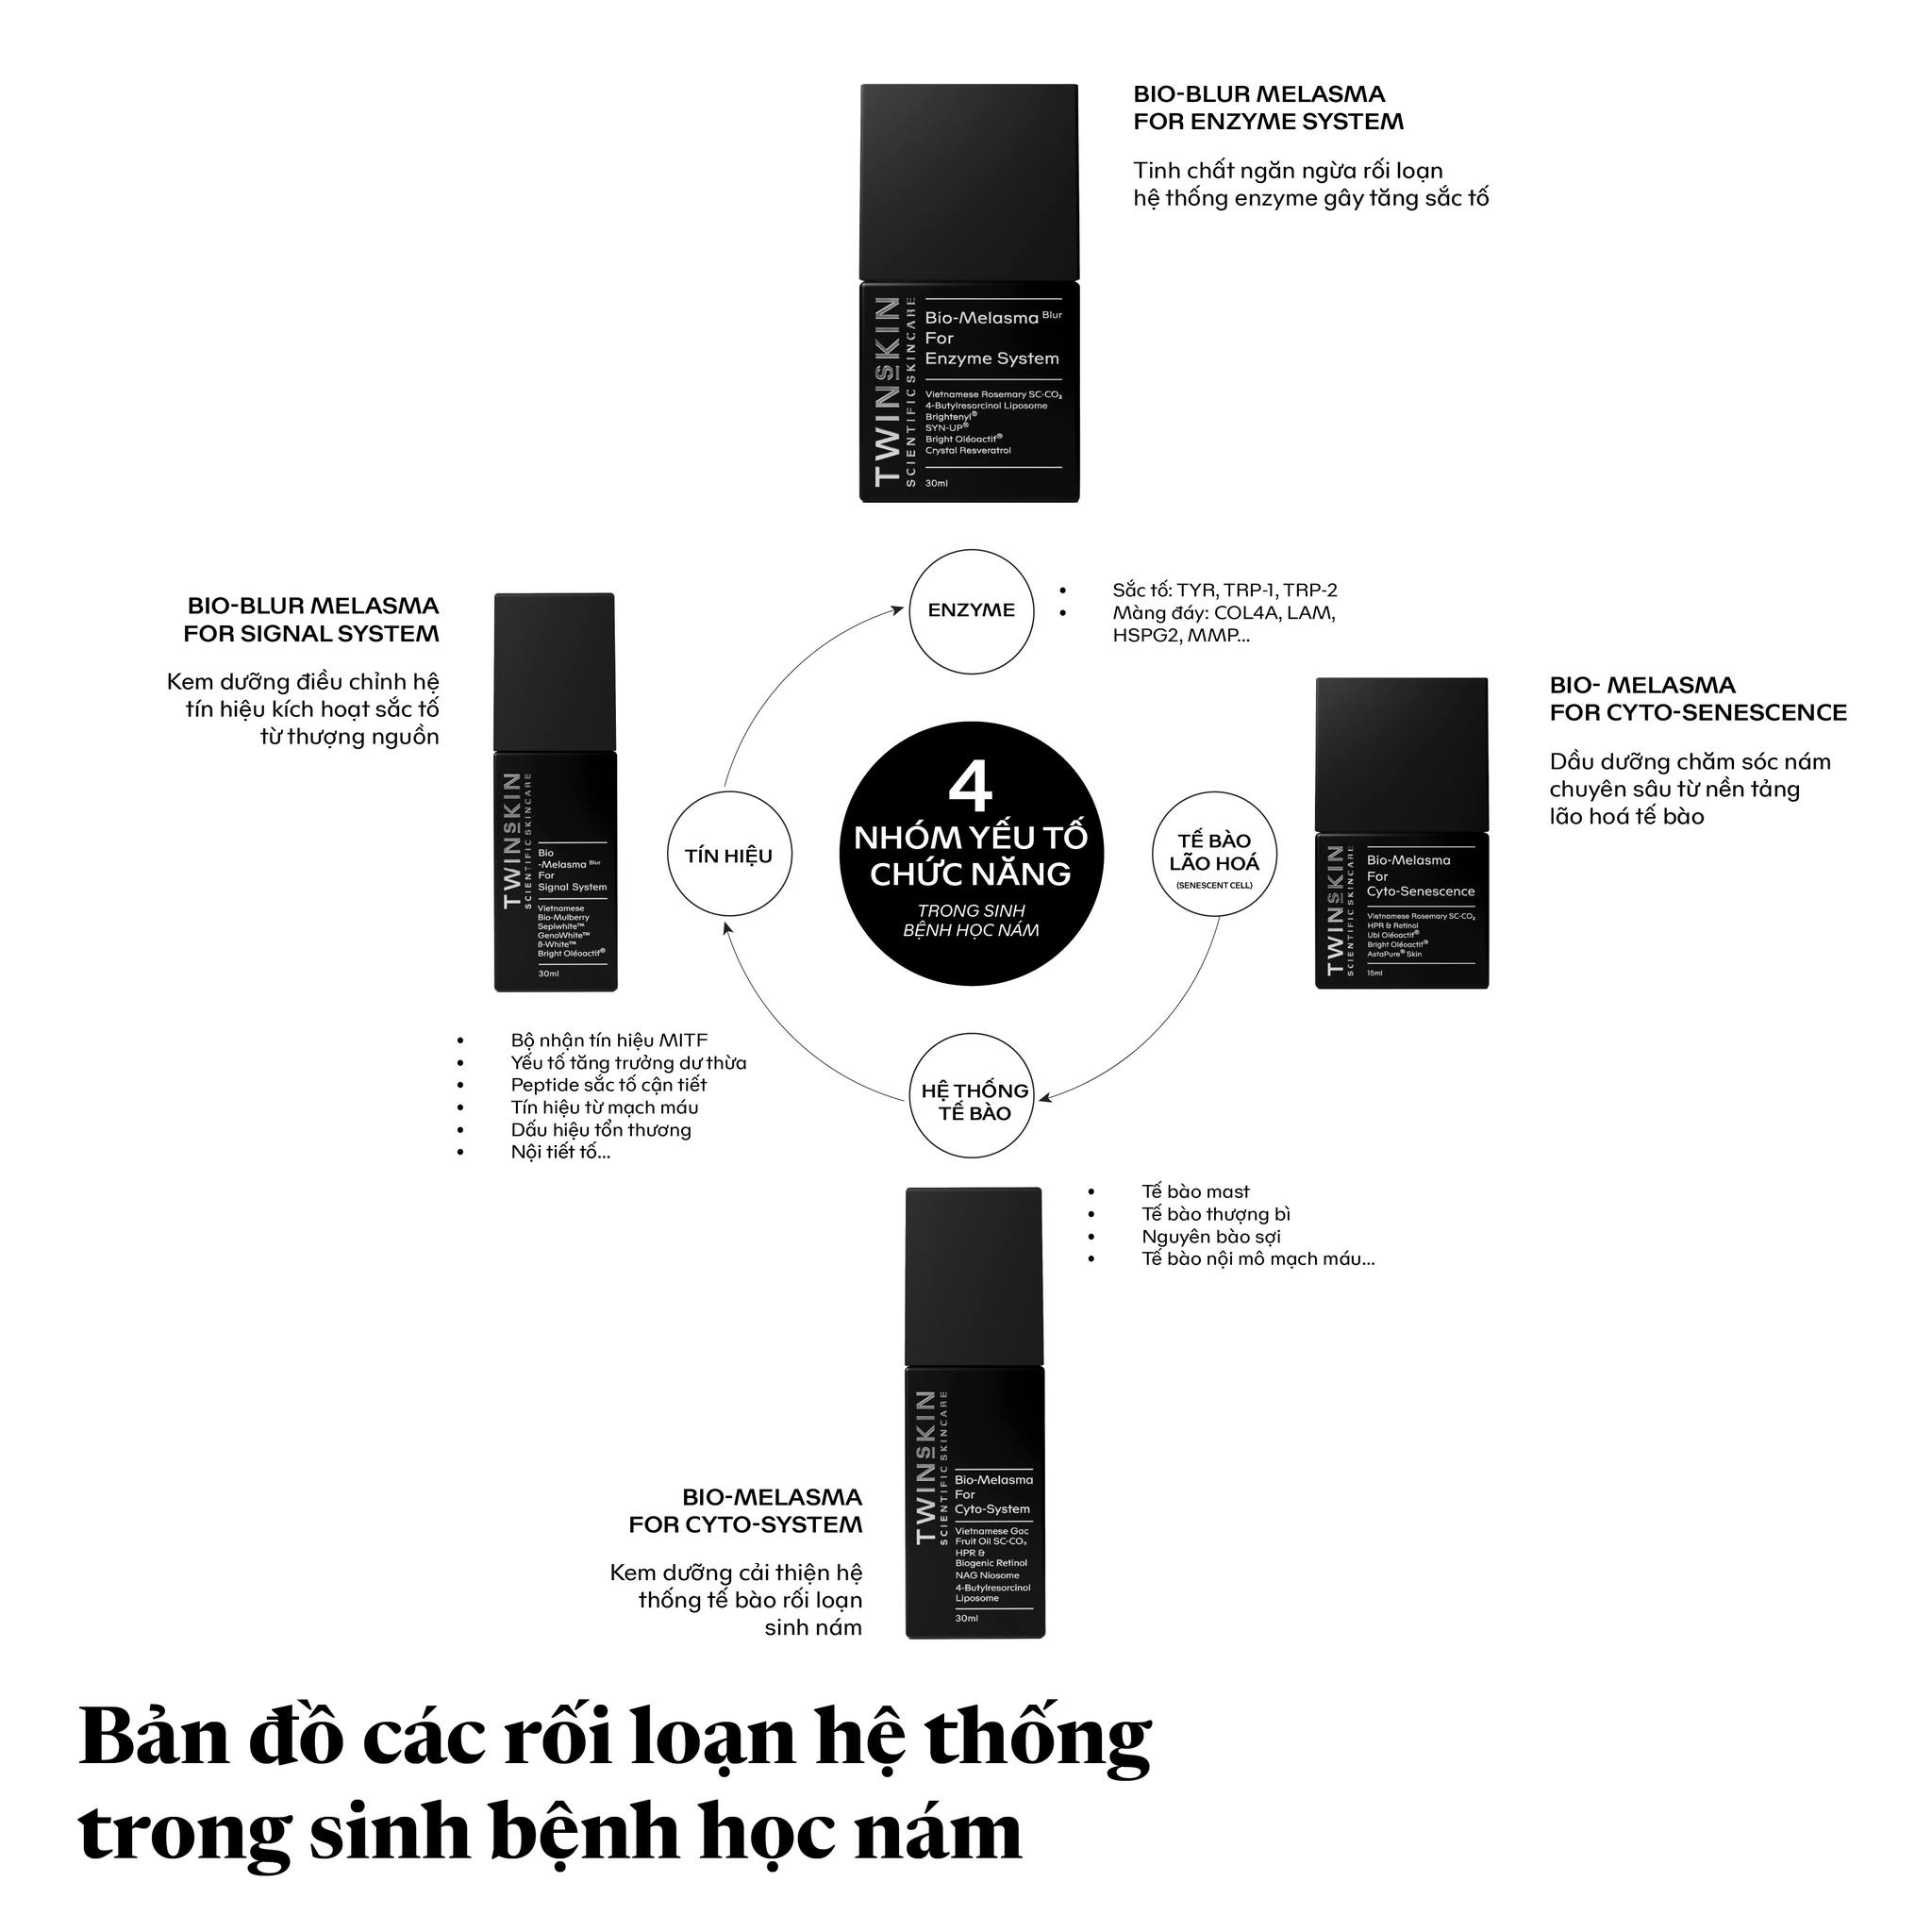
Nám, về bản chất thật sự, là triệu chứng của một hệ sinh thái da bị rối loạn chức năng trên 4 phương diện: mạng lưới tế bào, hệ thống tín hiệu, trục lão hóa và hệ thống enzyme.
Chính vì vậy, trong tuyến nội dung giáo dục về nám, Twins Skin tin rằng chúng ta cần chủ động rời khỏi tư duy “lấy tế bào hắc tố làm trung tâm” và nhìn nhận lại nám như một tình trạng rối loạn hệ thống, nơi tế bào hắc tố chỉ là một mắt xích trong mạng lưới tương tác giữa các tế bào thượng bì, trung bì và hệ miễn dịch thường trú của da. Cách tiếp cận này không nhằm “làm cho vấn đề trở nên phức tạp hơn”, mà để trả lời một cách trung thực câu hỏi mà rất nhiều người bị nám vẫn trăn trở: vì sao nám khó kiểm soát và dễ quay lại đến vậy.
Giải pháp điều trị nám hiệu quả, bền vững, giảm thiểu tình trạng tái nám hay nám kháng trị: Thay vì “triệt tiêu” hắc bào một cách cực đoan, cần phục hồi chức năng toàn bộ hệ thống sinh học bên dưới da đang bị rối loạn.
______________________
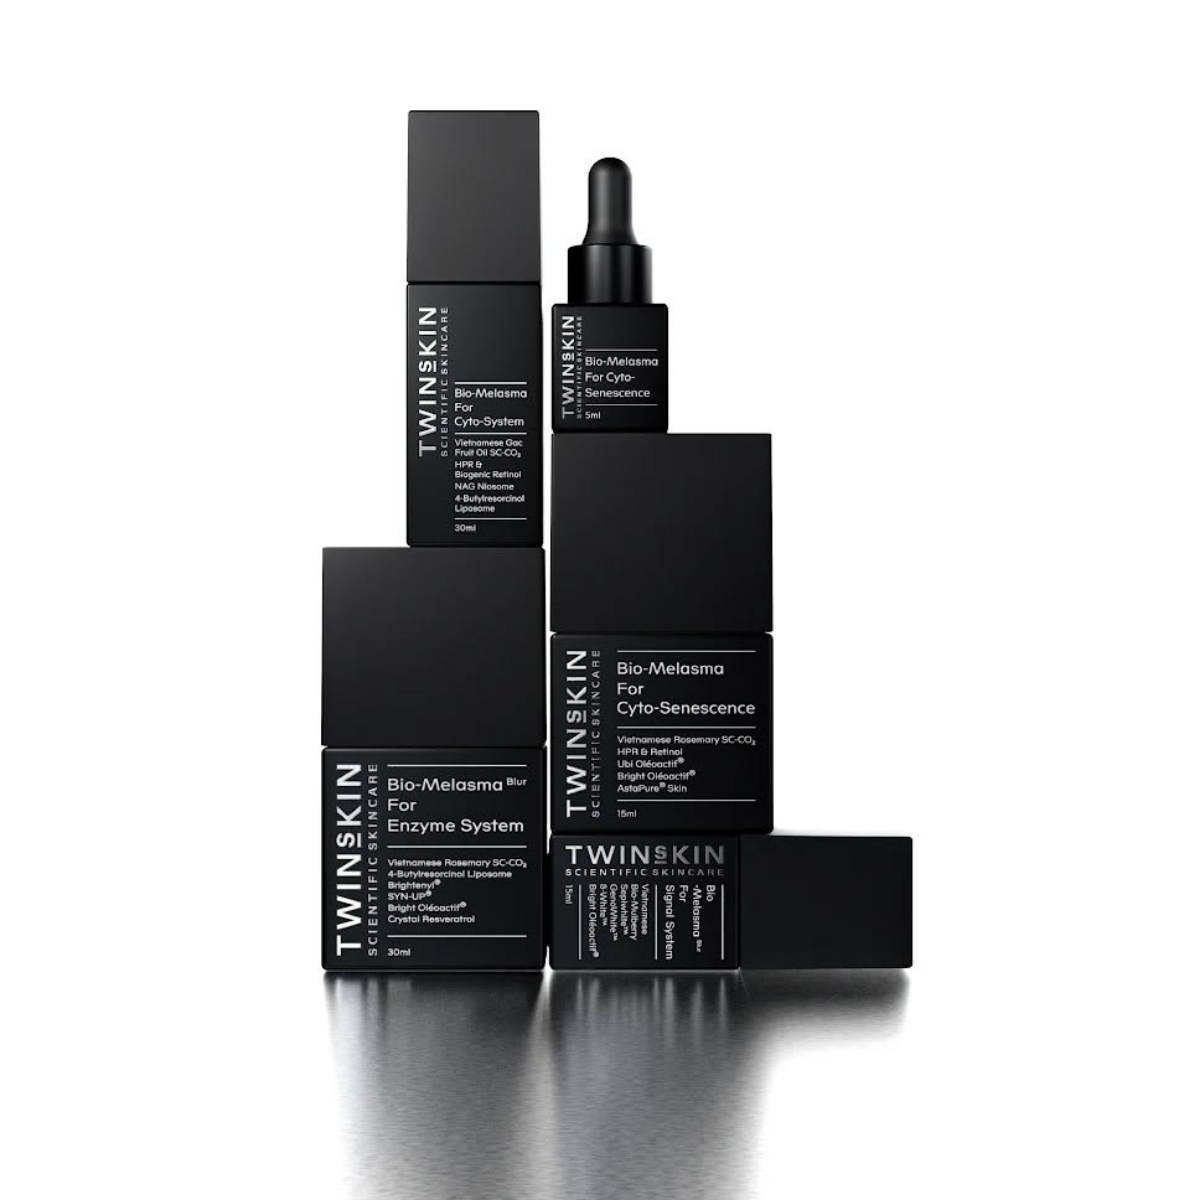
SẢN PHẨM THAM KHẢO
TÀI LIỆU THAM KHẢO
- Aishwarya, K., Bhagwat, P. V., & John, N. (2020). Current concepts in melasma – A review article. Journal of Skin and Sexually Transmitted Diseases, 2, 13–17.
- Ali, L., & Niaimi, F. A. (2025). Pathogenesis of melasma explained. International Journal of Dermatology, 64(7), 1201–1212.
- Bao, M., Gempeler, M., & Campiche, R. (2025). Melanosome Transport and Processing in Skin Pigmentation: Mechanisms and Targets for Pigmentation Modulation. International Journal of Molecular Sciences, 26(17), 8630.
- Bellei, B., Pitisci, A., Catricalà, C., Larue, L., & Picardo, M. (2010). Wnt/β‐catenin signaling is stimulated by α‐melanocyte‐stimulating hormone in melanoma and melanocyte cells: implication in cell differentiation. Pigment Cell & Melanoma Research, 24(2), 309–325.
- Bellei, B., Pitisci, A., Izzo, E., & Picardo, M. (2012). Inhibition of melanogenesis by the pyridinyl imidazole class of compounds: possible involvement of the WNT/Β-Catenin signaling pathway. PLoS ONE, 7(3), e33021.
- Birlea, S. A., Costin, G., Roop, D. R., & Norris, D. A. (2016). Trends in regenerative medicine: Repigmentation in vitiligo through melanocyte stem cell mobilization. Medicinal Research Reviews, 37(4), 907–935.
- Campiche, R., Imfeld, D., Cuddapah, C., Budel, L., & Gempeler, M. (2024). Establishing the Inhibition of the Serine Protease Plasmin as a Skin Anti-Aging Pathway. Cosmetics, 11(3), 103.
- Caughey, G. H. (2007). Mast cell tryptases and chymases in inflammation and host defense. Immunological Reviews, 217(1), 141–154.
- Chen, Y., Chen, Y., Huang, L., & Yu, J. (2011). Evaluation of heparanase and matrix metalloproteinase‐9 in patients with cutaneous malignant melanoma. The Journal of Dermatology, 39(4), 339–343.
- Cho, E., Hyung, K. E., Choi, Y.-H., Chun, H., Kim, D., Jun, S.-H., & Kang, N.-G. (2024). Modulating OCA2 Expression as a Promising Approach to Enhance Skin Brightness and Reduce Dark Spots. Biomolecules, 14(10), 1284.
- D’Mello, S., Finlay, G., Baguley, B., & Askarian-Amiri, M. (2016). Signaling pathways in melanogenesis. International Journal of Molecular Sciences, 17(7), 1144.
- Du, J., Miller, A. J., Widlund, H. R., Horstmann, M. A., Ramaswamy, S., & Fisher, D. E. (2003). MLANA/MART1 and SILV/PMEL17/GP100 are transcriptionally regulated by MITF in melanocytes and melanoma. American Journal of Pathology, 163(1), 333–343.
- Espósito, A. C. C., Brianezi, G., Miot, L. D. B., & Miot, H. A. (2022). Fibroblast morphology, growth rate and gene expression in facial melasma. Anais Brasileiros De Dermatologia, 97(5), 575–582.
- Espósito, A. C. C., Cassiano, D. P., Da Silva, C. N., Lima, P. B., Dias, J. a. F., Hassun, K., Bagatin, E., Miot, L. D. B., & Miot, H. A. (2022b). Update on Melasma—Part I: Pathogenesis. Dermatology and Therapy, 12(9), 1967–1988.
- García‐Borrón, J. C., Abdel‐Malek, Z., & Jiménez‐Cervantes, C. (2014). MC1R, the cAMP pathway, and the response to solar UV: extending the horizon beyond pigmentation. Pigment Cell & Melanoma Research, 27(5), 699–720.
- Gilat, D., Hershkoviz, R., Goldkorn, I., Cahalon, L., Korner, G., Vlodavsky, I., & Lider, O. (1995). Molecular behavior adapts to context: heparanase functions as an extracellular matrix-degrading enzyme or as a T cell adhesion molecule, depending on the local pH. The Journal of Experimental Medicine, 181(5), 1929–1934.
- Hida, T., Kamiya, T., Kawakami, A., Ogino, J., Sohma, H., Uhara, H., & Jimbow, K. (2020). Elucidation of melanogenesis cascade for identifying pathophysiology and therapeutic approach of pigmentary disorders and melanoma. International Journal of Molecular Sciences, 21(17), 6129.
- Hoashi, T., Watabe, H., Muller, J., Yamaguchi, Y., Vieira, W. D., & Hearing, V. J. (2005). MART-1 is required for the function of the melanosomal matrix protein PMEL17/GP100 and the maturation of melanosomes. Journal of Biological Chemistry, 280(14), 14006–14016.
- Iriyama, S., Matsunaga, Y., Takahashi, K., Matsuzaki, K., Kumagai, N., & Amano, S. (2011). Activation of heparanase by ultraviolet B irradiation leads to functional loss of basement membrane at the dermal–epidermal junction in human skin. Archives of Dermatological Research, 303(4), 253–261.
- Jin, W., Stehbens, S. J., Barnard, R. T., Blaskovich, M. a. T., & Ziora, Z. M. (2023). Dysregulation of tyrosinase activity: a potential link between skin disorders and neurodegeneration. Journal of Pharmacy and Pharmacology, 76(1), 13–22.
- Katiyar, S., Yadav, D., & Singh, S. K. (2024). Markers of Oxidative Stress and Tyrosinase Activity in Melasma Patients:A Biochemical Investigation. Current Protein and Peptide Science, 25(2), 183–188.
- Kobayashi, T., Urabe, K., Winder, A., Jiménez-Cervantes, C., Imokawa, G., Brewington, T., Solano, F., García-Borrón, J., & Hearing, V. (1994). Tyrosinase related protein 1 (TRP1) functions as a DHICA oxidase in melanin biosynthesis. The EMBO Journal, 13(24), 5818–5825.
- Kwon, S.-H., Hwang, Y.-J., Lee, S.-K., & Park, K.-C. (2016). Heterogeneous Pathology of Melasma and Its Clinical Implications. International Journal of Molecular Sciences, 17(6), 824.
- Lazar, A. M., Costea, D. O., Popp, C. G., & Mastalier, B. (2024). Skin Malignant Melanoma and Matrix Metalloproteinases: Promising Links to Efficient Therapies. International Journal of Molecular Sciences, 25(14), 7804.
- Le, L., Escobar, I. E., Ho, T., Lefkovith, A. J., Latteri, E., Haltaufderhyde, K. D., Dennis, M. K., Plowright, L., Sviderskaya, E. V., Bennett, D. C., Oancea, E., & Marks, M. S. (2020). SLC45A2 protein stability and regulation of melanosome pH determine melanocyte pigmentation. Molecular Biology of the Cell, 31(24), 2687–2702.
- Liu, W., Chen, Q., & Xia, Y. (2023). New mechanistic insights of Melasma. Clinical Cosmetic and Investigational Dermatology, Volume 16, 429–442.
- Maddaleno, A. S., Camargo, J., Mitjans, M., & Vinardell, M. P. (2021). Melanogenesis and Melasma Treatment. Cosmetics, 8(3), 82.
- Miao, F., Wan, J., Zhou, Y., & Shi, Y. (2025). Unraveling Melasma: From Epidermal Pigmentation to Microenvironmental Dysregulation. Biology, 14(10), 1402.
- Nishioka, E., Funasaka, Y., Kondoh, H., Chakraborty, A. K., Mishima, Y., & Ichihashi, M. (1999). Expression of tyrosinase, TRP-1 and TRP-2 in ultraviolet-irradiated human melanomas and melanocytes.https://www.academia.edu/download/123159827/00008390-199910000-0000220250606-1-cz0pal.pdf Melanoma Research, 9(5), 433–444.

Twins Skin là thương hiệu mỹ phẩm chuẩn khoa học đầu tiên của Việt Nam, tiên phong ứng dụng các công nghệ bọc tiên tiến, dựa trên nền tảng khoa học đã được nghiên cứu chứng nhận. Đội ngũ nghiên cứu của Twins Skin gồm: kỹ sư hoá sinh, kỹ sư hoá dược, sự tham vấn từ bác sĩ da liễu và bác sĩ da liễu thẩm mỹ.
Mỗi khách hàng đến với Twins Skin đều sẽ được thiết quy trình cá nhân hoá dựa vào lịch sử da và vấn đề da. Twins Skin cam kết đảm bảo quyền lợi của bạn với chính sách bảo hành/đổi trả miễn phí. Tìm hiểu và kết nối cùng Twins tại:


https://shorturl.fm/vMSwZ